Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva no sistema de comentários no final da página.
Regulação do sistema complemento
Dados os efeitos destrutivos devastadores desencadeados pelo sistema complemento e a forma como sua ativação é disparada e amplificada rapidamente, não surpreende que existam múltiplos mecanismos que impedem sua ativação descontrolada.
Um mecanismo passivo de regulação do sistema complemento é a labilidade de alguns de seus componentes, que permite sua desativação espontânea quando não são estabilizados em uma reação com outros componentes. Por exemplo, a convertase de C3 da via alternativa tem meia-vida ativa de cerca de 5 minutos, a menos que seja estabilizada pela properdina.
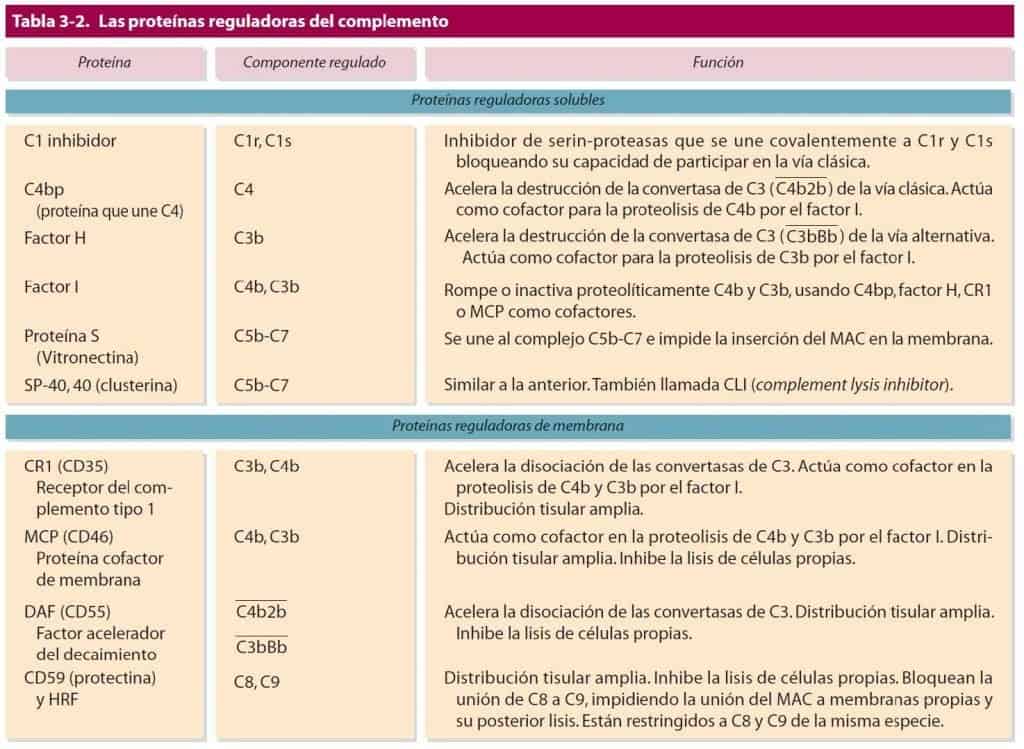
Os mecanismos ativos de regulação do sistema complemento incluem um conjunto de proteínas reguladoras que desativam diferentes elementos do complemento. As proteínas reguladoras do complemento podem ser encontradas em forma solúvel ou ancoradas à membrana, conforme detalhado na Figura 12.8.
É necessário distinguir entre os receptores do complemento e as proteínas reguladoras do complemento que revestem as membranas celulares. Em ambos os casos, seus ligantes são componentes do complemento, mas as funções biológicas de uns e de outras diferem: os primeiros servem às células do sistema imune para melhorar a eliminação de patógenos, enquanto as segundas inibem a ativação descontrolada do complemento sobre os tecidos sadios. Há uma exceção: CR1 faz as duas coisas.
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Regulação do complemento antes da montagem da convertase
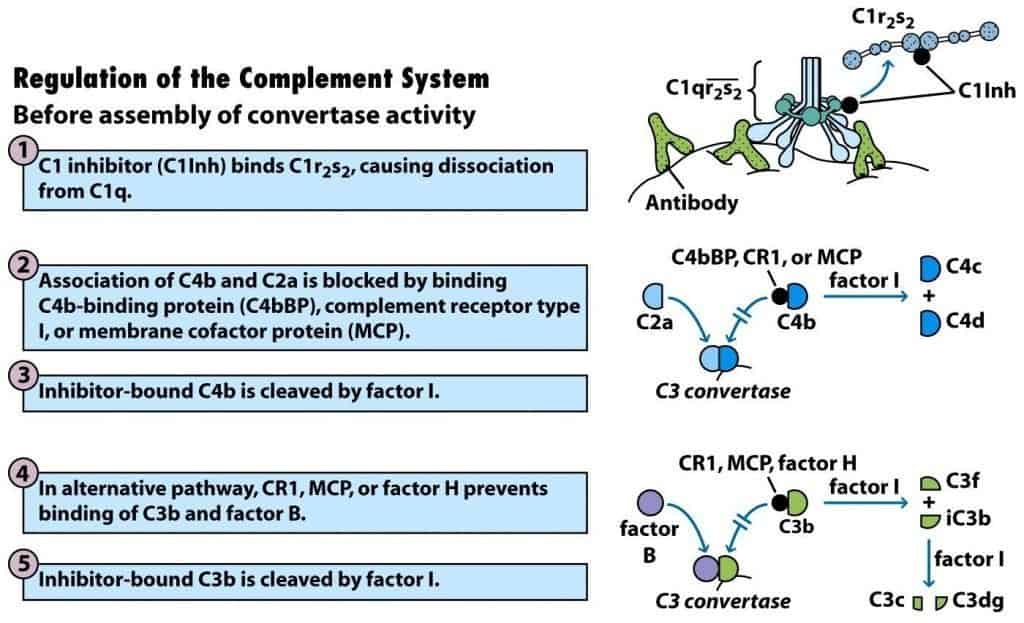
O inibidor de C1 (C1Inh) é uma glicoproteína solúvel capaz de formar um complexo com C1r2s2, produzindo a dissociação de C1q e impedindo, portanto, a ativação de C4 ou C2 (Figura 12.9-1).
A reação catalisada pela convertase de C3 proveniente de qualquer uma das vias de ativação é capaz de gerar centenas de moléculas de C3b. Estas, por sua vez, são capazes de se ligar a células próximas e danificá-las ao induzir nelas a formação do MAC. Como mecanismo de regulação, C3b sofre hidrólise espontânea no momento em que se afasta mais de 40 nm das convertases de C3. Além disso, existe uma série de proteínas, denominadas RCA (regulators of complement activation), que regulam a atividade das convertases de C3. Entre elas estão a proteína de ligação a C4b (C4bBP), o receptor do complemento 1 (CR1) e a proteína cofator de membrana (MCP). Cada uma dessas proteínas reguladoras se liga a C4b e impede sua ligação a C2b. Em seguida, outra proteína reguladora, o fator I, cliva C4b em C4d ligado e C4c solúvel (Figura 12.9-2,3).
Uma sequência reguladora semelhante impede a montagem da convertase de C3 da via alternativa. Nesse caso, CR1, MCP ou um componente regulador denominado fator H ligam-se a C3b e impedem sua ligação ao fator B. Em seguida, o fator I cliva C3b em um fragmento iC3b ligado e um fragmento C3f solúvel. A proteólise posterior de iC3b pelo fator I origina C3c solúvel e C3dg ligado à membrana (Figura 12.9-4,5).
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Regulação do complemento depois da montagem da convertase
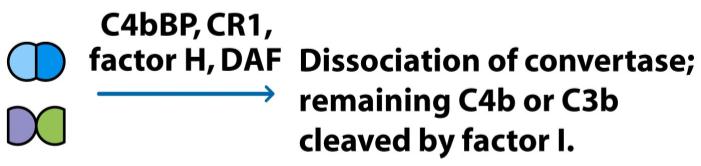
As proteínas RCA, particularmente C4bBP, CR1 e o fator H, atuam também sobre a convertase de C3 já montada e levam à sua dissociação. O fator acelerador do decaimento (DAF) ou CD55, uma glicoproteína de membrana, também tem a capacidade de dissociar a convertase de C3. Após a dissociação da convertase de C3, o fator I cliva o componente C4b ou C3b restante ligado à membrana, desativando irreversivelmente a convertase (Figura 12.10).
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Regulação do complemento na montagem do MAC
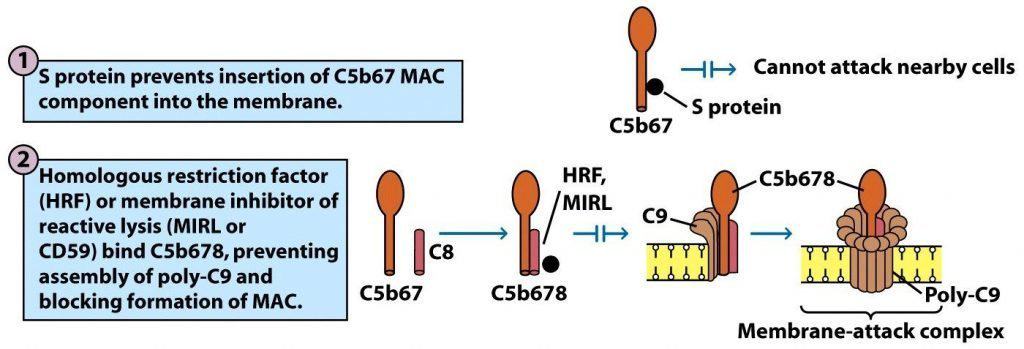
A formação do complexo C5b67 implica um elevado risco de lise para as células sadias do hospedeiro. Por isso, existem várias proteínas séricas que neutralizam essa ameaça, ligando-se ao complexo e impedindo sua inserção na membrana das células próximas. Assim, a proteína S é capaz de se ligar a C5b67 e impedir sua inserção na membrana celular (Figura 12.11-1).
A lise celular mediada pelo complemento é mais eficiente quando o complemento provém de uma espécie diferente da das células que estão sendo lisadas. Esse fenômeno é atribuído ao chamado fator de restrição homólogo (HRF), inibidor de membrana de lise reativa (MIRL), CD59 ou protectina. Essa proteína é encontrada na membrana de muitos tipos celulares e protege as células da lise inespecífica mediada pelo complemento por meio de sua ligação a C8, impedindo assim a montagem de poli-C9 e sua inserção na membrana. Essa inibição só ocorre quando os componentes do complemento provêm da mesma espécie que as células-alvo (Figura 12.11-2).
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)