Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva no sistema de comentários no final da página.
Mecanismos efetores do sistema complemento
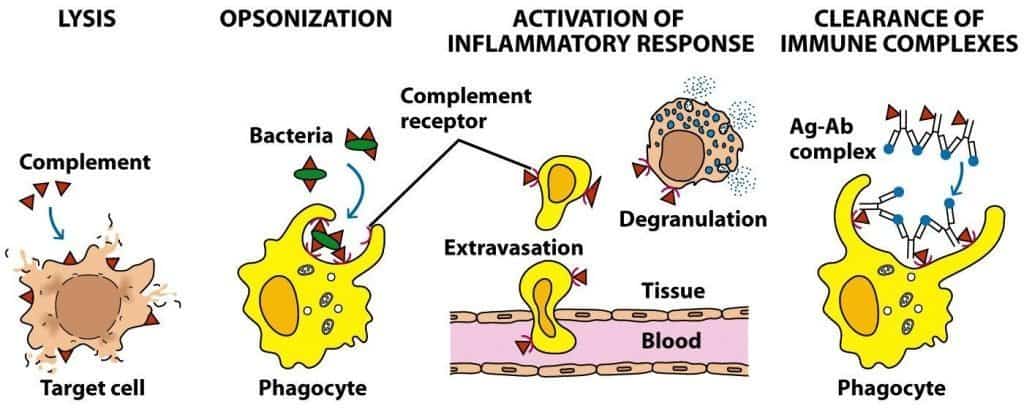
Após a ativação do sistema complemento por qualquer uma das vias possíveis, os elementos desse sistema interagem em uma cascata minuciosamente regulada para cumprir quatro funções básicas (Figura 12.1):
- Lise de bactérias Gram-negativas, parasitas, vírus envelopados e células do hospedeiro.
- Opsonização de antígenos particulados, o que permite sua fagocitose.
- Ativação da resposta inflamatória, graças aos receptores do complemento e à secreção de moléculas imunorreguladoras.
- Depuração de imunocomplexos (imunodepuração), que elimina da circulação os complexos antígeno-anticorpo por meio do baço e do fígado.
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Lise de bactérias Gram-negativas, parasitas, vírus envelopados, eritrócitos e células nucleadas
A formação do complexo de ataque à membrana (MAC) permite lesar a parede de bactérias Gram-negativas, parasitas, vírus envelopados e células do hospedeiro (eritrócitos e células nucleadas) por meio da formação de um poro em sua bicamada lipídica. Embora esse mecanismo efetor do complemento possa parecer muito destrutivo, na realidade seu papel na defesa do hospedeiro se limita a poucos patógenos, sendo muito mais importantes os mecanismos de opsonização e de ativação da resposta inflamatória.
A formação do MAC é o principal elemento defensivo do complemento contra as bactérias Gram-negativas, especialmente as do gênero Neisseria. Essas bactérias estão associadas à gonorreia, uma infecção sexualmente transmissível, e a algumas formas de meningite bacteriana, uma infecção grave do sistema nervoso central. A formação do MAC lesa os elementos estruturais da bactéria, provocando um choque osmótico que leva à sua lise. No entanto, alguns grupos de bactérias Gram-negativas desenvolveram mecanismos de escape à ação do MAC. Assim, por exemplo, algumas cepas de Escherichia coli ou Salmonella desenvolveram cadeias laterais no lipopolissacarídeo da parede celular que impedem a inserção do MAC na parede bacteriana. Os pacientes com deficiências dos componentes C5-C9 do complemento são mais suscetíveis às doenças mencionadas anteriormente. Em geral, as bactérias Gram-positivas são resistentes à ação do MAC, graças à sua espessa camada de peptidoglicano e à cápsula bacteriana.
A camada mais externa dos vírions ou partículas virais pode ser um capsídeo ou um envelope. Os vírus envelopados são mais lábeis diante de fatores ambientais, como ácido, detergentes, dessecação ou calor; já os vírus não envelopados, ao contrário do que poderia parecer, são resistentes a todos esses fatores. A maioria dos vírus envelopados é suscetível à lise mediada pelo complemento. O envelope viral deriva, em sua maior parte, da membrana plasmática das células do hospedeiro infectado e, portanto, é possível a formação de poros mediada pelo MAC. O complemento e os anticorpos têm um papel fundamental na defesa contra os vírus e são cruciais para conter a disseminação viral durante a infecção aguda e para proteger contra uma nova infecção. Entre os vírus suscetíveis à lise mediada pelo complemento estão as famílias Herpesviridae (HSV-1, HSV-2, VZV, EBV, CMV,…), Orthomyxoviridae (vírus influenza A, B e C), Paramyxoviridae (vírus do sarampo, vírus da caxumba, vírus sincicial respiratório,…) e Retroviridae (HIV, HTLV,…).
As células do hospedeiro também podem ser lisadas pela ação do MAC, como ocorre com os eritrócitos, que têm capacidade limitada de resistir às lesões em sua membrana e de repará-las, em processos como a anemia hemolítica autoimune e outros distúrbios hemolíticos. As células nucleadas, por sua vez, conseguem escapar com mais facilidade da ação lítica do MAC. No entanto, a formação de poros na membrana permite a entrada de íons Ca2+ no interior da célula, ativando numerosos mecanismos que podem contribuir para o surgimento de doenças. O mecanismo pelo qual as células nucleadas escapam da ação do complemento é a endocitose do MAC, de modo que a célula pode chegar a reparar o dano na membrana e restabelecer seu equilíbrio osmótico. Uma consequência desafortunada desse fato é que a lise mediada pelo complemento desencadeada por anticorpos específicos contra antígenos de células tumorais, que constitui uma possível cura para o câncer, é ineficaz devido à endocitose do MAC por essas células.
Opsonização
A ativação do sistema complemento e seus correspondentes mecanismos de amplificação levam ao recobrimento da superfície dos elementos-alvo, como as bactérias e os imunocomplexos, pelas opsoninas (fragmentos maiores) resultantes da proteólise das moléculas inativas.
O principal fator responsável pela opsonização mediada pelo complemento é C3b, embora iC3b e C4b também tenham essa função. As células fagocíticas expressam receptores do complemento (CR1, CR3 e CR4) capazes de se ligar às opsoninas. A ligação entre as opsoninas e seus receptores permite a fagocitose do elemento opsonizado, que pode estar íntegro ou em estado particulado após sua lise, iniciando-se o processamento do antígeno e acelerando-se a síntese de anticorpos específicos (Figura 12.2).

(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Ativação da resposta inflamatória
Durante o processo de formação do MAC, são gerados pequenos peptídeos que resultam da clivagem das proteínas inativas do complemento. Esses fragmentos, chamados de anafilatoxinas (C3a, C4a e C5a), ligam-se a receptores em mastócitos e basófilos, induzindo sua degranulação, com a consequente liberação de histamina, TNF-α e outros mediadores inflamatórios responsáveis pelo início da resposta inflamatória (Figura 12.3).
Além disso, as anafilatoxinas induzem a contração do músculo liso e aumentam a permeabilidade vascular, permitindo a entrada do plasma carregado de anticorpos e de células fagocíticas no local onde se encontra o antígeno.
C3a e C5a são capazes de induzir a adesão de monócitos e neutrófilos ao endotélio, permitindo seu extravasamento e migração para o local de ativação do complemento em um tecido. A anafilatoxina C5a é o mediador mais potente desses processos e é eficaz em concentrações picomolares. Além disso, C5a é capaz de induzir a expressão do receptor CR1 nas células fagocíticas, facilitando a fagocitose de antígenos recobertos por C3b.
As anafilatoxinas são substâncias muito reativas e são reguladas por uma protease sérica denominada carboxipeptidase N, que cliva um resíduo de arginina da extremidade carboxiterminal das moléculas e produz as correspondentes formas desarginadas. A forma des-Arg de C3a é completamente inativa, enquanto a forma des-Arg de C5a mantém certa atividade quimiotática e a capacidade de contrair o músculo liso.

(Reproduzido de Male D., Brostoff J., Roth D.B. & Roit I. (2013) Immunology (8th Ed.) Elsevier Saunders, Filadélfia.)
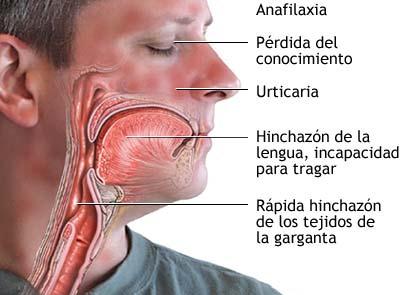
Quando as anafilatoxinas são produzidas em grandes quantidades ou injetadas por via sistêmica, induzem um colapso circulatório generalizado, que produz uma síndrome semelhante ao choque mediado por anticorpos do tipo IgE. Essa reação é chamada de choque anafilático e é uma reação alérgica muito grave que pode causar a morte por asfixia em poucos minutos (Figura 12.4). O tratamento deve ser iniciado imediatamente sempre que houver suspeita, injetando 0,3-0,5 mg de adrenalina por via intramuscular (em adultos), que pode ser repetida a cada 5-10 minutos, e um anti-histamínico como a dexclorfeniramina (Polaramine®). Além disso, devem ser providenciadas medidas adequadas de suporte ventilatório e hemodinâmico.
(Reproduzido de ADAM.)
Depuração de imunocomplexos
Os imunocomplexos são complexos formados por anticorpos e restos de patógenos ou de células mortas do hospedeiro. Devido à sua enorme tendência à agregação e à incorporação de mais componentes, os imunocomplexos podem depositar-se nos leitos capilares, na pele, no rim e em outros órgãos, produzindo doenças. Isso ocorre em doenças como o lúpus eritematoso sistêmico.
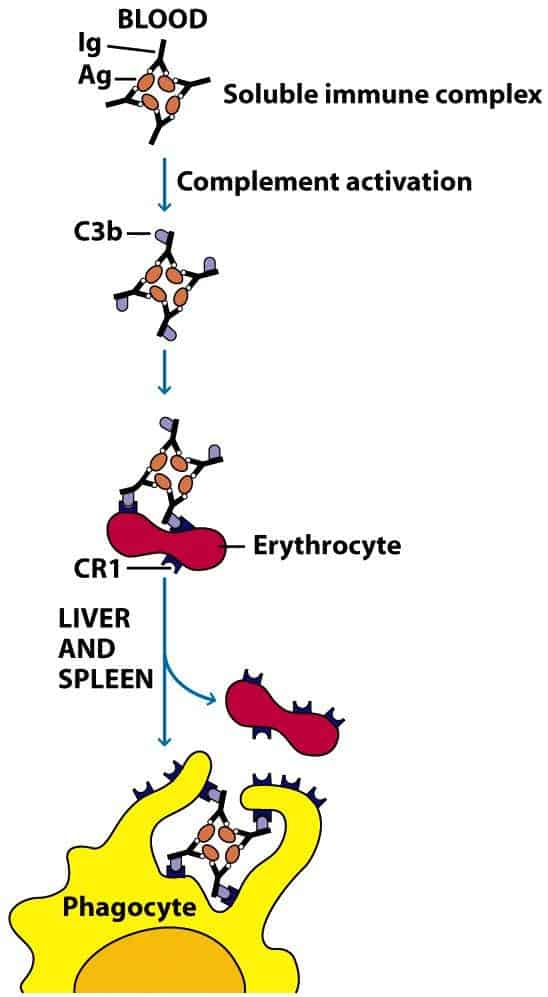
A ativação da via clássica do complemento opsoniza de forma eficiente os imunocomplexos e previne sua precipitação nos tecidos. Para isso, C3b reveste os antígenos no núcleo do imunocomplexo, evitando seu crescimento. Além disso, C3b desagrega os imunocomplexos grandes, impedindo a interação antígeno-anticorpo. Por fim, C3b e C4b, que recobrem a superfície dos imunocomplexos, interagem com os receptores CR1 dos eritrócitos, aos quais se ligam. A adesão aos eritrócitos permite transportar os imunocomplexos perigosos até os macrófagos do baço e do fígado, onde são internalizados e destruídos.
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)