Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Características dos anticorpos
A estrutura mínima de um antígeno que é reconhecida por um anticorpo e que é capaz de gerar uma resposta imune denomina-se epítopo.
Podem resultar da sequência de aminoácidos na estrutura primária (epítopos lineares) ou do dobramento da proteína (epítopos conformacionais). Os epítopos contatam intimamente os parátopos das imunoglobulinas.
As três características fundamentais de um anticorpo são a afinidade, a avidez e a especificidade (determinada pela sequência de aminoácidos de seus domínios variáveis).
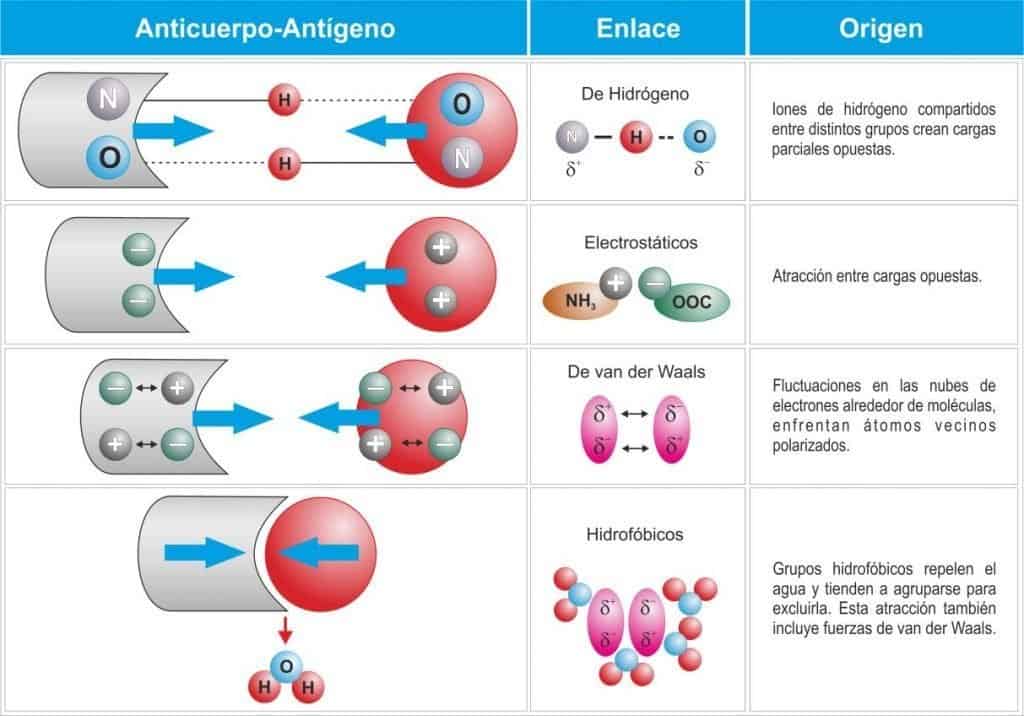
A afinidade determina a rapidez com que o anticorpo (Ab) se liga ao Ag e é determinada pela força das ligações entre ambas as moléculas. Essa ligação nunca será covalente e se encontrará em um equilíbrio deslocado para um lado ou outro conforme a afinidade. Essa força de ligação e, portanto, a afinidade, depende do número e do tipo de ligações químicas entre parátopo e epítopo.
Essas ligações podem ser de vários tipos (Figura 6.9):
- Pontes de hidrogênio: íons de H compartilhados por átomos do Ag e do Ab criam cargas parciais opostas.
- Ligações eletrostáticas: ocorrem cargas de polaridade oposta entre Ab e Ag.
- Forças de Van der Waals: flutuações nas nuvens de elétrons ao redor das moléculas colocam em frente átomos vizinhos polarizados.
- Ligações hidrofóbicas: grupos hidrofóbicos do Ab e do Ag se unem excluindo moléculas de água.
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Dependendo do tipo e do número de ligações, haverá maior ou menor afinidade de um anticorpo por seu antígeno. A avidez é dada pelo número de sítios de ligação. É a força com que um anticorpo multivalente se liga a um antígeno multivalente. Há antígenos com sequências repetitivas em sua estrutura. Esses antígenos se comportam de modo multivalente, e a força de ligação Ag-Ab é maior que a simples soma das afinidades de cada um dos sítios de ligação do anticorpo ao antígeno. Assim, quanto maior o número de sítios de ligação, maior a avidez.
Por exemplo, a IgM pentamérica costuma ser a mais ávida por um antígeno, por apresentar 10 sítios de ligação. Em situações fisiológicas, é provável que a avidez seja mais importante que a afinidade, porque os anticorpos são, em sua maioria, divalentes, e o mais comum é que os antígenos sejam multivalentes. A especificidade, a avidez e a afinidade são determinadas pela região Fab do anticorpo. A função é determinada pelo fragmento Fc.
Funções dos anticorpos
Os anticorpos são bons exemplos de como a estrutura está intimamente relacionada com a função. São moléculas em forma de Y, em que os braços curtos (Fab) interagem com o antígeno e a haste (Fc) proporciona a funcionalidade efetora. Como consequência da reação Ab-Ag, ocorrerão diferentes funções:
- Aglutinação – neutralização do antígeno. Os anticorpos são bivalentes, ou seja, possuem dois locais de reconhecimento de antígeno. Isso permite a aglutinação do antígeno, para sua melhor eliminação. Além disso, quando toda a superfície do patógeno é recoberta com moléculas de anticorpos, ocorre um fenômeno denominado neutralização. Assim, por exemplo, existem toxinas que atacam as terminações nervosas, mas, quando os anticorpos se ligam a elas, as neutralizam.
- Opsonização – fagocitose. O recobrimento da superfície do patógeno por anticorpos pode ter consequências posteriores. Assim, os macrófagos, que têm receptores para a porção cristalizável do anticorpo (Fc), denominados FcR, podem fagocitar os patógenos que foram recobertos por anticorpo. Nesse caso, o recobrimento é conhecido pelo nome de opsonização.
- Imobilização do patógeno. Se o anticorpo se liga à parte móvel do patógeno (cílios, flagelos), produz sua imobilização, reduzindo sua patogenicidade.
- Ativação do complemento. Quando um anticorpo se liga a um antígeno, ocorre uma mudança conformacional na região Fc do anticorpo, que induz a ativação do sistema complemento. Somente a IgM e a IgG são capazes de realizar essa ação, desempenhando uma importante função na imunidade adaptativa contra infecções. A unidade de reconhecimento do sistema complemento que reconhece os anticorpos ligados é a proteína C1q do fator C1.
- Expulsão. Quando os anticorpos são do tipo IgE e os antígenos são parasitas, a ligação IgE-antígeno promove a liberação de aminas vasoativas que relaxam a musculatura lisa e provocam diarreia no intestino para expulsar o parasita.
- Citólise mediada por anticorpos (ADDC). Outra função mediada por receptores para a porção Fc do anticorpo é a chamada citotoxicidade mediada por anticorpos (ADCC). As células efetoras são, em sua maioria, os linfócitos NK, que, ao reconhecerem o anticorpo ligado à superfície do patógeno, liberam substâncias citotóxicas que atacam o patógeno. O mecanismo da ADCC é independente do sistema complemento e requer que o linfócito NK expresse receptores de membrana FcR para a porção distal dos anticorpos IgG (CD16).
- Imunidade no feto e no neonato: durante a gestação e os primeiros meses de vida, as imunoglobulinas maternas são o único mecanismo de defesa específica que o recém-nascido tem. Seu sistema imune ainda não amadureceu e, em um primeiro momento, não tem como fabricar suas próprias imunoglobulinas. Estas precisam ser transportadas através da placenta, ou através do epitélio intestinal do neonato, provenientes do leite materno.
Concentração e função dos diferentes isótipos
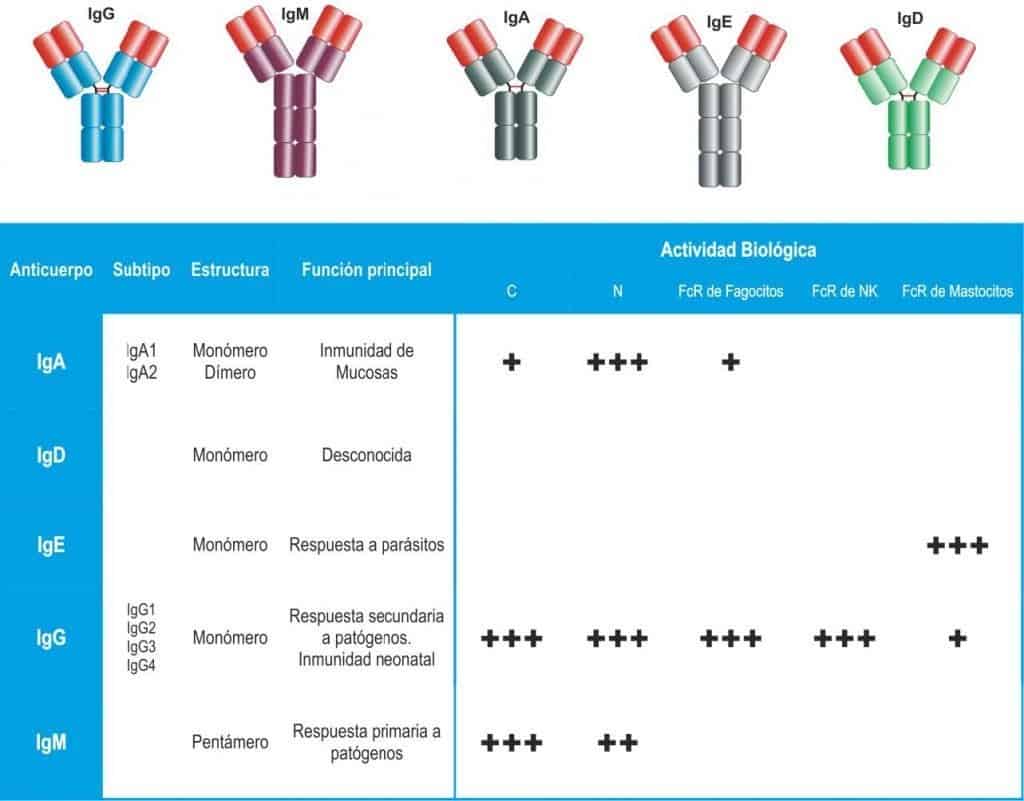
Cada isótipo de anticorpo desempenha mais efetivamente alguma dessas funções efetoras (Figura 6.10). Assim, com uma mesma região variável, diferentes regiões constantes levarão associadas diferenças na função efetora do anticorpo:
- IgA: existem duas subclasses, IgA1 (80-90% do total de IgA do soro) e IgA2 (30-50% do total de IgA de secreções como o leite). As duas subclasses parecem ser reguladas de forma independente. Os níveis séricos variam com a idade e encontram-se elevados na mulher durante a lactação, bem como em infecções crônicas, doenças hepáticas e mieloma. Um nível baixo de IgA indica déficit generalizado de proteínas ou imunodeficiência específica de IgA. Essa Ig é a mais abundante em secreções seromucosas como a saliva, o leite ou o colostro. Faz parte do sistema de defesa da superfície externa do organismo. Nas secreções, apresenta-se na forma de dímero unido a uma cadeia J, que une os dois monômeros de IgA, e ao componente secretor, enquanto no sangue se apresenta na forma de monômero (composto por duas cadeias alfa pesadas e duas cadeias leves). Sua função principal é neutralizante, embora também tenha, em menor medida, capacidade de ativação do complemento.
- IgD: encontra-se fundamentalmente no plasma (menos de 1% do total de imunoglobulinas no plasma, e indetectável em indivíduos saudáveis) e sempre na forma de monômero. Sua função é desconhecida, mas é abundante na superfície dos linfócitos B e acredita-se que participe da diferenciação dessas células induzida pelo antígeno. Linfócitos B com IgD transformam-se em uma célula anérgica (nunca vai se ativar, inútil). Também se pensa que pode ser um resquício evolutivo que desaparecerá.
- IgE: sua concentração plasmática (na forma monomérica) é pequena e é indetectável em indivíduos saudáveis. Liga-se (por meio de receptores para Fc) à superfície de basófilos e mastócitos e sua função é a defesa contra parasitas grandes; no entanto, na sociedade industrializada, relaciona-se com reações de hipersensibilidade imediata, como a asma ou a febre do feno (hipótese da higiene).
- IgG: no plasma ou soro de adultos normais, a IgG representa 75% do total das imunoglobulinas circulantes. Os níveis séricos de IgG costumam variar com a idade, inclusive com a raça. Um nível elevado de IgG associa-se a doenças crônicas do fígado e mieloma; níveis reduzidos podem se associar a malignidade e a graves déficits de proteínas, bem como a imunodeficiência. Apresenta quatro subclasses, todas na forma de monômero. A IgG1 é a mais abundante no plasma, enquanto a IgG4 é a mais escassa. Apresenta grande versatilidade funcional: é importante na imunidade fetal por atravessar a placenta e entrar no plasma fetal (único anticorpo da etapa neonatal e de origem materna), na resposta secundária e na ativação do complemento, além de potencializar a fagocitose, a citotoxicidade e a neutralização.
- IgM: encontra-se no sangue e nos tecidos infectados na forma pentamérica (unidos por cadeias J). Cada unidade consiste em duas cadeias µ pesadas e duas cadeias leves. É o isótipo mais importante na resposta primária. Mostra grande eficiência com antígenos pluripotenciais como bactérias e vírus, e atua na ativação do complemento. É um bom anticorpo neutralizante, embora não tanto quanto a IgG e a IgM. Os níveis elevados de IgM associam-se a hepatite, mieloma, macroglobulinemia de Waldenström, infecções e síndrome de hiper-IgM (imunodeficiência congênita). Os níveis reduzidos de IgM são observados em algumas imunodeficiências de anticorpos.
Portanto, no soro encontraremos, da maior para a menor abundância: IgG, IgA, IgM; as quantidades de IgD e IgE serão indetectáveis em um indivíduo saudável (menos de 1% do total).
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Passagem da IgA para as mucosas
A imunoglobulina A é o isótipo fundamental nas secreções, especialmente nos epitélios dos tratos digestivo e respiratório. As células plasmáticas (estágio final de diferenciação dos linfócitos B) produtoras de IgA encontram-se predominantemente no tecido conjuntivo (lâmina própria) que se situa imediatamente abaixo de muitas superfícies epiteliais.
A IgA sintetizada na lâmina própria é secretada como IgA dimérica associada a uma cadeia de união J (Figura 6.11). Essa forma polimérica de IgA liga-se seletivamente a um receptor de poli-imunoglobulina (poli-Ig-R) que está presente nas superfícies basolaterais das células epiteliais. Uma vez que a IgA dimérica se ligou a esse receptor, o complexo é internalizado na célula e transportado pelo citoplasma da célula epitelial em vesículas de transporte, até a porção apical da célula. Esse processo é denominado transcitose.
Uma vez na zona apical da célula epitelial, o receptor de poli-Ig é clivado por uma endoprotease (favorecida pelo pH ácido do lúmen intestinal), liberando a porção mais externa do receptor ainda unida à IgA dimérica. Esse fragmento do receptor liberado junto com a IgA é denominado componente secretor e parece proteger a IgA dimérica de possíveis degradações enzimáticas; o outro fragmento permanece unido à superfície da célula epitelial.
Os tecidos com maior síntese de IgA são o intestino, o epitélio respiratório, a mama (nos períodos de lactação) e outras glândulas exócrinas, como as salivares e as lacrimais. Acredita-se que a principal função dos anticorpos IgA seja proteger a superfície epitelial dos agentes infecciosos, neutralizando-os.
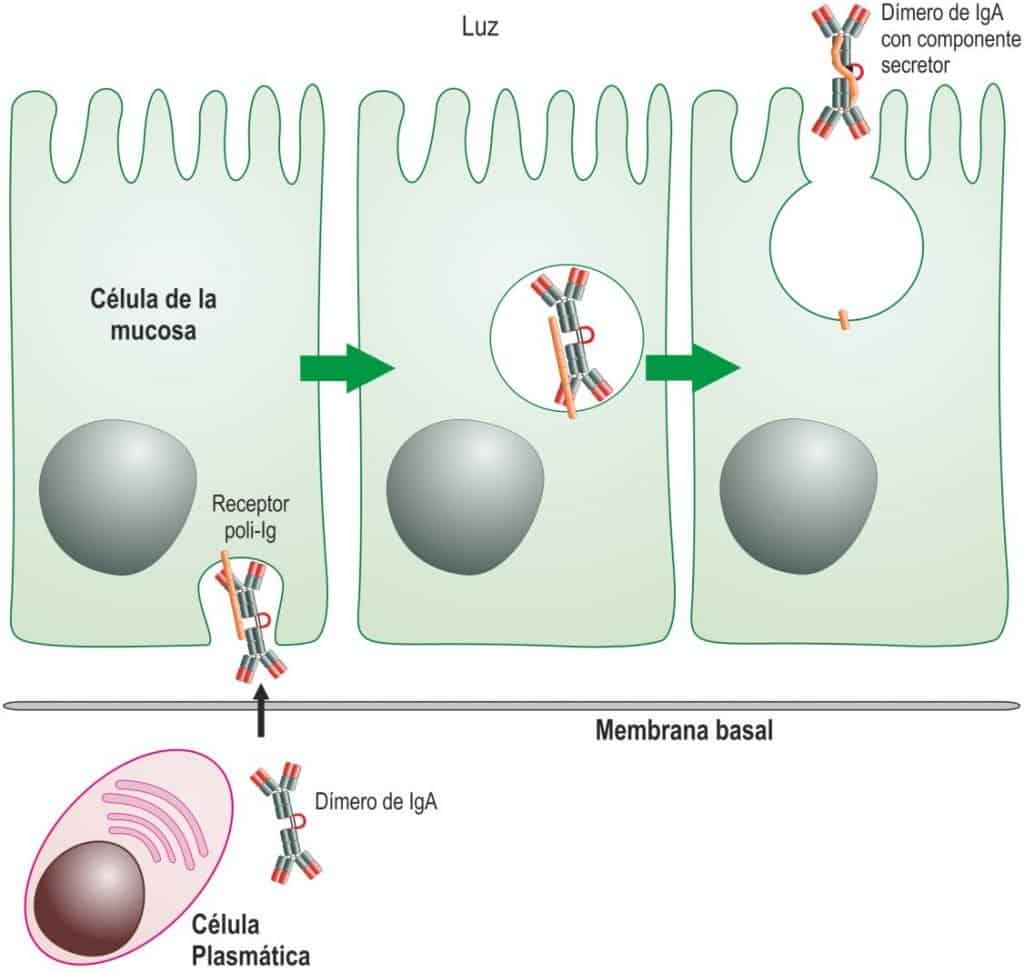
Figura 6.11 Passagem da IgA para as mucosas
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)