Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Preferências na ligação de peptídeos às moléculas MHC
Moléculas MHC de classe I
As moléculas MHC de classe I possuem uma fenda de ligação de peptídeos formada por um assoalho de folhas β antiparalelas sobre o qual repousam duas hélices α (Figura 10.4-AB). Como essa fenda é formada pelos domínios α1 e α2 da cadeia α do MHC de classe I, ou seja, por uma única proteína, é um sítio muito rígido para a ligação dos peptídeos.
Além dessa limitação, é necessário que os peptídeos cumpram outras características para poderem se ligar ao MHC de classe I:
- Comprimento: o comprimento dos peptídeos que se ligam ao MHC de classe I varia entre 8 e 11 aminoácidos, sendo preferenciais os de 9 aminoácidos.
- Extremidades: os peptídeos se ligam às moléculas MHC de classe I por meio de suas extremidades amino e carboxiterminal.
- Resíduos críticos de ancoragem: nas moléculas MHC de classe I existem subbolsos que determinam que tipo de aminoácidos podem se ligar a elas (aromáticos, hidrofóbicos, apolares…). Dessa forma, as moléculas MHC de classe I determinam os peptídeos que podem se ligar (Figura 10.4-CD, Figura 10.5, Figura 10.6-CDE).
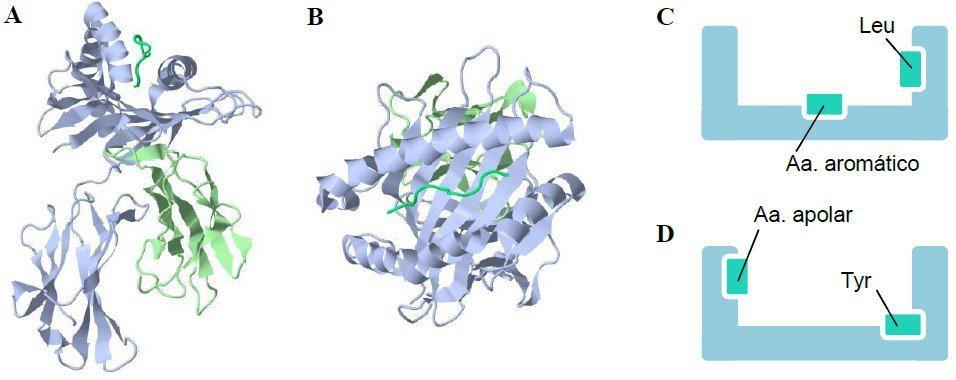
(A) (B) Diagrama em fitas do MHC de classe I, em vista lateral (A) e superior (B). Em ambos os casos, observa-se um peptídeo antigênico na fenda de ligação de peptídeos. (C) (D) Esquema da fenda de ligação de peptídeos das moléculas MHC de classe I, no qual se representam os resíduos críticos de ancoragem dos peptídeos antigênicos. (C) representa a molécula da figura 10.5-A. (D) representa a molécula da figura 10.5-B. (Cortesia de David Pérez Torres, Universidad de Valladolid.)
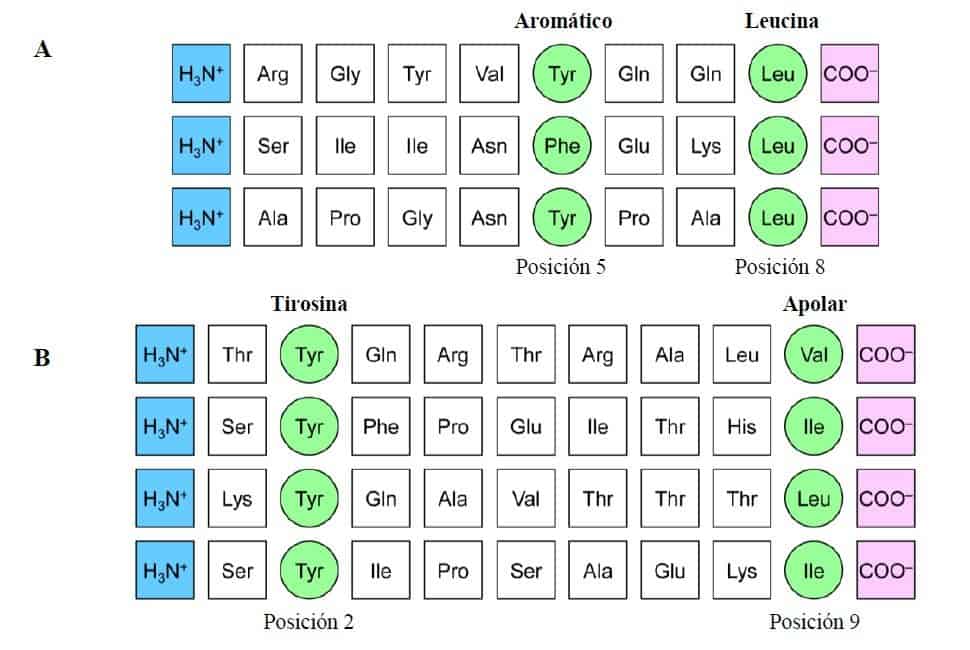
A figura representa as sequências de aminoácidos de peptídeos extraídos de duas moléculas MHC de classe I diferentes. Os resíduos de ancoragem (representados em verde) são diferentes para os peptídeos que se ligam aos diversos alelos das moléculas MHC de classe I, mas são semelhantes para todos os peptídeos que se ancoram à mesma molécula. Os peptídeos também se ligam às extremidades amino-terminal (representada em azul) e carboxiterminal (representada em rosa) das moléculas MHC de classe I. (A) Os peptídeos que se ligam a essa molécula MHC de classe I o fazem por meio de resíduos de ancoragem que não precisam ser idênticos, mas são relacionados: na posição 5 são sempre aromáticos e na posição 8 é sempre leucina. (B) Nessa outra molécula MHC de classe I, o peptídeo ligado deve conter tirosina na posição 2 e um aminoácido
apolar na posição 9. (Redesenhado e modificado de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nova York.)
Moléculas MHC de classe II
A fenda de ligação de peptídeos das moléculas MHC de classe II é composta por duas moléculas distintas unidas de forma não covalente, as cadeias α e β, o que a torna uma fenda mais flexível que a das moléculas MHC de classe I (Figura 10.6-AB). Isso permite que os peptídeos ligados tenham até mais de 20 aminoácidos, de modo que frequentemente ficam pendurados nos dois lados da fenda. Normalmente o peptídeo se liga ao MHC de classe II por 9 resíduos de aminoácidos. Assim como no MHC de classe I, existem resíduos críticos de ancoragem (Figura 10.6-CD).
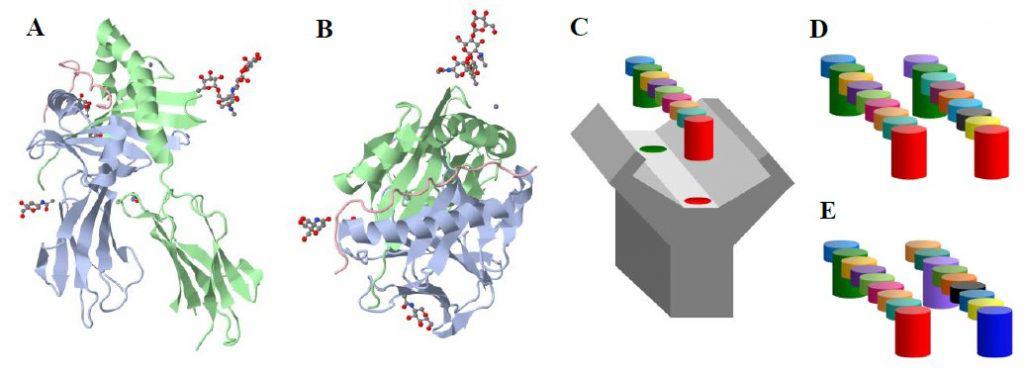
(A) (B) Diagrama em fitas do MHC de classe II, em vista lateral (A) e superior (B). Em ambos os casos, observam-se um peptídeo antigênico na fenda de ligação de peptídeos e a posição de ancoragem de outras moléculas. (C) Representação esquemática da ligação de um nonapeptídeo a uma molécula MHC de classe I ou II. Note que os resíduos críticos de ancoragem (representados em verde e em vermelho) são diferentes em cada molécula MHC. (D) Representação esquemática de um peptídeo com os mesmos resíduos de ancoragem do peptídeo da Figura 10.6-C. (E) Representação esquemática de um peptídeo com resíduos de ancoragem diferentes dos do peptídeo da Figura 10.6-C, de modo que não pode se
ligar à molécula MHC dessa figura. (Cortesia de David Pérez Torres, Universidad de Valladolid.)
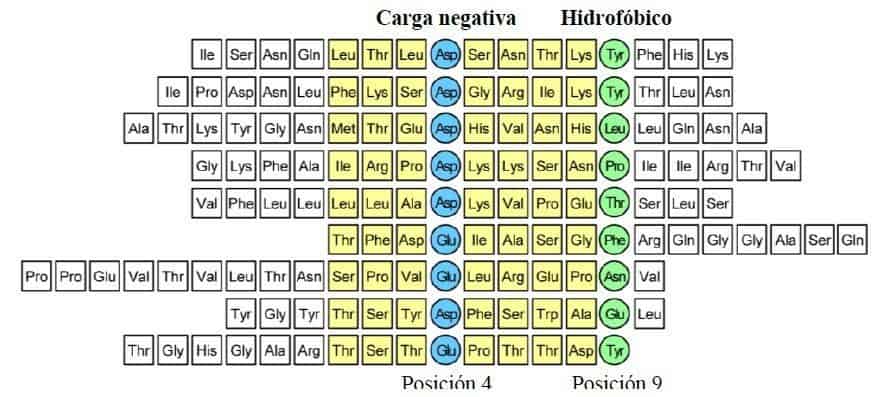
Sequência de peptídeos que se ligam ao alelo HLA-DR3 do MHC de classe II humano. O comprimento dos peptídeos é variável e, por convenção, o primeiro resíduo de ancoragem é designado pelo número 1. A zona de contato entre o peptídeo e o MHC de classe II compreende 9 aminoácidos. Todos os peptídeos compartilham um aminoácido com carga negativa na posição 4 (ácido aspártico ou ácido glutâmico) (representado em azul) e tendem a apresentar um resíduo hidrofóbico na posição 9 (representado em verde). (Redesenhado e modificado de Murphy K et al. (2008) Janeway’s Immuno-
biology (7th Ed.) Garland Science, Nova York.)
Superantígenos
Os antígenos convencionais são processados por células apresentadoras de antígenos e apresentados aos linfócitos T em moléculas MHC de classe II (Figura 10.8-A). Nesse caso, são ativados os linfócitos TH com receptores capazes de reconhecer o antígeno, que começam a produzir citocinas. Os linfócitos TH ativados estimulam apenas os linfócitos B que reagem com o antígeno contra o qual a resposta está sendo gerada, de modo que o sistema imune produz anticorpos somente contra o antígeno que lhe foi apresentado na molécula MHC de classe II.
Os superantígenos (SAg), como a enterotoxina B do Staphylococcus (SEB), que causa intoxicação alimentar em humanos, não podem ser processados pelas células apresentadoras de antígenos. Em vez disso, ligam-se diretamente a regiões constantes das moléculas MHC de classe II das células apresentadoras de antígenos e a regiões constantes do TCR dos linfócitos TH, formando uma ponte entre ambas as estruturas moleculares.
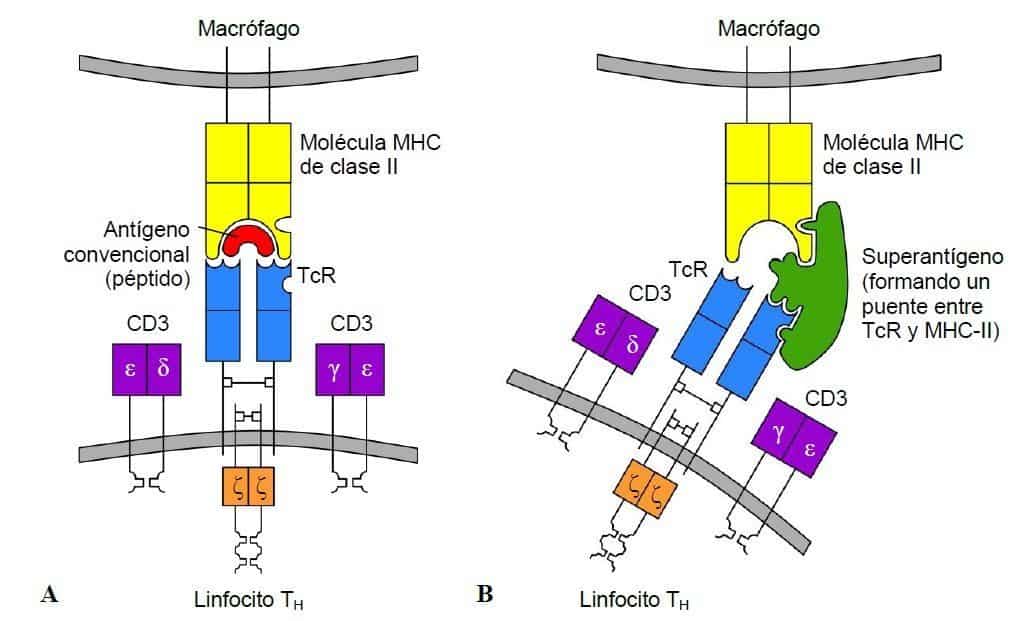
(A) Os antígenos convencionais são apresentados aos linfócitos T em moléculas MHC de classe
II. O reconhecimento entre o MHC, o peptídeo e o TCR ativa a quantidade necessária de linfócitos TH específicos para o antígeno. (B) Os superantígenos são capazes de formar pontes entre as regiões constantes das moléculas MHC de classe II e do TCR. Não ocorre reconhecimento específico entre o superantígeno, o MHC e o TCR, o que ativa uma quantidade excessiva de linfócitos TH, que desembocará em uma resposta perigosa para o indivíduo. (Redesenhado e modificado de Regueiro JR et al. (2003) Inmunología. Biología y Patología del Sistema Inmune. (3ª Ed.) Editorial Médica Panamericana, Madri.)
Os antígenos convencionais apresentados em moléculas MHC de classe II ligam-se apenas aos linfócitos TH que os reconhecem de forma específica, os quais representam uma porcentagem muito menor que 0,01% do repertório linfocitário T total do indivíduo. Já os superantígenos são capazes de se ligar de forma inespecífica a uma multidão de moléculas MHC de classe II e TCR, o que produz a ativação de uma quantidade excessiva de linfócitos TH que, nesse caso, representa entre 2% e 25% do repertório linfocitário T total do indivíduo.
A ativação dos linfócitos TH dá origem à produção de citocinas, entre as quais se destaca a interleucina 2 (IL-2). No caso dos antígenos convencionais, a produção de citocinas é um evento que ocorre em nível local e permite a eliminação adequada do antígeno. No caso dos superantígenos, a superprodução de citocinas pelo número excessivo de linfócitos TH ativados não pode ser contida em nível local e alcança a corrente sanguínea (Figura 10.9). A entrada de citocinas na circulação produz efeitos adversos no indivíduo, como febre, náuseas, vômitos e diarreia. Nos casos mais graves, podem ocorrer choque, falência de múltiplos órgãos, falência circulatória e, inclusive, morte.
A capacidade dos SAgs de linfócitos T de se ligarem de forma inespecífica a grandes quantidades de moléculas MHC de classe II lhes permite desencadear processos perigosos para a vida do indivíduo, o que os torna um grupo de moléculas completamente indesejável.
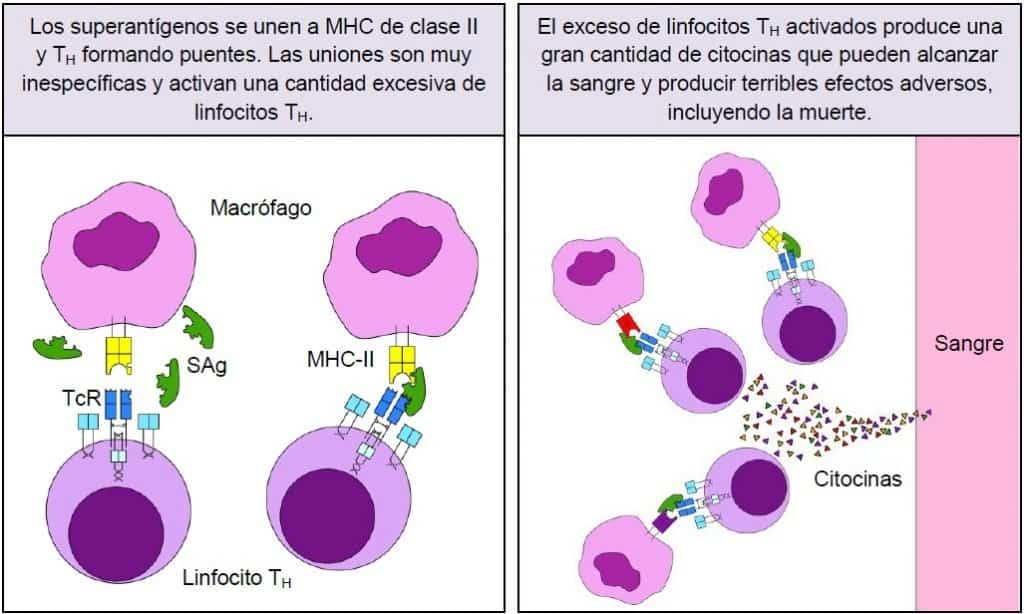
Os superantígenos se ligam ao MHC de classe II e ao TCR, formando uma ponte entre ambas as estruturas. A inespecificidade da ligação permite aos superantígenos ativar até 25% dos linfócitos TH do indivíduo. A grande quantidade de citocinas produzida pelos linfócitos TH ativados não pode ser contida em nível local e entra na corrente sanguínea, produzindo efeitos indesejáveis.
(Cortesia de David Pérez Torres, Universidad de Valladolid.)
Recentemente foi descrita uma nova classe de superantígenos, que ativa de forma específica os linfócitos B e induz sua apoptose, motivo pelo qual são conhecidos como superantígenos de linfócitos B. Os superantígenos de linfócitos B se ligam às regiões FAB das imunoglobulinas fora de suas regiões determinantes de complementaridade. A proteína A do Staphylococcus (SpA), o SAg mais bem estudado dessa classe, reage com as regiões FAB da maioria das imunoglobulinas VH3+, que são expressas em 30-60% dos linfócitos B periféricos humanos. Outros SAgs de linfócitos B são a gp120 do vírus da imunodeficiência humana (HIV), a proteína Fv (uma sialoproteína hepática humana) ou a enterotoxina D do Staphylococcus (SED).
A capacidade dos SAgs de linfócitos B de se ligarem a grandes quantidades de imunoglobulina sérica lhes confere propriedades biológicas potencialmente perigosas.
Apresentação de antígenos não proteicos: sistema CD1
Existem numerosos mecanismos que conferem ao sistema imune a capacidade de gerar uma grande variedade de linfócitos T, o que permite reconhecer uma ampla variedade de antígenos e organizar uma resposta adaptativa adequada contra patógenos de características muito distintas. A maior parte do repertório linfocitário T reconhece peptídeos antigênicos apresentados pelas moléculas altamente polimórficas do MHC. No entanto, existe uma população significativa de células T que não reagem aos antígenos apresentados pelo MHC. Em vez disso, esse conjunto de células T se liga às moléculas de uma família apresentadora de antígenos chamada CD1.
As moléculas CD1 são glicoproteínas semelhantes ao MHC de classe I, ou MHC class I-like, que se especializam na ligação de lipídios e glicolipídios para sua posterior apresentação às células T. Existem cinco genes CD1 localizados no cromossomo 1, denominados CD1A, CD1B, CD1C, CD1D e CD1E. Apesar do polimorfismo alélico limitado do sistema CD1, essas moléculas são capazes de ligar e apresentar uma ampla gama de estruturas lipídicas provenientes de patógenos e, inclusive, de tecidos alheios transplantados.
O CD1 (Figura 10.10) é a primeira glicoproteína expressa pelos timócitos na diferenciação tímica. Estruturalmente, é um heterodímero formado por uma cadeia α, que contém três domínios (α1, α2 e α3), à qual se associa de forma não covalente uma proteína solúvel denominada β2-microglobulina. Entre os domínios α1 e α2 forma-se uma cavidade física que permite a ligação de lipídios, denominada fenda de ligação antigênica (por analogia com a fenda de ligação de peptídeos do sistema MHC).
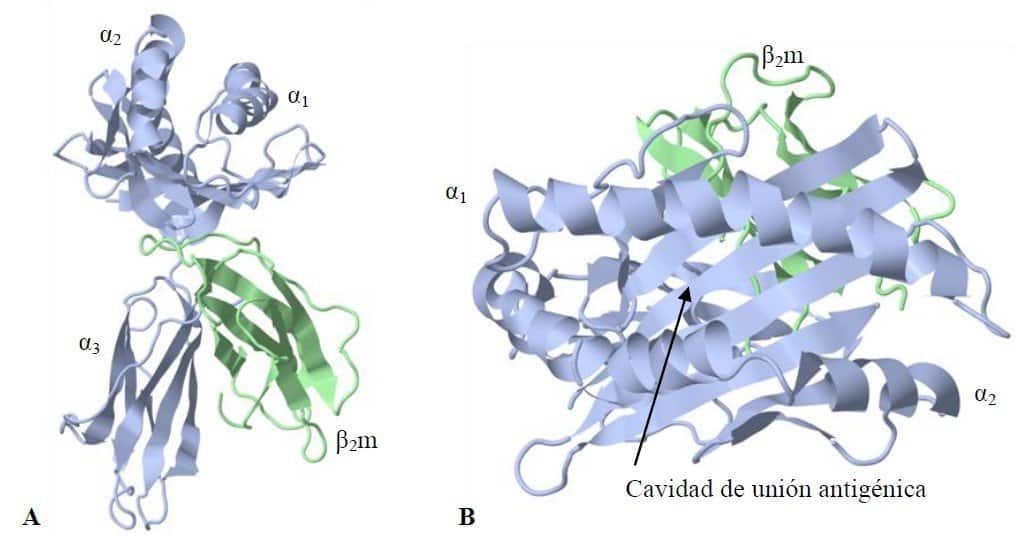
O CD1 representa uma terceira linhagem de moléculas apresentadoras de antígenos mas, diferentemente das moléculas MHC, o tipo de antígeno apresentado é de natureza lipídica. A estrutura cristalina do CD1d1 de camundongo, correspondente ao CD1d humano, adota uma conformação muito semelhante à do MHC de classe I. (A) Note as semelhanças estruturais entre o MHC de classe I e o CD1. O CD1 é formado por uma cadeia α de três domínios e uma molécula associada de β2-microglobulina. Assim como nas moléculas MHC de classe I, os domínios α1 e α2 constituem o local de ligação para os antígenos. (B) Mostra-se a fenda de ligação antigênica do CD1, significativamente mais
estreita que a fenda de ligação de peptídeos das moléculas MHC, mas muito mais profunda que esta e com dois bolsos de natureza hidrofóbica. (RCSB PDB ID 1CD1)
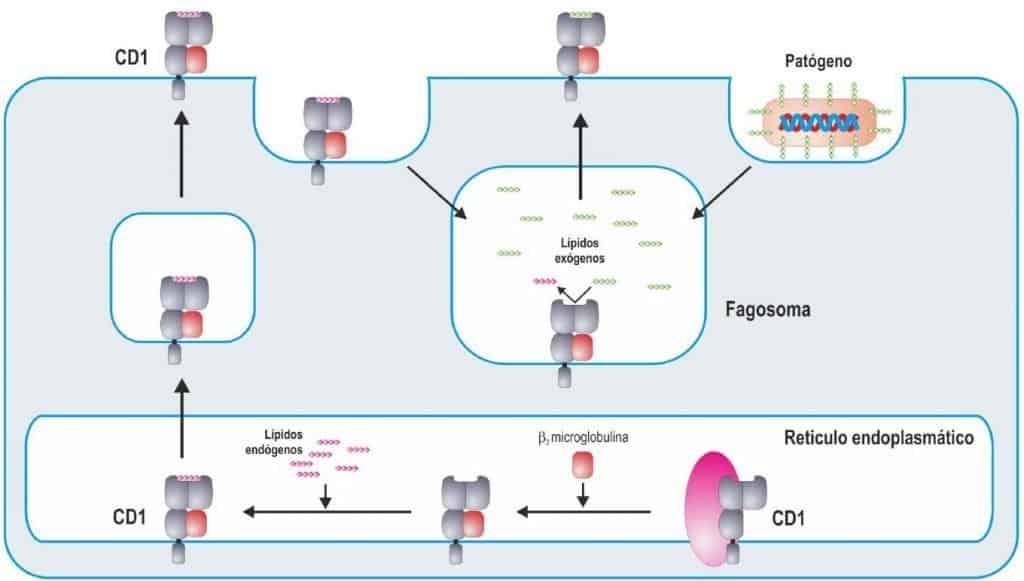
As moléculas CD1 são sintetizadas no retículo endoplasmático rugoso e, depois, sofrem um processo de maturação semelhante ao das moléculas MHC de classe I (Figura 10.11). As cadeias α são glicosiladas por glicosidases do retículo endoplasmático e seu dobramento é mediado por chaperonas como a calnexina, a calreticulina e a ERp57. A associação posterior da β2-microglobulina estabiliza o complexo e, na maioria das moléculas da família, é um requisito indispensável para que o CD1 seja expresso na superfície celular.
(A) Os antígenos convencionais são apresentados aos linfócitos T em moléculas MHC de classe
II. O reconhecimento entre o MHC, o peptídeo e o TCR ativa a quantidade necessária de linfócitos TH específicos para o antígeno. (B) Os superantígenos são capazes de formar pontes entre as regiões constantes das moléculas MHC de classe II e do TCR. Não ocorre reconhecimento específico entre o superantígeno, o MHC e o TCR, o que ativa uma quantidade excessiva de linfócitos TH, que desembocará em uma resposta perigosa para o indivíduo. (Reproduzido de Regueiro J.R.,
López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madri.)
As moléculas CD1 são expressas apenas em células apresentadoras de antígenos profissionais, especialmente em células dendríticas e macrófagos. As moléculas CD1 apresentam os antígenos glicolipídicos aos linfócitos T, mas não aos convencionais, e sim aos duplo-negativos (CD4– CD8–). O CD1d, que é expresso também no epitélio intestinal, apresenta seus antígenos a um tipo especial de linfócito denominado NKT, que apresenta os marcadores característicos dos linfócitos NK, mas é um tipo especializado de linfócito T, com função citotóxica e capacidade de sintetizar citocinas.
Acredita-se que o sistema CD1 seja complementar ao sistema HLA; enquanto as moléculas HLA apresentam uma amostra dos peptídeos do interior celular, as moléculas CD1 apresentarão lipídios. Assim, uma célula sadia apresentará apenas lipídios próprios, mas uma célula infectada pode apresentar lipídios microbianos que então podem ser reconhecidos pelos linfócitos
T. A diversidade lipídica dos seres vivos é muito menor que a de proteínas ou peptídeos; por essa razão, as moléculas CD1 não são polimórficas, já que são projetadas para alojar um número limitado e bem definido de lipídios.