Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
A apresentação do antígeno aos linfócitos T: generalidades
Para que os antígenos possam ser reconhecidos pelos TCR dos linfócitos T, são necessárias duas fases consecutivas:
- Processamento do antígeno: consiste na degradação do antígeno proteico em peptídeos por mecanismos de digestão intracelular.
- Apresentação do antígeno processado: é a associação de alguns dos peptídeos obtidos anteriormente com a fenda de ligação de peptídeos das moléculas codificadas por genes do complexo principal de histocompatibilidade (MHC).
A origem dos patógenos pode ser intracelular ou extracelular (Figura 10.1). No primeiro caso, o antígeno é apresentado pela via citosólica, da qual participam linfócitos TC e moléculas MHC de classe I; já no segundo caso, é apresentado pela via endocítica, que requer a fagocitose do antígeno e a participação de linfócitos TH e moléculas MHC de classe II (Tabela 10.1).
A maioria dos antígenos pode ser apresentada aos linfócitos T por essas duas vias, embora haja alguns que escapam delas, como os antígenos lipídicos.
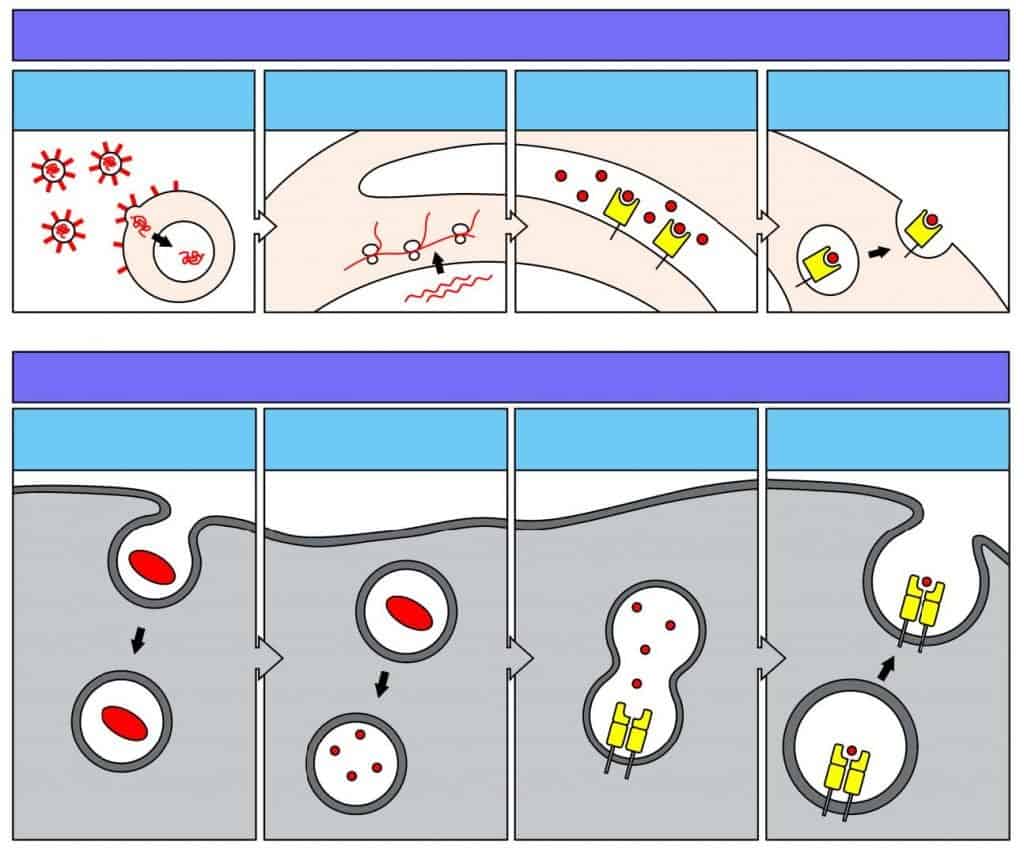
Dependendo de sua procedência, os antígenos podem ser apresentados por duas vias. Os antígenos intracelulares, como o material genético de um vírus, são apresentados na superfície em moléculas MHC de classe I pela via citosólica. Os antígenos extracelulares, como uma bactéria ou seus restos, são apresentados na superfície em moléculas MHC de classe II pela via endocítica. (Redesenhado de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland
Science, Nova York.)
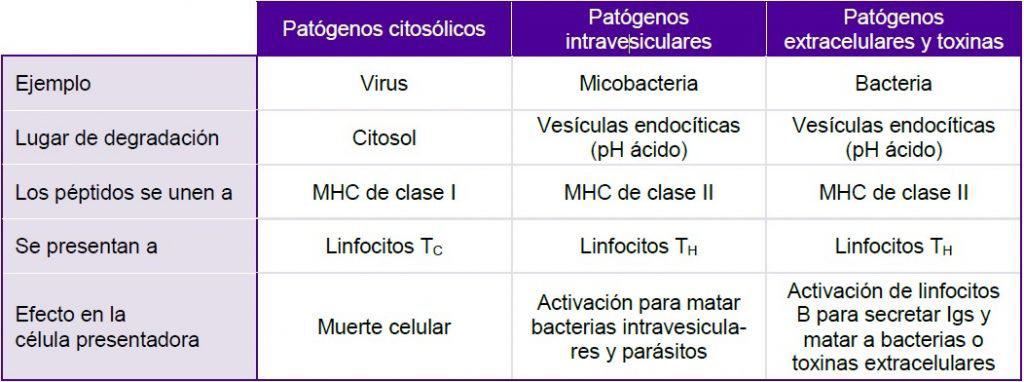
A tabela mostra um resumo das características do processamento e da apresentação de diferentes patógenos.
(Modificado de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nova York.)
Via das moléculas MHC de classe I
As moléculas MHC de classe I são formadas por uma cadeia α à qual se associa uma proteína solúvel denominada β2-microglobulina, ambas sintetizadas de forma independente no retículo endoplasmático. A proteína MHC de classe I é muito instável durante seu dobramento no retículo endoplasmático, por isso se associa a proteínas chaperonas.
No início de seu dobramento, a cadeia α se associa a uma chaperona chamada calnexina. A ligação posterior da β2-microglobulina à cadeia α requer a substituição da calnexina pela calreticulina. Esse complexo se associa à tapasina e se aproxima de um heterodímero formado por TAP-1 e TAP-2. A função do complexo TAP é transportar os peptídeos do citosol para o lúmen do retículo endoplasmático, com consumo de ATP.
As proteínas virais são degradadas em peptídeos de diferentes comprimentos e sequências no citosol pelo proteassoma, um complexo multienzimático formado por quatro anéis empilhados, em cujo interior existem subunidades com capacidade proteolítica denominadas LMP. Essas subunidades, juntamente com TAP-1 e TAP-2, são codificadas por genes localizados na região de classe II do MHC.
Quando os peptídeos estão no lúmen do retículo, eles se encaixam aleatoriamente na fenda de ligação de peptídeos das moléculas MHC de classe I até encontrar o local de ligação adequado. Quando isso ocorre, a molécula MHC de classe I completa seu dobramento e é transportada para o complexo de Golgi, onde passa por processos de glicosilação.
Depois de sofrer as modificações pertinentes no complexo de Golgi, o complexo peptídeo-MHC é liberado por meio de um vacúolo de exocitose para a superfície celular, à qual se ancora à espera de ser reconhecido pelo TCR de um linfócito TC (Figura 10.2).
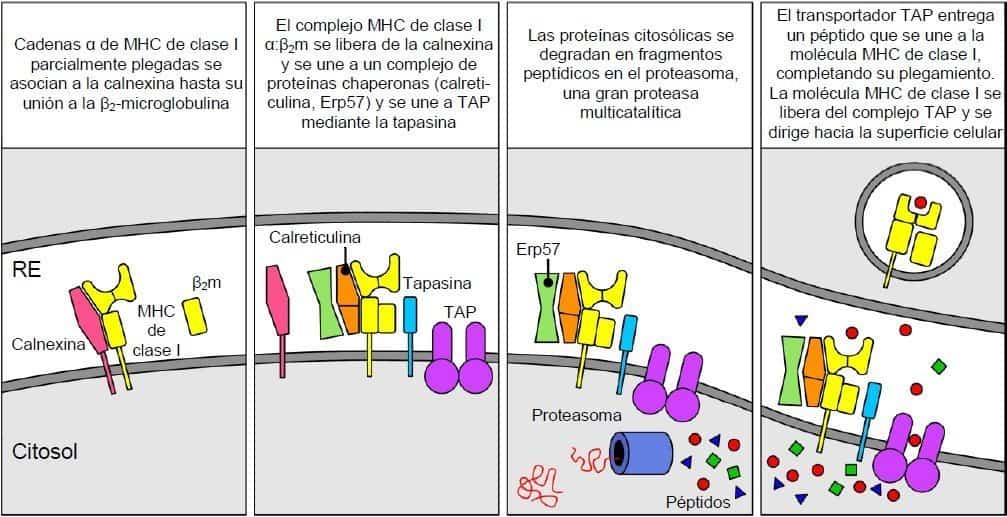
Note que as moléculas MHC de classe I não deixam o retículo endoplasmático (RE) até terem ligado um peptídeo. Depois que o peptídeo se liga à molécula MHC, o complexo peptídeo-MHC deixa o retículo e é enviado ao complexo de Golgi, onde poderá sofrer modificações. Em seguida, o complexo será enviado à superfície celular. (Redesenhado e modificado de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nova York.)