Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Nomenclatura do sistema HLA
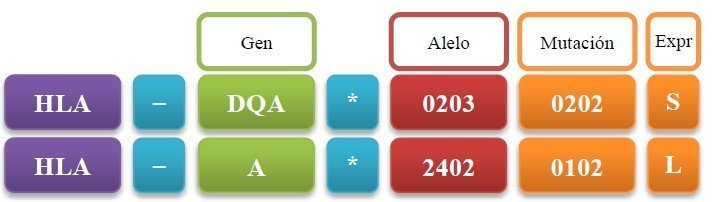
A nomenclatura dos antígenos do sistema HLA é padronizada. O nome começa com a sigla HLA seguida de um hífen. Em seguida, indica-se o gene ao qual nos referimos por meio da letra que o identifica como de classe I (A, B, C, D, E, F, G) ou de classe II (DP, DQ, DR). Se for de classe II, deve-se especificar se é um gene que codifica a cadeia alfa (A) ou a cadeia beta (B). Caso haja vários genes para essa cadeia, como no caso do DRB, deve-se especificar o número do gene. Uma vez especificado o gene, escreve-se um asterisco e, em seguida, o alelo desse gene presente no cromossomo do indivíduo (Figura 9.8).
O alelo é localizado com precisão por um sistema de, no mínimo, quatro números. O primeiro e o segundo algarismos indicam o grupo alélico. O terceiro e o quarto algarismos indicam o alelo específico dentro desse grupo. O sistema pode ser complementado com dígitos que fornecem mais informações: o quinto e o sexto algarismos são usados para indicar mutações em éxons, e o sétimo e o oitavo, para indicar mutações em íntrons. Por fim, pode-se acrescentar uma letra maiúscula (L, N, Q, S) que especifica o nível de expressão da proteína.
Por exemplo, o gene HLA-DRB3*0202 refere-se ao gene que codifica a cadeia beta do tipo três de um antígeno HLA de classe II do tipo DR; especificamente, o segundo alelo do segundo grupo desse gene.
Mecanismos de variabilidade
Uma série de mecanismos de variabilidade torna extremamente difícil encontrar dois indivíduos da população cujas células expressem o mesmo conjunto de antígenos HLA. Esses mecanismos são a poligenia, a codominância, o polimorfismo e a complementação.
Todos esses mecanismos fazem da combinação de antígenos de cada indivíduo uma marca identificadora muito confiável, sendo a probabilidade de erro da ordem de 1/106. Nossas células apresentam tantos e tão variados antígenos HLA em sua superfície para que possa ser apresentado o maior número possível de peptídeos antigênicos diferentes e para termos a garantia de contar com linfócitos T com um TcR adequado. Além disso, deve-se levar em conta que todos esses genes estão muito próximos, em uma região de 1 cM do braço curto do cromossomo 6. Isso faz com que a taxa de recombinação seja muito baixa e, consequentemente, esses genes tendam a ser herdados em bloco, formando o chamado haplótipo HLA. Isso, somado à grande variabilidade já explicada, torna a análise dos antígenos HLA muito útil para diversos testes de identificação, como os testes de paternidade.
Poligenia
A poligenia, ou presença de vários genes diferentes relacionados às mesmas funções, garante que cada indivíduo produza uma grande variedade de moléculas HLA. Por exemplo, as moléculas HLA-A, B e C têm a mesma função e, no entanto, todas elas são sintetizadas em cada uma de nossas células nucleadas (Figura 9.9).
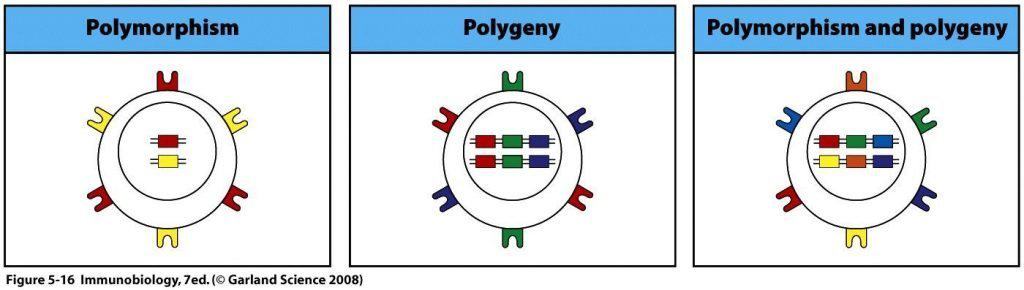
(Reproduzido de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Codominância
Os genes de ambos os cromossomos são expressos. Por isso, na membrana das células encontram-se tanto os antígenos HLA herdados por via materna quanto os herdados por via paterna (Figura 9.10). A poligenia e a codominância têm como consequência o fato de que qualquer célula nucleada do organismo pode apresentar até seis antígenos HLA de classe I diferentes: A, B e C herdados do pai; e A, B e C herdados da mãe.
Polimorfismo
Os genes que codificam os antígenos HLA apresentam um grande número de alelos distintos. Ou seja, há muitas formas diferentes de cada um dos genes (muitas formas de A, muitas formas de B e muitas formas de C para os HLA de classe I) e cada um de nós expressa duas dessas formas em suas células, uma de herança materna e outra de herança paterna.
Os genes do sistema HLA podem ser ordenados de acordo com seu polimorfismo (Figura 9.11):
- HLA de classe I: HLA-B > HLA-A > HLA-C.
- HLA de classe II: HLA-DRB > HLA-DP > HLA-DQ. Dentro dos HLA-DRB, o mais polimórfico é o HLA-DRB1.
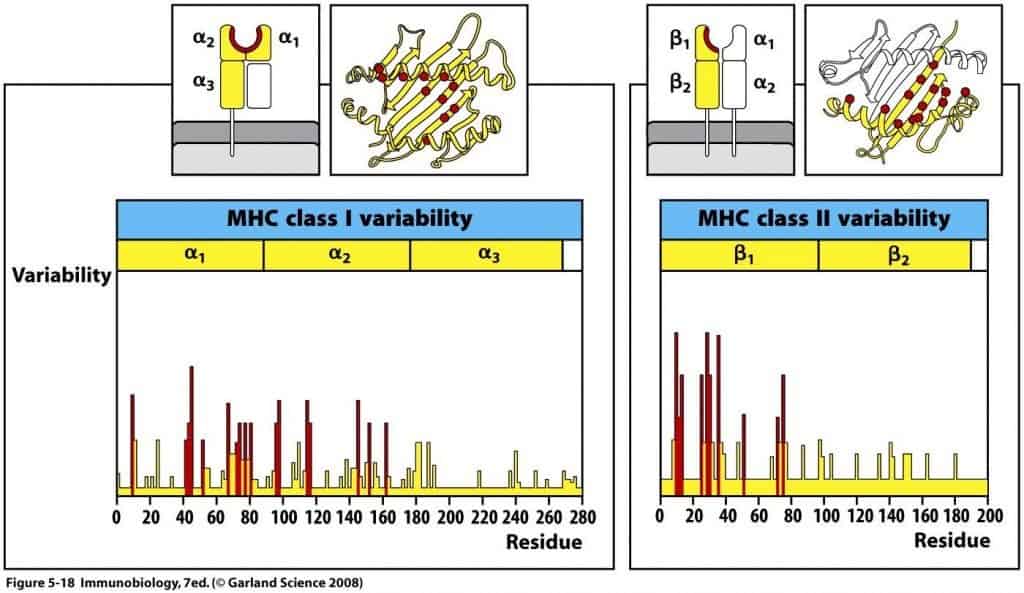
Essa variabilidade não se distribui de forma homogênea por todo o gene, mas se concentra em algumas regiões hipervariáveis, que são as que coincidem com os aminoácidos da cavidade de ligação a peptídeos (Figura 9
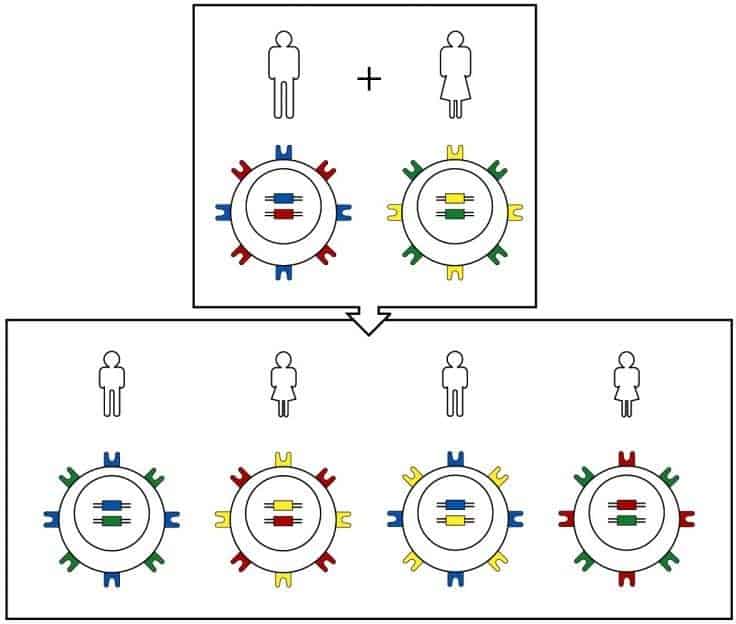
O MHC é tão polimórfico que é provável que quase todos os indivíduos sejam heterozigotos para cada locus. Em um indivíduo, são expressos os alelos de ambos os haplótipos do MHC, e a expressão destes se traduz na presença de seus produtos na superfície celular. (Reproduzido de Murphy
K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
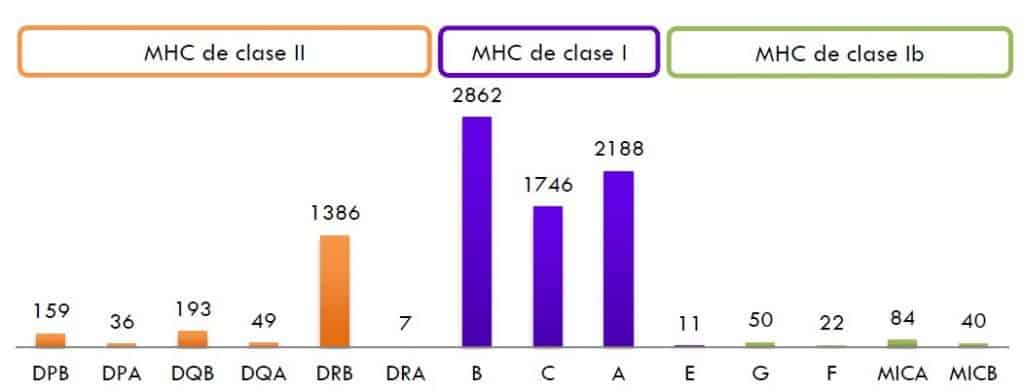
O gráfico mostra o número de alelos conhecidos para cada locus HLA. Os loci mais polimórficos são HLA-B e HLA-DRB. Os números que aparecem são meramente indicativos, já que a descoberta de novos alelos é constante. A altura das barras representa o número de alelos do sistema HLA atribuídos pelo WHO Nomenclature Committee for Factors of the HLA System (atualizado em janeiro de 2013).
(Reproduzido de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Complementação
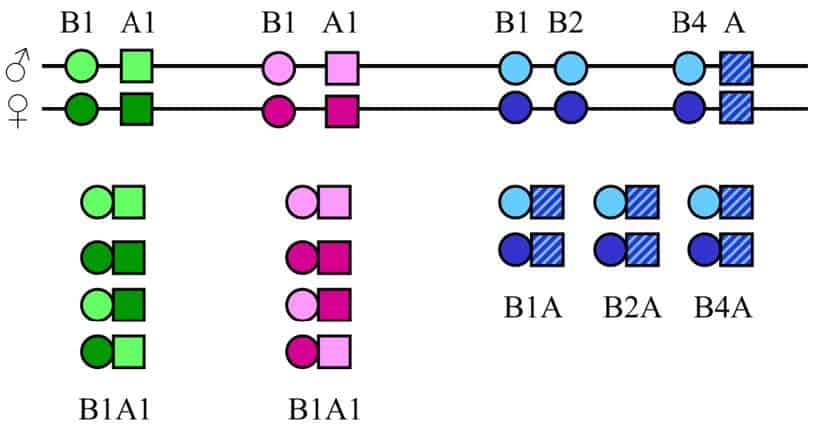
Existe um último mecanismo de variabilidade, presente apenas nos antígenos HLA de classe II, denominado complementação (Figura 9.13). As moléculas HLA de classe II são compostas por uma cadeia pesada beta e uma cadeia pesada alfa, que são sintetizadas de forma independente no retículo endoplasmático. Isso faz com que a união de uma cadeia alfa com uma cadeia beta ocorra ao acaso, com dois possíveis resultados:
- Complementação em cis: uma cadeia alfa materna se une a uma cadeia beta materna ou uma cadeia alfa paterna se une a uma cadeia beta materna.
- Complementação em trans: uma cadeia alfa materna se une a uma cadeia beta paterna ou uma cadeia alfa paterna se une a uma cadeia beta materna.
Fisiologia do sistema HLA
A função fisiológica das moléculas de HLA de classe I e de HLA de classe II consiste em apresentar peptídeos antigênicos, depois de o antígeno ter sido processado, aos linfócitos Tc e Th, respectivamente, dado que os TcR, ao contrário dos BcR, não são capazes de reconhecer o antígeno em seu estado nativo.
As moléculas de HLA também têm grande relevância em outras condições não fisiológicas, como: no transplante de órgãos, na identificação de indivíduos em medicina legal e também por conferirem suscetibilidade a certas doenças autoimunes. As moléculas de HLA só são expressas na superfície celular quando estão ligadas ao peptídeo, passando então a ser denominadas complexo antigênico.
Quando uma molécula de HLA de classe I da superfície de qualquer célula nucleada se liga ao seu TcR apropriado, sua cavidade de ligação a peptídeos já contém o peptídeo do antígeno. O correceptor do linfócito Tc, o CD8, associa-se ao domínio α3 da molécula de HLA de classe I (Figura 9.14).
Quando uma molécula de HLA de classe II é expressa na superfície de uma célula apresentadora de antígenos, com o peptídeo já ligado à sua cavidade de ligação a peptídeos, e se liga ao TcR do linfócito Th, o correceptor, o CD4, ligar-se-á ao seu ligante natural, que é o domínio β2 da molécula HLA de classe II (Figura 9.14).
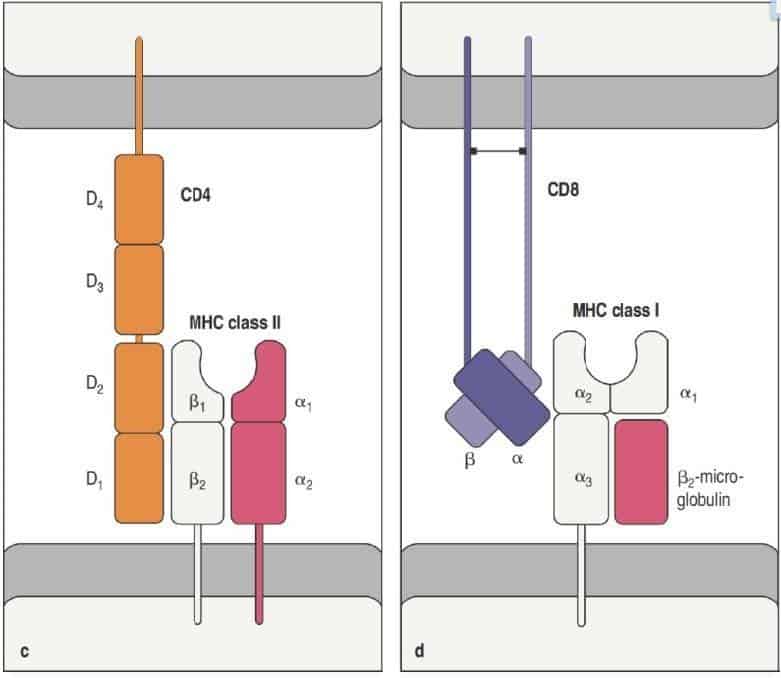
(Reproduzido de Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, Nueva York.)
Os correceptores CD4 e CD8 são glicoproteínas que facilitam a ligação intercelular e, além disso, potencializam a transmissão de sinais para o interior. Uma vez que o complexo antigênico é reconhecido pelo TcR, os linfócitos T começam a produzir citocinas, que atuam como sinais químicos. As citocinas atraem mais linfócitos T e induzem a proliferação de linfócitos B para que produzam anticorpos. Os anticorpos são liberados na circulação sanguínea para encontrar e ligar mais antígenos, de modo que os patógenos não possam se reproduzir e causar doenças.
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
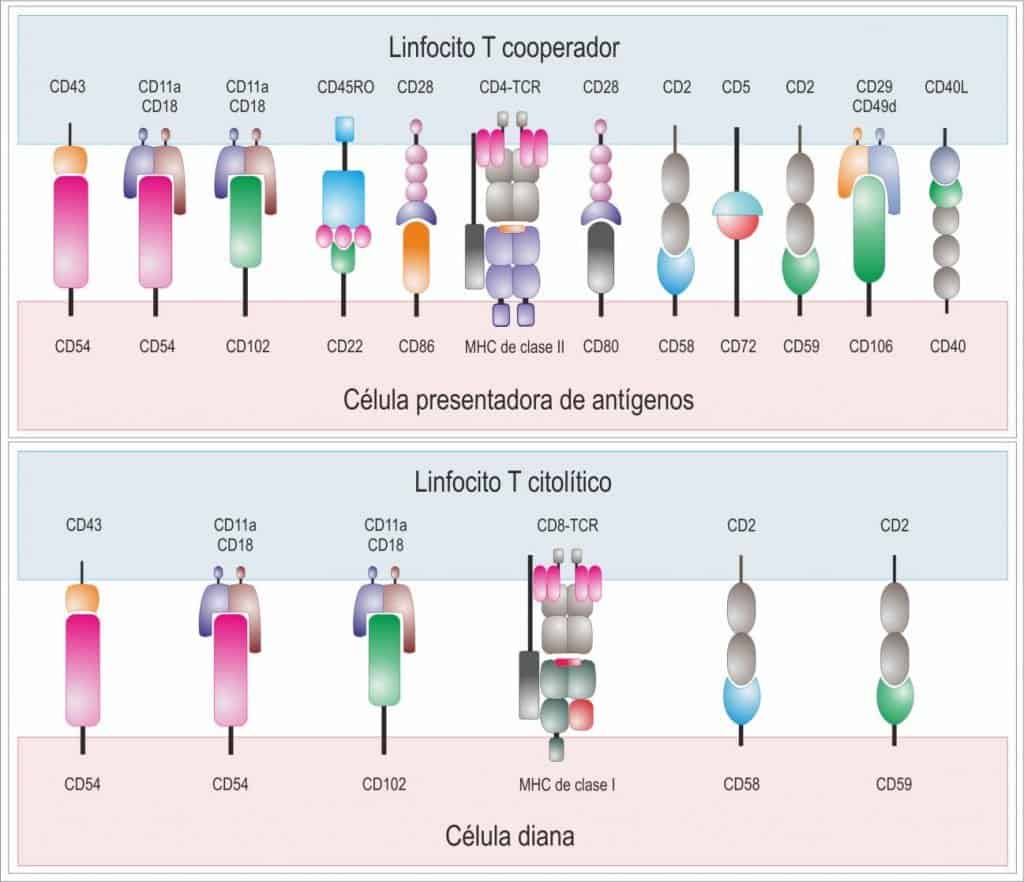
Em muitos casos, a ligação do complexo antigênico ao TcR não é suficiente para dar origem a uma resposta eficaz, sendo necessária a participação de uma série de moléculas acessórias, cuja função é contribuir para o desenvolvimento de uma resposta imune efetiva, facilitando a interação entre as diferentes células. Forma-se assim uma sinapse imunológica entre os linfócitos T e a célula que apresenta o antígeno, mais intensa entre os linfócitos T auxiliares e as células apresentadoras de antígenos do que a que se produz entre os linfócitos T citotóxicos e suas células-alvo (Figura 9.15).
Na sinapse imunológica participam moléculas muito variadas, entre as quais se destacam:
- Receptores específicos de antígeno: BcR e TcR.
- Correceptores CD4 e CD8.
- Moléculas apresentadoras de antígeno: HLA de classe I e classe II.
- Receptores de moléculas adaptadoras (opsoninas): receptores para proteínas do complemento (CD21) e receptores para o Fc das imunoglobulinas (CD16).
- Receptores de citocinas: para a IL-1 (IL-1R ou CD121a) e para a IL-2 (CD25).
- Moléculas coestimuladoras que intervêm na ativação e na diferenciação: CD28 (linfócitos T) e CD80 ou CD86 (na APC), CD19, CD20 (linfócitos B), CD2 (linfócitos T e NK), CD45 (marcador pan-leucocitário); CD40 (na APC ou no linfócito B) e CD40L (no linfócito T).
- Moléculas induzidas após a ativação: CD25, CD38 e CD69.
- Moléculas de adesão celular: CD2, CD11(a,b,c), CD18.
- Marcadores do estado de diferenciação celular: CD45R0 (memória) ou CD45RA (virgens).