Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Processamento dos genes das imunoglobulinas
Os segmentos gênicos que codificam as regiões variáveis das imunoglobulinas encontram-se muito afastados no genoma de todas as células do organismo, exceto nas da linhagem B.
Com a disposição descrita dos genes em segmentos situados em diferentes cromossomos, a produção de imunoglobulinas é impossível se nada mais acontecer. A aproximação desses genes ocorre na medula óssea durante o processo de maturação dos linfócitos B e se dá por um processo de recombinação entre os diferentes segmentos gênicos denominado recombinação somática. Esse processo não só participa da geração da diversidade, como é indispensável para que as imunoglobulinas sejam expressas e, por essa razão, apenas os linfócitos B podem produzi-las.
Processamento das cadeias pesadas
Nas cadeias pesadas, ocorrem 2 recombinações somáticas. Em uma primeira etapa de recombinação, um gene D se combina novamente ao acaso com um gene J, ficando contíguos no cromossomo 14. Depois, também ao acaso, um gene V se combina com o fragmento D-J que já havia sido formado anteriormente (Figuras 8.2 e 8.4).
Em ambas as recombinações, há perda de grandes sequências de DNA e, como resultado, os 3 fragmentos V, D e J, que estavam separados no início, ficam contíguos. Esses 3 fragmentos (V-D-J) formam um éxon para o domínio variável da cadeia pesada. Os demais domínios constantes serão codificados por um gene C (há 9 genes C, um para cada classe e subclasse de imunoglobulina).
Processamento das cadeias leves
No caso da cadeia leve, o mecanismo de recombinação somática ocorre uma vez (entre um fragmento V e um J) (Figuras 8.3 e 8.4). Na cadeia κ, um gene V e um gene J (separados no genoma) se combinam ao acaso, gerando um éxon que, quando traduzido em proteína, codificará o domínio variável da cadeia leve. Para o domínio constante não há problema, pois existe apenas um gene C. No caso da cadeia λ ocorre o mesmo, mas é expresso o gene C que segue o J escolhido ao acaso. Dessa forma, elimina-se um grande segmento de DNA circular.
Esse fenômeno de rearranjo gênico ocorre durante a maturação do linfócito B na medula óssea. Essa recombinação possibilita a síntese de um RNA mensageiro com os segmentos V, J e C necessários, que serão alinhados por excisão de íntrons (grandes segmentos de RNA são eliminados durante o processamento).
Mecanismo de recombinação somática
Para que o mecanismo de recombinação somática seja possível, existem dois elementos indispensáveis: as recombinases e as sequências sinalizadoras de recombinação (RSS).
As recombinases (Figura 8.4) são enzimas específicas que formam heterodímeros e são conhecidas como RAG-1 e RAG-2. Por exemplo, no caso da λ, elas se ligam a um gene V (V3) e a um gene J (J2).
As sequências sinalizadoras de recombinação (RSS) (Figura 8.4) são sequências de nucleotídeos muito conservadas que flanqueiam os segmentos gênicos. Esses sinais são formados por uma sequência de 7 pares de bases (heptâmero) e outra de 9 (nonâmero), separadas por um DNA espaçador não conservado de 12 ou 23 pb.
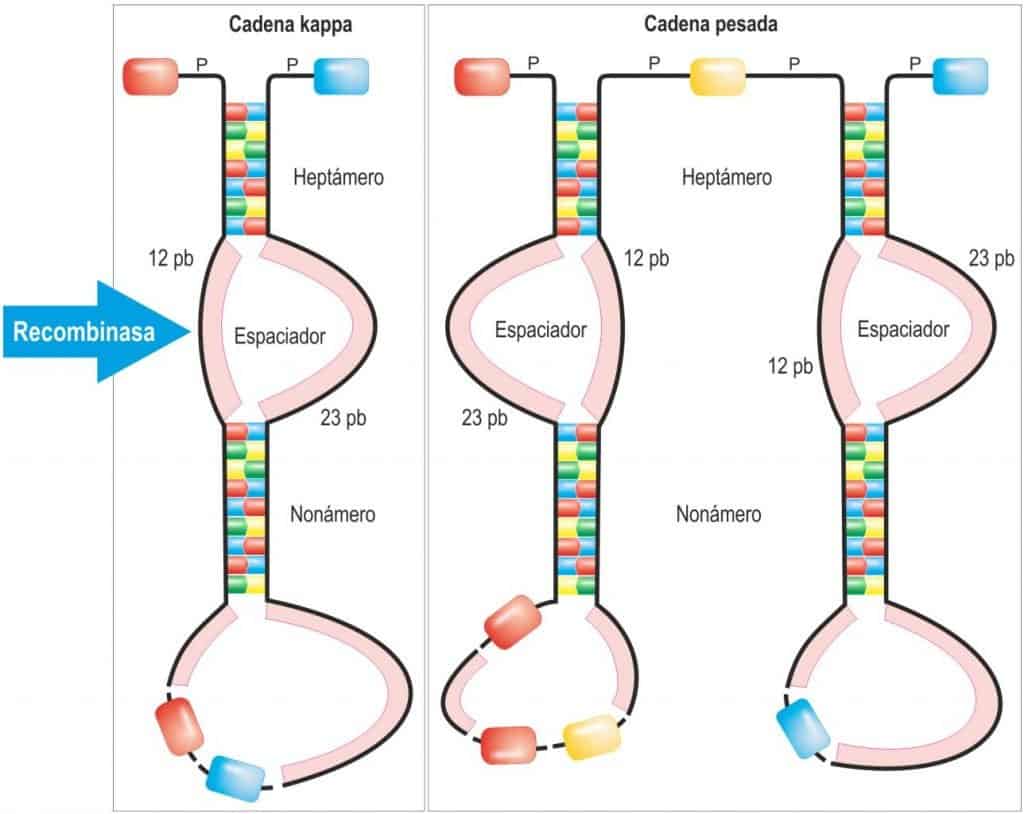
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Existem RSS após cada fragmento V e antes de cada segmento J. Os fragmentos D têm RSS anteriores e posteriores, pois participarão de 2 recombinações somáticas (a primeira pela extremidade posterior, ao se combinarem com um segmento J, e a segunda pela anterior, quando o fazem com um segmento V).
As sequências dos heptâmeros e nonâmeros das RSS são complementares entre si, de modo que as sequências posteriores do segmento V serão complementares às anteriores do segmento D. E as posteriores do segmento D serão complementares às anteriores do segmento J (esse fato permite a formação de palíndromos).
O comprimento das regiões espaçadoras parece desempenhar um papel importante para que o processo de recombinação somática ocorra de forma ordenada (VDJ), já que ele se produz unicamente entre um par heptâmero-nonâmero separado por 12 pares de bases (pb) e outro par heptâmero-nonâmero separado por 23 pb. Esses espaçadores de 12 pb e de 23 pb situam-se de forma alternada nos diferentes segmentos gênicos.
Por isso, nas cadeias pesadas não pode ocorrer uma recombinação VJ, já que ambas as regiões são flanqueadas por espaçadores de 23 pb. Mas elas podem, sim, se recombinar com os segmentos D, já que estes são flanqueados por espaçadores de 12 pb.
Os sinais de recombinação são reconhecidos pelas enzimas especializadas (recombinases) RAG-1 e RAG-2, que, ao se aproximarem entre si, são responsáveis pela aproximação ao acaso entre os fragmentos, formando uma alça no DNA, que é estabilizada pelos palíndromos entre os heptâmeros e nonâmeros sinalizadores. Em seguida, as recombinases resolvem a alça cortando, ligando os 2 fragmentos e excisando as extremidades soltas (na forma de DNA circular). Tudo o que estava na alça é perdido e irrecuperável. Nesse corte e junção dos fragmentos, que tem imprecisões, nucleotídeos são arrastados ao acaso e, às vezes, nucleotídeos são inseridos. Isso constitui um mecanismo de aumento da variedade das Igs, como veremos adiante, mas também pode alterar a fase de leitura, dando origem a códons de parada (STOP) prematuros ou a proteínas não funcionais (abortivas).
Como o sistema de rearranjo tem muitas imprecisões, tanto nos linfócitos B quanto nos T podem ocorrer erros ao rearranjar os fragmentos, produzindo ao acaso proteínas abortivas (códon de parada ou mudança da fase de leitura), sem nenhuma utilidade (rearranjos não produtivos) (Figura 8.5). Por isso, tanto no processamento das cadeias pesadas quanto das leves, rearranjos iniciais não produtivos podem ser resgatados (desde que restem fragmentos V, D e J disponíveis) e os cromossomos correspondentes podem ser rearranjados novamente ao acaso até que se obtenham rearranjos produtivos; portanto, o limite está no número de fragmentos que restam. Uma vez obtido um rearranjo produtivo, existe um sinal que interrompe o processo.
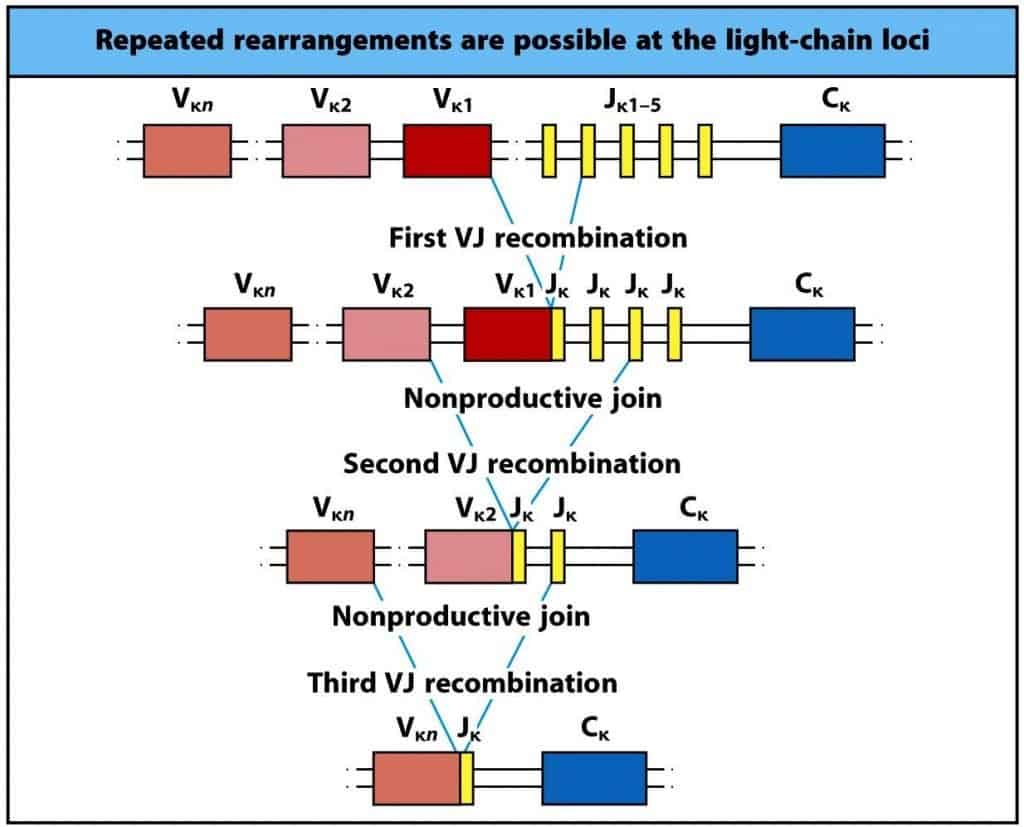
(Reproduzido de Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)