Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Mecanismos de amplificação do repertório
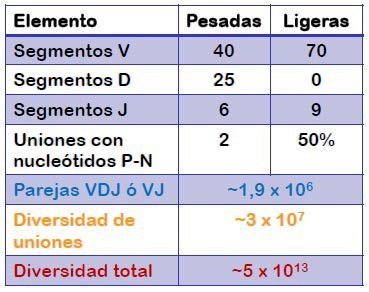
A diversidade das imunoglobulinas deriva, por um lado, da variabilidade das cadeias leves e pesadas e, por outro, das diversas possibilidades de essas cadeias se unirem entre si. Dessa forma, obteríamos uma diversidade potencial de imunoglobulinas de 4,5 milhões. No entanto, sabe-se que o nosso repertório linfocitário alcança a ordem de 1011 (Figura 8.10); por isso existem dois mecanismos adicionais: a diversidade juncional e as hipermutações somáticas.
Diversidade juncional
Esses mecanismos ocorrem no momento do rearranjo genético, durante a maturação do linfócito B na medula óssea. Eles se produzem porque a recombinação somática VDJ (nas cadeias pesadas) ou VJ (nas cadeias leves) não é um mecanismo de alta precisão. Assim, o corte e a junção entre os diferentes fragmentos nem sempre são iguais, mesmo que participem os mesmos fragmentos. Constitui um mecanismo de diversidade por várias causas:
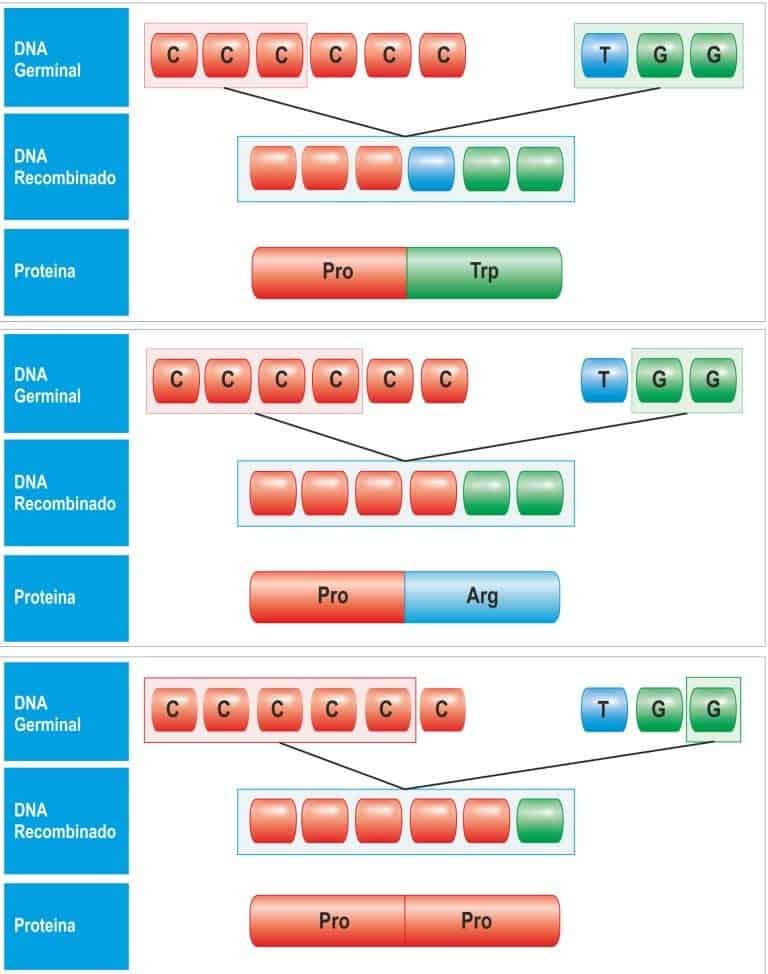
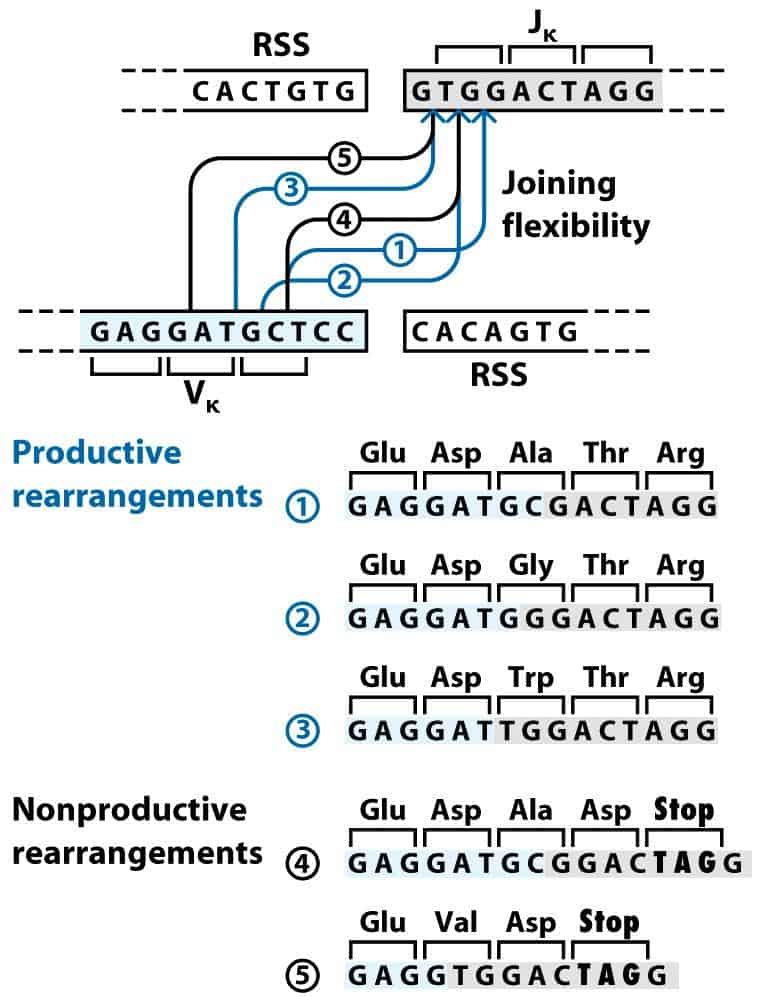
- A própria flexibilidade das junções (Figura 8.6): o ponto de corte do DNA nos 2 fragmentos pode variar, produzindo códons alternativos. Ou seja, a própria recombinase não precisa cortar os fragmentos sempre no mesmo ponto. Dependendo do ponto de corte e de entre quais nucleotídeos ocorre a junção, a fase de leitura do DNA pode mudar e, com isso, aminoácidos diferentes podem ser introduzidos na proteína; embora nem todas as junções originem rearranjos VJ ou VDJ produtivos, pois podem ser introduzidos códons de terminação precoces (Figura 8.7).
(Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
- A adição de nucleotídeos extras, que ocorre por 2 processos distintos:
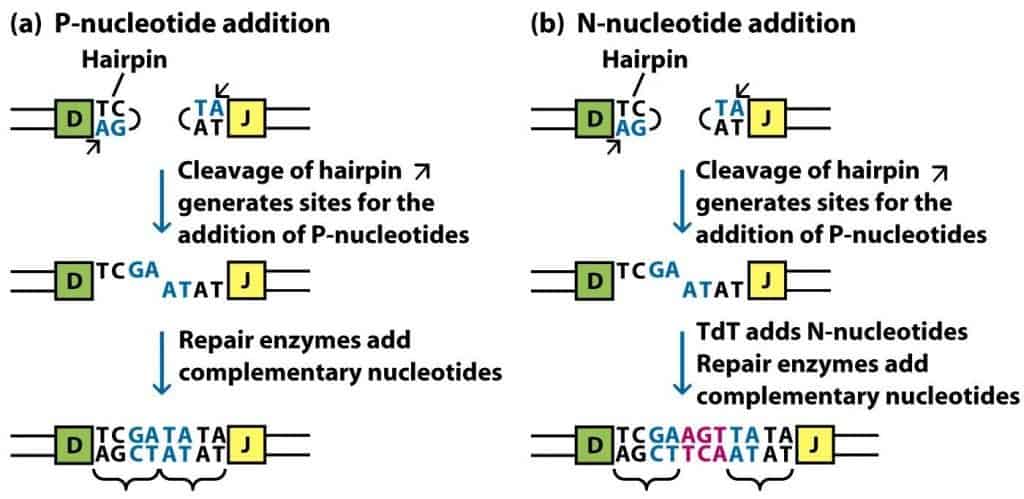
- Os nucleotídeos arrastados nos rearranjos, após a clivagem do DNA de fita simples, que ficam pendurados na extremidade, dobram-se para formar uma estrutura em grampo (Figura 8.8-A) que protege o DNA. Quando esse grampo é rompido, esses nucleotídeos ficam “pendurados” e a ação de enzimas de reparo adiciona os nucleotídeos complementares a essa fita, gerando uma sequência palindrômica; por isso esses nucleotídeos são chamados de nucleotídeos P. Nesse processo, os nucleotídeos P são arrastados ao acaso tanto nas cadeias leves quanto nas pesadas (e são responsáveis por um grande aumento da variabilidade, mas também por possíveis mudanças da fase de leitura que dariam origem a proteínas abortivas).
- Mas, além disso, a enzima desoxinucleotidil transferase terminal (TdT) pode adicionar alguns poucos nucleotídeos (em número variável) ao acaso, sem molde, nas regiões de junção (Figura 8.8-B). Sua incorporação gera uma diversidade considerável. Esses nucleotídeos são chamados de nucleotídeos N. Essa adição de nucleotídeos ao acaso pela TdT ocorre sempre e em 2 sítios (entre os fragmentos D e J e entre os fragmentos V e D) nas cadeias pesadas. Já na cadeia leve ocorre em um único sítio (entre o fragmento V e o J) e apenas em 50% das vezes. Observou-se que o comprimento dos nucleotídeos N pode chegar a até 15.
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Hipermutação somática
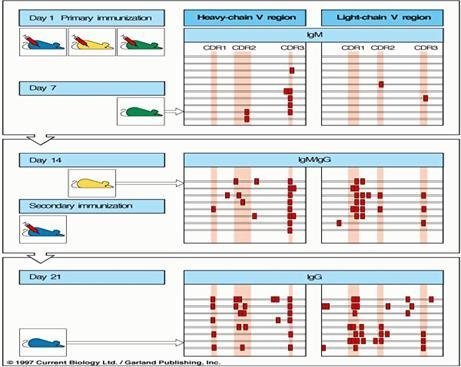
Esse mecanismo indutor de variabilidade atua nos órgãos linfoides secundários, depois que um linfócito B maduro foi ativado em resposta a um antígeno. Experimentalmente, foi possível comprovar que, ao introduzir um antígeno em um camundongo, depois de alguns dias aparecem mutações nas regiões variáveis tanto das cadeias pesadas quanto das leves (Figura 8.9). Depois, se há imunização secundária, observam-se ainda muito mais mutações nas regiões variáveis. As mutações pontuais introduzidas nesse processo podem ou não alterar a sequência de aminoácidos da região variável.
As alterações que modificam a sequência proteica (mutações produtivas) concentram-se nas regiões que codificam as regiões hipervariáveis (CDRs, de interação com o antígeno), enquanto as que não modificam a sequência (mutações silenciosas) costumam ocorrer nas regiões flanqueadoras. Esse processo ocorre ao acaso no momento em que a célula B responde ao antígeno.
O resultado pode ser nefasto, dando origem a códons de terminação que geram proteínas truncadas ou à codificação de imunoglobulinas que não reconhecem o antígeno. Nesses casos, os linfócitos B não progridem.
No entanto, também existe a possibilidade de que, como consequência da mutação, sejam obtidos anticorpos com maior afinidade, que permitam um melhor reconhecimento do antígeno. Por isso, esse mecanismo também é chamado de maturação de afinidade. Esses clones serão selecionados, o que permitirá um refinamento da resposta imune.
Esse sistema de amplificação do repertório não está incluído no cálculo dos diferentes receptores que podem ser gerados; no entanto, é mais um mecanismo de geração de diversidade.
(Reproduzido de Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)