A imunocompetência é a capacidade de reconhecer um antígeno de forma específica. Essa capacidade é adquirida na medula óssea.
Os linfócitos virgens amadurecem e se diferenciam na medula óssea. De lá saem para a circulação e chegam aos órgãos linfoides secundários. As células estão constantemente circulando, já que são células virgens e têm grande capacidade de se mover (as células ativadas criam mecanismos para permanecer no lugar onde foram ativadas). Aos órgãos linfoides secundários chegam os antígenos dos patógenos que infectaram o organismo.
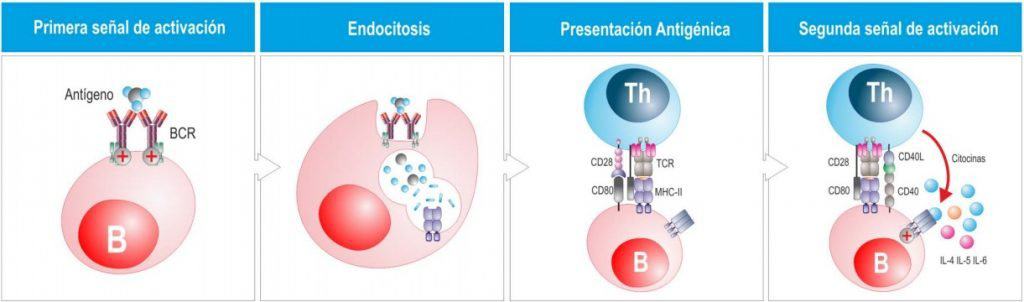
As bactérias, os vírus e outros agentes patogênicos, inclusive as células tumorais, expressam antígenos estranhos em sua membrana. Os receptores BcR do linfócito B interagem com seu Ag específico.
Depois da interação do linfócito B com o antígeno, ele prolifera e cria um clone de linfócitos com o mesmo BcR. Esse primeiro contato com o antígeno (por meio de um epítopo) implica a ativação parcial do linfócito B, que expressa, entre outras moléculas, receptores para citocinas e moléculas acessórias.
Então, a célula B se comporta como um fagócito e internaliza o patógeno. Degrada-o, processa-o e o apresenta aos linfócitos T nas moléculas MHC. A célula B passará então a atuar como uma célula apresentadora de antígenos. A diferença em relação a outra célula apresentadora de antígenos é que a especificidade dos linfócitos B pelos antígenos é muito mais alta → interage com eles em concentrações muito mais baixas de antígenos. Isso, junto com a interação do CD28 com o CD80/86 da célula B, ativa o linfócito T.
Essa interação entre os linfócitos T e B permite que ocorra o segundo sinal de ativação dos linfócitos B. O linfócito T expressa CD40L, que interage com o CD40 do linfócito B, e isso estimula a via de formação dos plasmócitos → convertem as células B em plasmócitos para que sintetizem anticorpos. As citocinas liberadas pelo linfócito T são as responsáveis pela produção de uma Ig ou de outra.
As células Th (CD4+) que reconhecem o peptídeo apresentado pelo MHC de classe II do linfócito B são ativadas e começam a proliferar e a se diferenciar para ativar os linfócitos B. Durante a apresentação antigênica ocorrem uma série de interações entre os linfócitos B e os Th. Uma vez diferenciados, os linfócitos Th2 efetores não abandonam os órgãos linfoides secundários, como ocorre com os linfócitos Th1 ou Tc, mas permanecem nos órgãos linfoides e enviam sinais que ativam e expandem o clone de linfócitos B específico para o antígeno que haviam sido parcialmente ativados. As citocinas liberadas pela célula Th2 indicam a troca de isotipo e também o tipo de patógeno presente no meio.
O linfócito B atua de duas formas:
- Contatos diretos membrana-membrana por meio de uma molécula CD40 - CD40L (parte do segundo sinal estimulador junto com as citocinas).
- Via fatores solúveis (IL-4, IL-10, IL-13).
Dependendo do tipo de citocina, serão produzidos diferentes isotipos. Tudo isso ocorre no linfonodo.
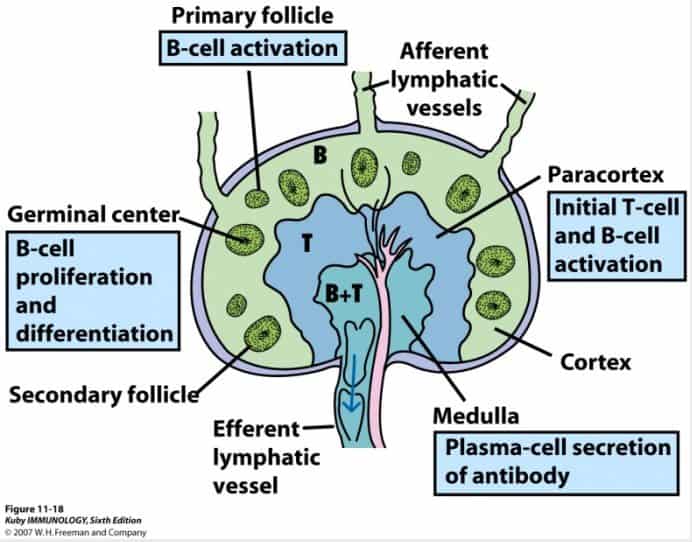
Nos linfonodos, as células B ativadas proliferam nos centros germinativos, situados no córtex.
Folículo linfoide primário
Primeiro clone de células B ativadas, que estão proliferando. Passado um tempo (aproximadamente uma semana), o folículo primário se converte em um folículo linfoide secundário, que tem uma zona central mais densa chamada centro germinativo, onde encontramos células B em divisão, e uma zona periférica menos densa formada pelos linfócitos B que não proliferam, chamada manto. Os linfócitos B que proliferam no centro germinativo mudam de morfologia e se distinguem dos que estão em repouso por serem maiores. Os centroblastos são as células B que reconheceram o Ag e estão se dividindo, e os linfócitos B resultantes da divisão anterior são os centrócitos, que já deixaram de se dividir. Por fora há uma camada de linfócitos T.
As células em proliferação sofrem uma série de mudanças, melhorando sua afinidade (hipermutação somática) e sua efetividade contra o patógeno.
Células dendríticas foliculares ou interdigitantes
Dentro do centro germinativo. Apresentam antígenos (de microrganismos ou bactérias) aderidos aos seus dendritos por processos de opsonização. O que essas células captam são moléculas de imunoglobulina que, por sua vez, se ligaram a um peptídeo antigênico. Têm receptores de complemento e para o fragmento Fc das Ig, o que permite que, nesse centro germinativo, essas células apresentem todos esses antígenos estranhos que chegaram ao linfonodo. Não funcionam como células dendríticas normais, já que não são apresentadoras de antígeno, mas atuam como um expositor de antígenos.
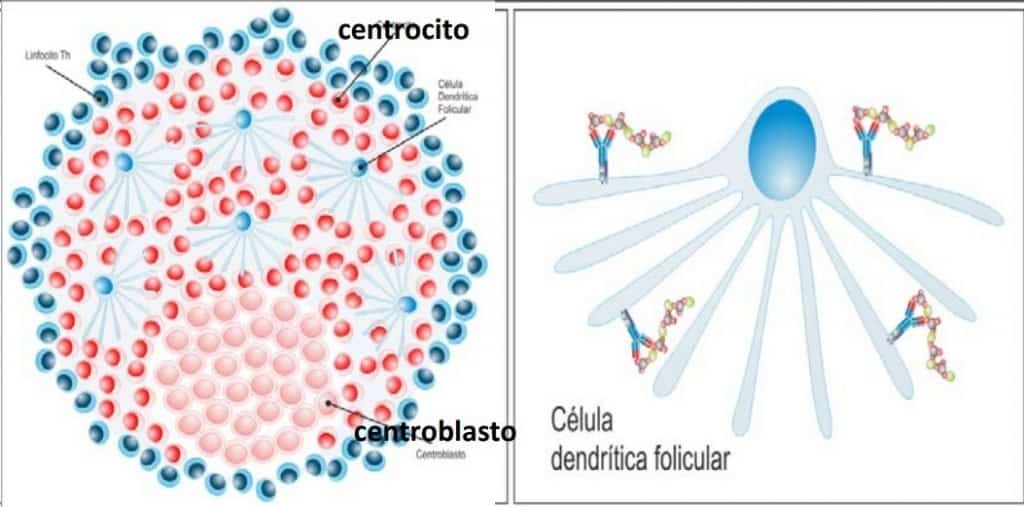
No centro germinativo ocorrem uma série de fenômenos muito importantes para entender como se forma a resposta imune humoral.
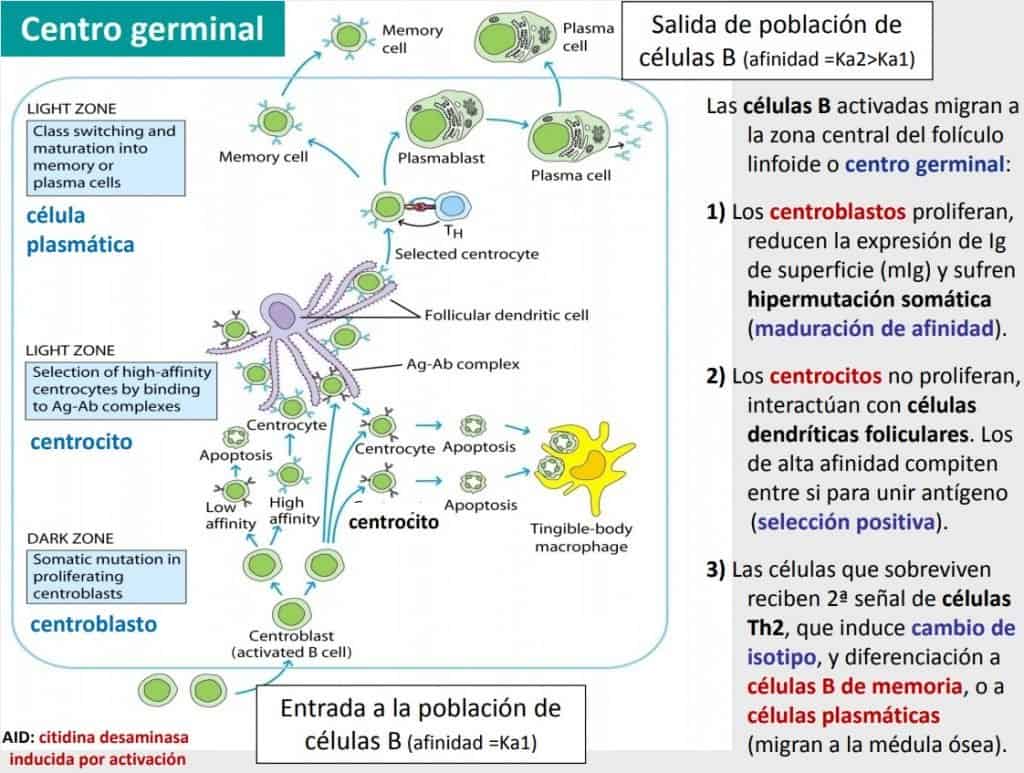
Os linfócitos B que foram ativados migram para a zona central do folículo linfoide ou centro germinativo (expressam receptores BcR na membrana e Ig). Organizam-se em torno de um centro germinativo em diferentes estados de diferenciação.
- Os linfócitos B que acabaram de interagir com um antígeno têm afinidade para se ligar a ele, mas ela não é suficiente (baixa afinidade): são os centroblastos (células em divisão situadas na “zona escura”). Os centroblastos proliferam e reduzem a expressão de Ig em sua membrana.
- Os centroblastos passam por um processo conhecido como hipermutação somática (maturação de afinidade) (somente nos linfonodos!): as enzimas citosina desaminases induzidas por ativação induzem uma série de mutações que afetam as porções hipervariáveis da molécula de imunoglobulina. Convertem uma citosina em uracila e a região variável é reestruturada. As mutações podem ser produtivas ou não, mas, se forem produtivas, melhorarão a afinidade.
- Somente os centroblastos que sofreram hipermutação somática produtiva são os que sobreviverão. Esses centroblastos se diferenciam em centrócitos, que têm uma Ig mais afim ao antígeno específico. Os centrócitos passam para a zona clara, que é uma zona onde ocorre a seleção de alta afinidade. Os centrócitos não proliferam, mas interagem com os complexos antígeno-anticorpo das células dendríticas foliculares. Esse é o processo de seleção positiva, no qual só sobrevivem os linfócitos que têm afinidade máxima.
- As células que sobrevivem à seleção positiva recebem o segundo sinal das células TFH para a troca de isotipo e a diferenciação em células B de memória ou plasmócitos (migram para a medula óssea). Esse sinal procede de citocinas liberadas pelo linfócito T, que determina o tipo de Ig que será sintetizada.
- Plasmócito produtor de imunoglobulinas: não expressa moléculas de imunoglobulina na membrana. Já está ativado, não precisa se dividir nem passar por processos de hipermutação somática. Dirigem-se à medula óssea. São células com um RER grande, produtoras de anticorpos. São ativadas em função das células de que se necessita.
- Células de memória: sim, expressam moléculas de imunoglobulina na membrana, ou seja, reconhecem Ag. Não vão se dividir. Essas células voltarão a recircular e, em muitos casos, se acantonarão. São as responsáveis pelas respostas secundárias.
No final, temos dois tipos de células com muito mais afinidade do que tinham no início.