Aqui está o conteúdo explicado no vídeo anterior. Se tiver alguma dúvida, escreva-a no sistema de comentários no final da página.
Tipos de receptores e ligantes
Existem fundamentalmente dois tipos de receptores fagocíticos (Figura 4.4):
- Receptores endocíticos, cuja função é mediar a fagocitose.
- Receptores de sinalização, indutores de respostas inflamatórias contra o patógeno.
O reconhecimento de antígenos por meio de receptores endocíticos, o primeiro grande grupo de receptores fagocíticos, leva à internalização e à fusão com os lisossomos, onde os patógenos serão destruídos (Figura 4.4). Além disso, nas células dendríticas e no sistema monócito-macrófago também é possível apresentar o antígeno por meio de proteínas HLA de classe II (Figura 4.5), por serem células apresentadoras de antígeno (APC).
Entre os receptores endocíticos, podem-se destacar:
Receptores de reconhecimento de padrões moleculares:
- MR reconhece a manose, um carboidrato muito comum em glicoproteínas e glicolipídeos bacterianos e virais.
- LPSR (CD14), junto com um TLR, reconhece os lipopolissacarídeos das bactérias gram-negativas.
- SR reconhece resíduos de bactérias gram-positivas, gram-negativas ou de células apoptóticas.
- MBL (lectina ligadora de manose) liga-se a manoses e fucoses das paredes bacterianas e inicia a via das lectinas de ativação do complemento.
- Receptores para moléculas adaptadoras (opsoninas): os receptores de reconhecimento de padrões moleculares são inúteis quando o patógeno não tem polissacarídeos em sua cápsula. Por isso, só podem ser fagocitados se estiverem opsonizados por moléculas adaptadoras (imunoglobulinas e fragmentos do complemento). Os fagócitos podem reconhecer patógenos opsonizados por meio das seguintes opsoninas:
- Imunoglobulina G, reconhecida pelos receptores FcγRI, RII e RIII dos fagócitos.
- Fragmento C3b do complemento: reconhecido pelos receptores CR1, CR3 e CR4 das células fagocíticas.
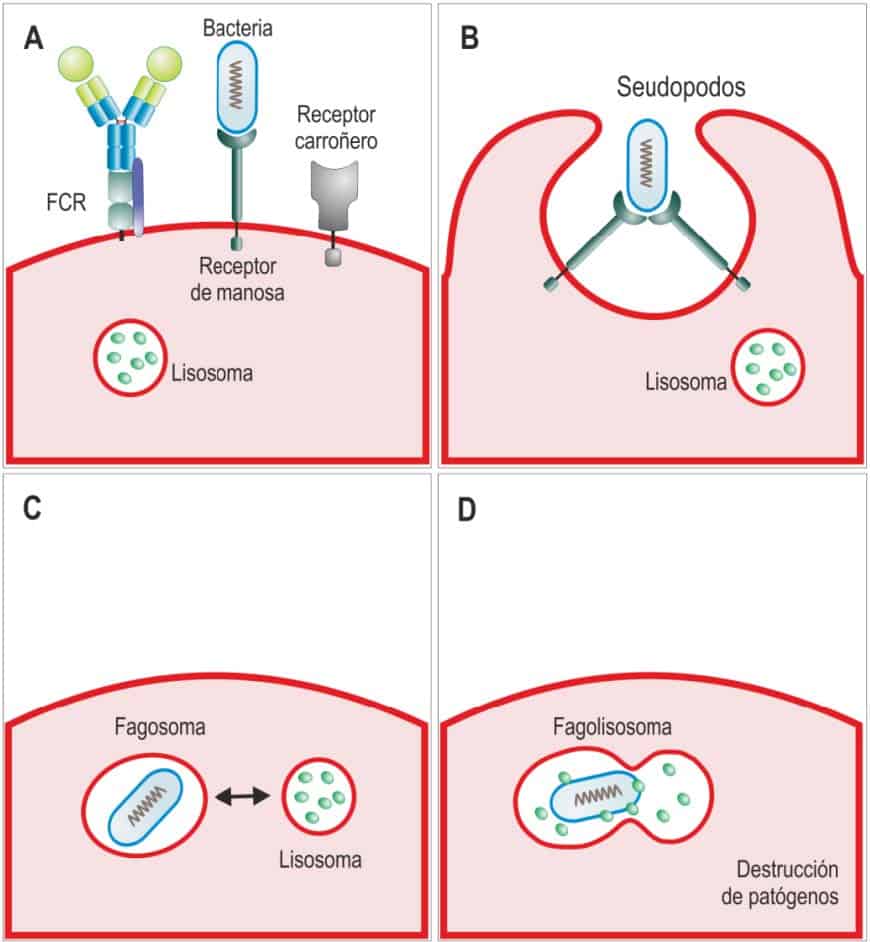
O reconhecimento dos microrganismos como estranhos pelos receptores dos fagócitos leva à sua internalização nos fagossomos que, ao se fundirem com os lisossomos, formam os fagolisossomos, em cujo interior os microrganismos são destruídos. (Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª
Ed.) Editorial Médica Panamericana, Madrid.)
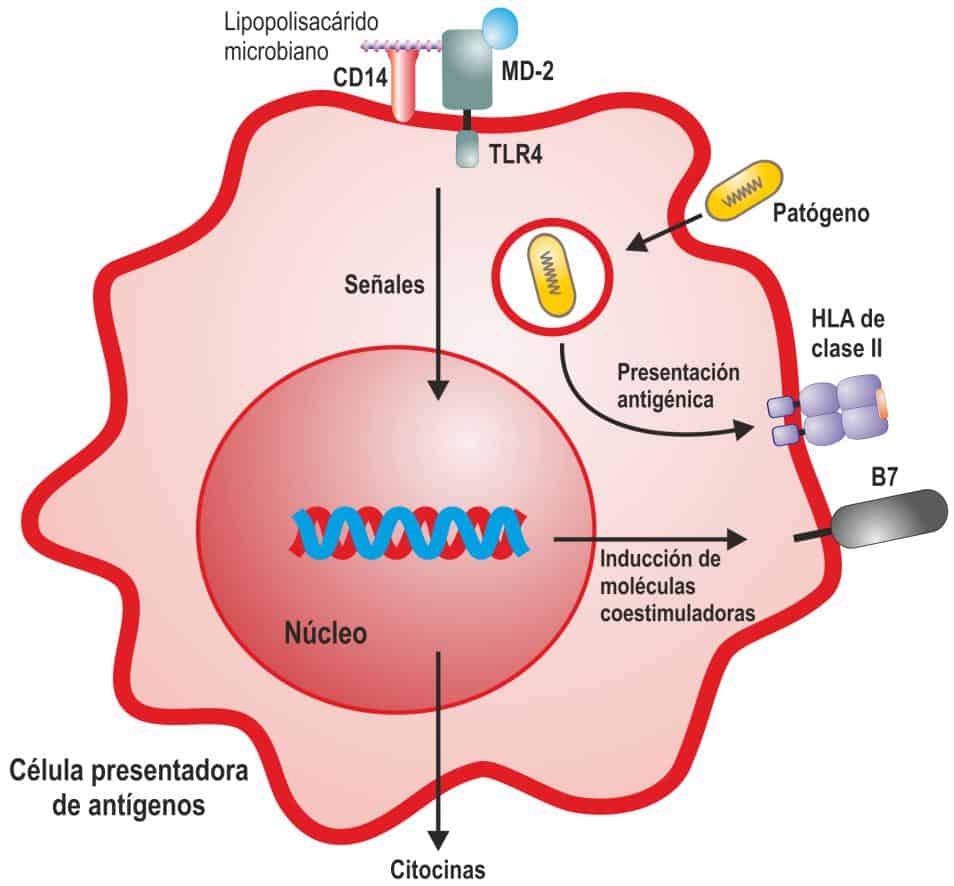
Os macrófagos participam da inflamação e da ativação dos linfócitos T. O reconhecimento dos patógenos pelos receptores de sinalização (tipo Toll ou TLR) transduz uma série de sinais para o interior do núcleo celular, o que gera a síntese e a secreção de citocinas que participam do início da resposta inflamatória e da resposta imune adaptativa. Além disso, os patógenos fagocitados são processados e apresentados na forma de peptídeos aos linfócitos T pelas moléculas do MHC ou HLA. Para se ativarem, os linfócitos T devem reconhecer o peptídeo estranho e receber um segundo sinal proveniente de uma série de moléculas coestimuladoras que se expressam na superfície dos fagócitos quando os receptores de sinalização reconhecem os microrganismos. (Reproduzido de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología.
Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Os receptores de sinalização, que constituem o segundo grande grupo de receptores fagocíticos, distribuem-se entre a superfície, os endossomos ou até livres no citoplasma celular. Reconhecem padrões moleculares associados a patógenos (PAMP), e há várias famílias desse tipo de receptores, sendo uma das mais importantes a dos receptores do tipo Toll (TLR).
Toll-Like Receptors (TLR)
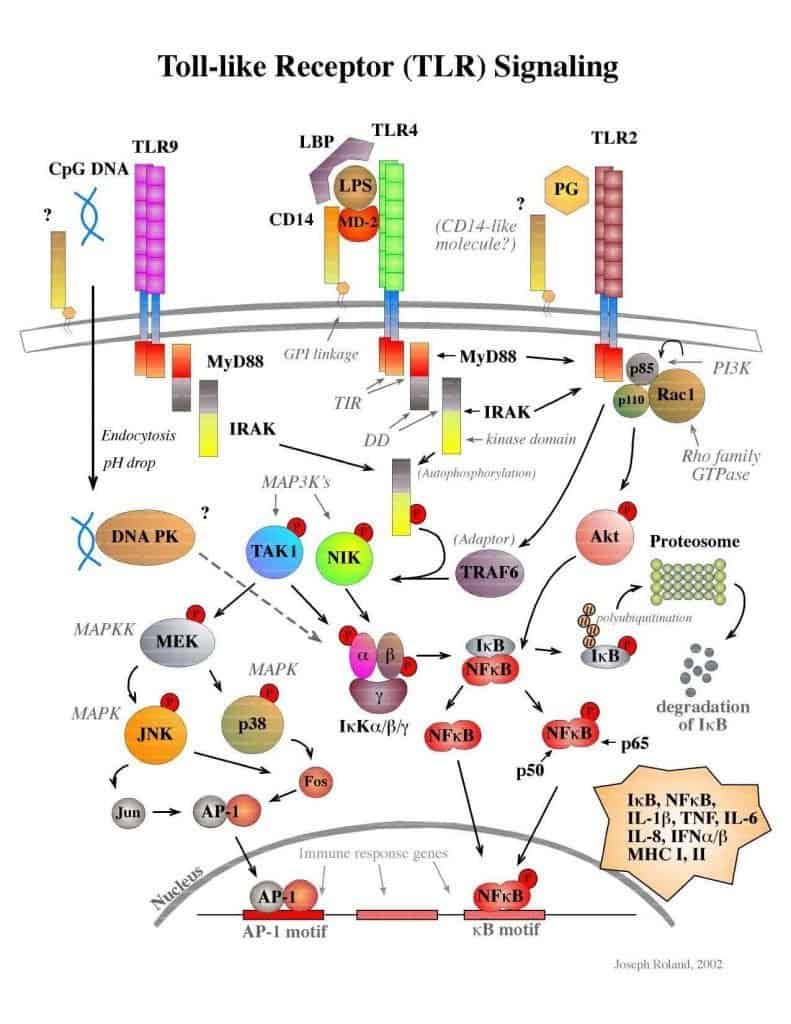
Os Toll-Like Receptors, ou receptores do tipo Toll, possuem um domínio extracelular que contém muitas repetições ricas em leucina (LRR), um domínio transmembrana e um domínio interno ou domínio TIR (Figura 4.6). O domínio TIR interage com outros membros da via de transdução de sinais dos TLRs, como o MyD88 (Figura 4.7).
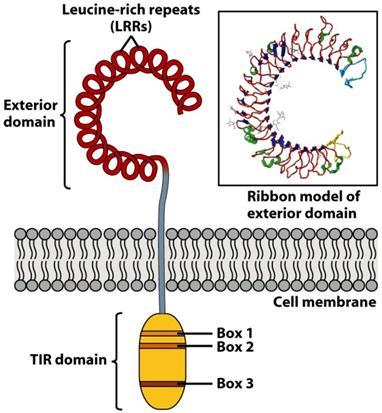
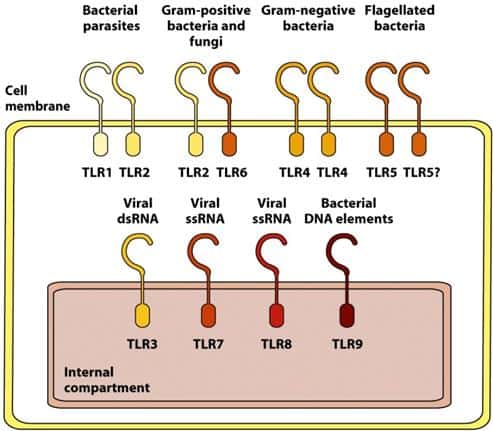
(Reproduzido de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Conhecem-se 10 TLRs em humanos, cada um deles capaz de reconhecer um conjunto diferente de padrões moleculares de patógenos (PAMPs) que normalmente não existem em vertebrados. Como há apenas 10 proteínas diferentes, sua especificidade é limitada, mas elas podem reconhecer moléculas de patógenos muito diferentes.
Alguns TLRs expressam-se na superfície celular (os que reconhecem proteínas, peptidoglicanos, lipoproteínas ou LPS), enquanto outros se expressam na membrana dos endossomos (Figura 4.7), onde detectam fragmentos de patógenos que foram previamente endocitados.
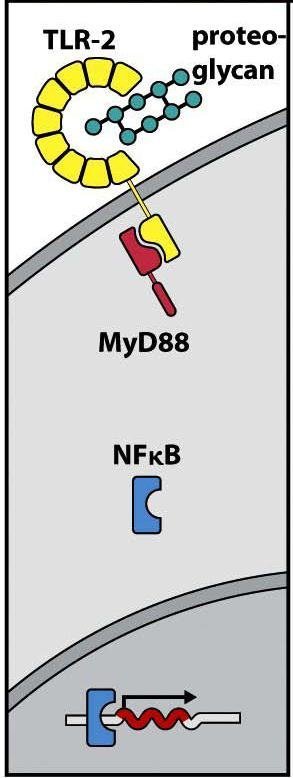
Reconhecimento de proteoglicanos por TLR 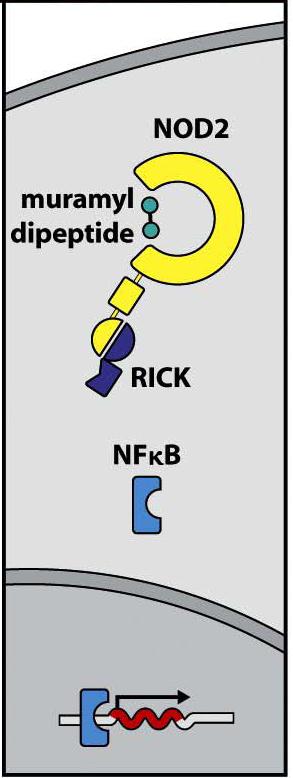
Reconhecimento de proteoglicanos por NOR
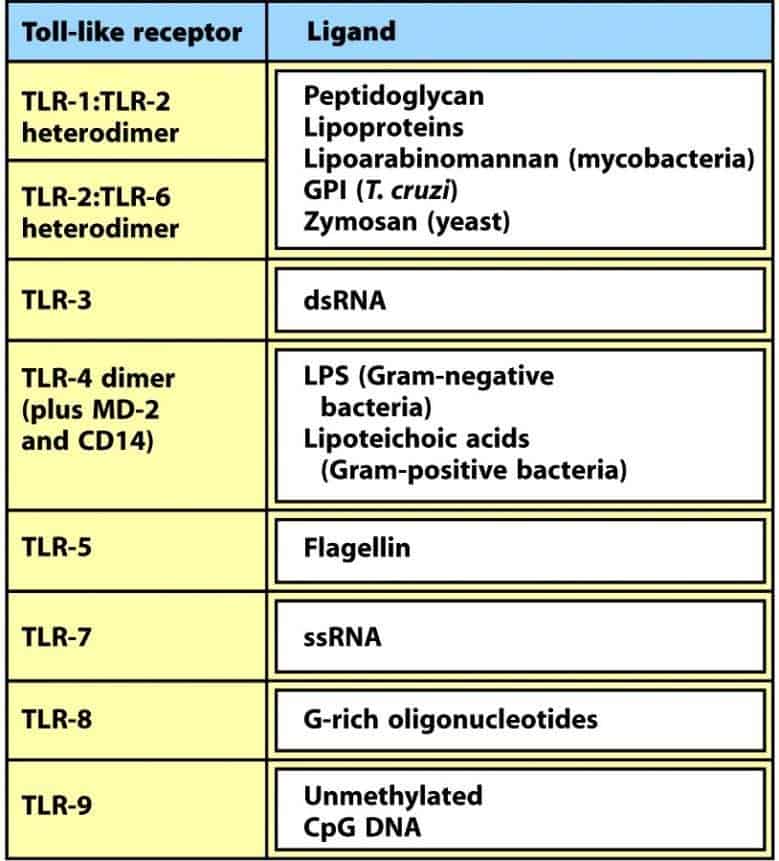
(Reproduzido de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Os TLRs endossomais reconhecem fundamentalmente diferentes formas de ácidos nucleicos dos microrganismos. Podem atuar como heterodímeros, homodímeros, monômeros ou, no caso do TLR-4, por meio da associação às proteínas CD14 e MD-2 para reconhecer o LPS ligado a uma proteína ligadora de LPS (fase aguda de uma infecção) (Figura 4.8).
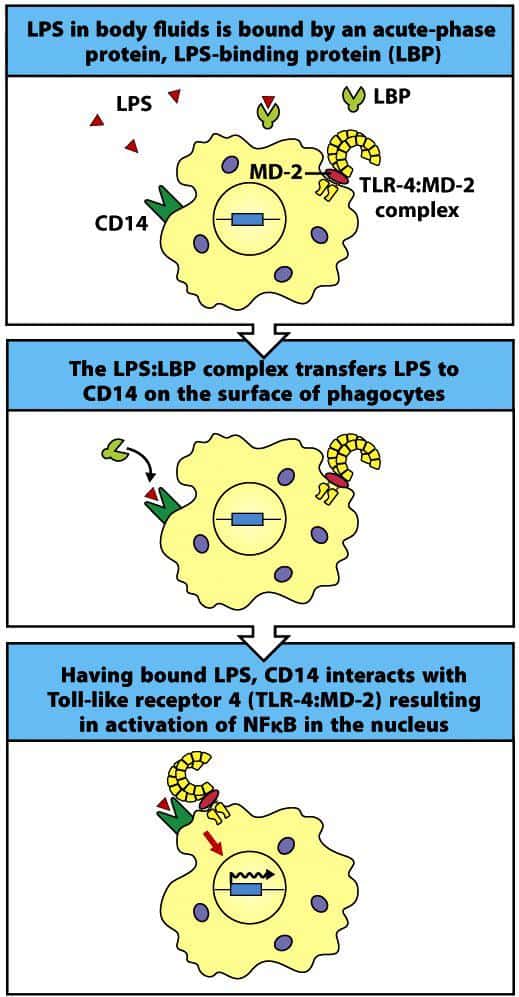
(Reproduzido de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Outra família de receptores semelhantes aos TLRs, mas de distribuição citosólica, são os receptores NOD (Nucleotide-binding Oligomerization Domain), que se ligam a produtos bacterianos livres no citoplasma (Figura 4.7). A sinalização induzida por TLRs e NOD tem alguns mediadores diferenciais e outros comuns. No entanto, em ambos os casos ativa-se o fator de transcrição nuclear NFκB, que se transloca para o núcleo e induz a síntese de citocinas e de outras proteínas do processo inflamatório (Figura 4.9).
(Cortesia de Joseph Roland.)