Voici le programme expliqué dans la vidéo précédente. Si vous avez la moindre question, posez-la dans le système de commentaires en bas de la page.
Concepts de base et nomenclature
Lorsqu’un agent pathogène traverse la barrière épithéliale et franchit la première ligne de défense antimicrobienne de l’individu, le premier élément auquel celui-ci est confronté est un élément de l’immunité innée connu sous le nom de système du complément, ou simplement complément.
Le complément est un ensemble de protéines solubles présentes dans le sang et les liquides de l’organisme. Plus de 30 protéines font partie du complément et leur production est essentiellement hépatique. En l’absence d’infection, ces protéines circulent sous forme inactive. En présence d’agents pathogènes ou d’anticorps liés à des agents pathogènes, les protéines du système du complément sont activées.
Les protéines du complément interagissent entre elles de manière précise au sein de différentes voies d’activation, dont la conséquence finale est la mort de l’agent pathogène. Cet objectif est atteint en facilitant la phagocytose et en induisant une réponse inflammatoire capable de combattre l’infection. Il existe trois voies d’activation du complément : la voie classique, qui est déclenchée par les anticorps fixés à la surface de l’agent pathogène, la voie alterne, qui est déclenchée par la simple présence de l’antigène, et la voie des lectines, qui est activée par des molécules de la surface de l’agent pathogène (Figure 11.1). Toutes convergent vers la formation de la C3 convertase.
Les protéines du système du complément sont synthétisées dans le foie sous forme de zymogènes ou de proenzymes, c’est-à-dire sous forme inactive, et nécessitent un clivage protéolytique pour être activées. En règle générale, chaque protéine du système du complément est activée par une autre protéine du système. Les cascades de protéolyse ainsi générées sont à l’origine des voies d’activation et sont responsables de la production des composants effecteurs du complément (voie finale commune) et de l’amplification de la réponse, qui permettent d’éliminer l’agent pathogène.
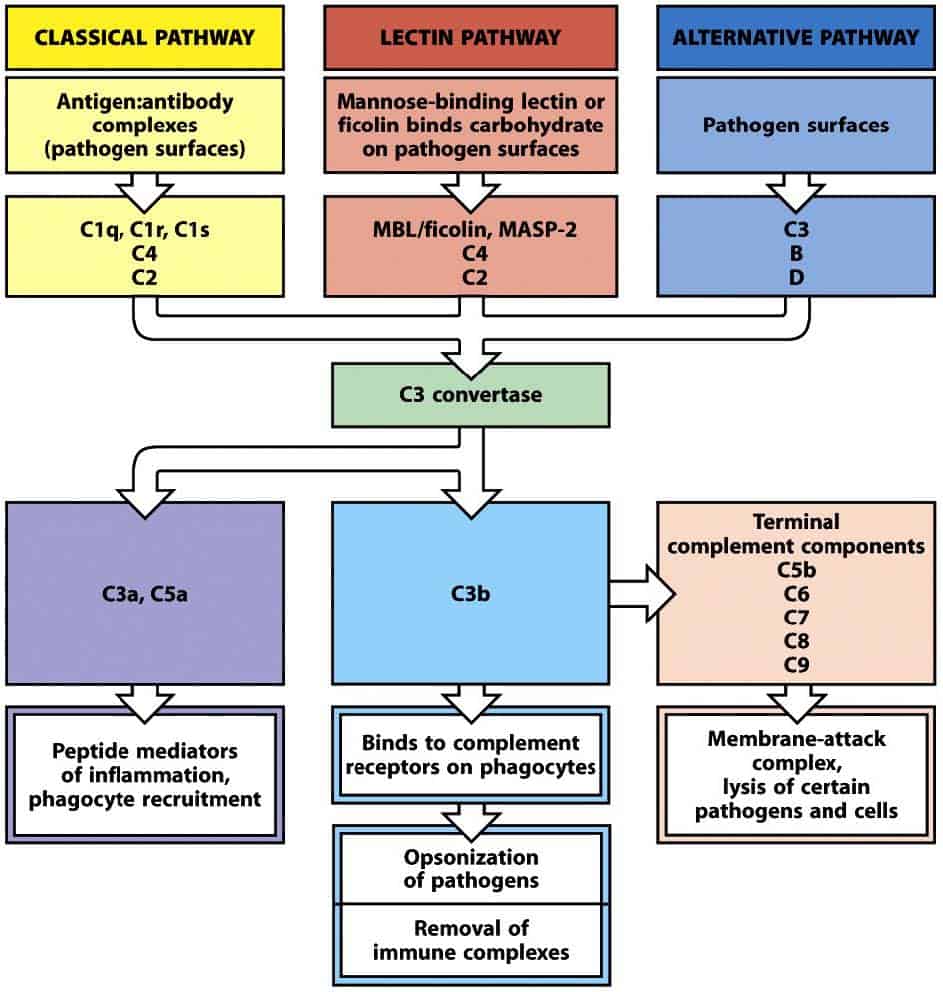
(Reproduit de Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
Nomenclature
La nomenclature des protéines du système du complément peut prêter à confusion. La première voie d’activation du complément découverte a été la voie classique, dont les protéines sont désignées par la lettre C suivie d’un numéro (C1, C2, C3, C4, C5, C6, C7, C8 et C9). Ce numéro ne décrit pas l’ordre dans lequel les éléments interagissent, mais l’ordre dans lequel les molécules ont été découvertes. Lorsqu’une protéase clive une protéine du complément pour l’activer, il en résulte deux produits. Les produits de cette réaction sont désignés par un suffixe formé d’une lettre minuscule. Le plus petit fragment de la réaction protéolytique est appelé anaphylatoxine, est désigné par la lettre a (C3a, C5a,…), reste soluble dans le milieu et a une fonction chimiotactique pour les cellules inflammatoires. Le plus grand fragment de la réaction protéolytique est appelé convertase, est désigné par la lettre b (C3b, C5b,…), se dépose à la surface de l’agent pathogène et possède une activité sérine protéase lui permettant d’agir sur la protéine du complément inactive suivante. Il existe deux exceptions à cette nomenclature générale. La première concerne la protéolyse de C2 : son plus grand fragment a d’abord été appelé C2a parce qu’il s’agissait de la fraction activée, et cette nomenclature a été conservée pendant longtemps. Toutefois, il est aujourd’hui préférable d’appeler ce fragment C2b . La seconde est la nomenclature de C1q, C1r et C1s, qui ne sont pas des produits de la protéolyse de C1, mais un groupe de protéines qui s’associent pour former C1.
Les protéines de la voie alterne ont été découvertes plus tard et ont été désignées par le terme facteur suivi d’une lettre majuscule (facteur B, facteur D…). Les produits de leur protéolyse sont désignés comme ceux de la voie classique, par les lettres minuscules a, pour le plus petit fragment (Ba,…), et b, pour le plus grand fragment (Bb,…).
La voie classique
La voie classique du complément est semblable à la voie des lectines, mais elle est déclenchée par un détecteur d’agents pathogènes appelé complexe C1 ou, simplement, C1. C1 peut interagir directement avec certains agents pathogènes, mais il peut aussi interagir avec des anticorps. La voie classique joue donc un rôle dans l’immunité innée ainsi que dans l’immunité adaptative.
Comme le complexe MBL-MASP, le complexe C1 est formé d’une grande sous-unité, appelée C1q, qui joue le rôle de détecteur d’agents pathogènes, et de deux sérine protéases, appelées C1r et C1s (Figure 11.4). C1q est un hexamère de trimères, formés de monomères qui contiennent un domaine globulaire amino-terminal et un domaine de type collagène carboxy-terminal. Les trimères s’assemblent par des interactions entre les domaines de type collagène, de sorte que les domaines globulaires s’unissent pour former une tête globulaire. La molécule complète de C1q possède six têtes globulaires reliées par les queues de type collagène, qui permettent de reconnaître les agents pathogènes ou les anticorps fixés à leur surface, en particulier les IgG et les IgM. C1r et C1s sont étroitement apparentées à MASP-2, tandis que MASP-1 leur est apparentée de façon moins marquée. C1r et C1s interagissent de façon non covalente pour former des paires C1r:C1s. Les paires se lient aux bras de C1q, une partie de ces complexes se trouvant à l’extérieur de C1q.
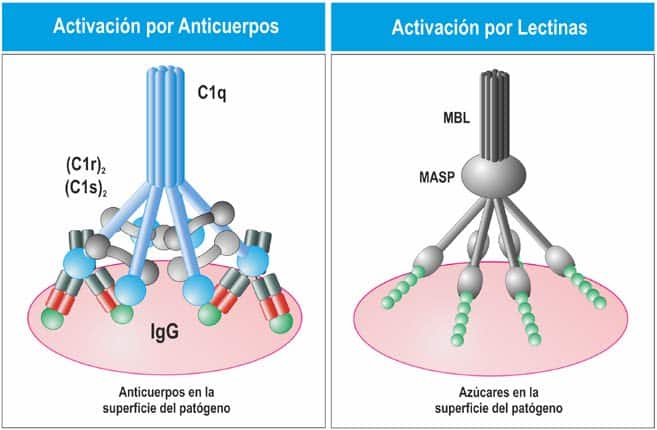
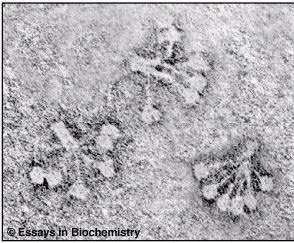
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid. Reproduit
de Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
La liaison de deux têtes de C1q ou plus à leur ligand provoque un changement de conformation du complexe C1r:C1s, ce qui active l’activité autocatalytique de C1r. C1r hydrolyse alors la protéine C1s qui lui est associée pour générer une sérine protéase active. C1s agit sur les deux composants suivants de la voie classique, C4 et C2. C1s hydrolyse C4 pour produire C4b, qui se fixe de façon covalente à la surface de l’agent pathogène, de la même manière que dans la voie des lectines. Une molécule de C2 se lie à C4b et est hydrolysée par C1s, ce qui libère la sérine protéase C2b. Ce processus aboutit à la formation de C4b2b, qui est la C3 convertase de la voie classique et de la voie des lectines (Figure 11.5 et Figure 11.6).
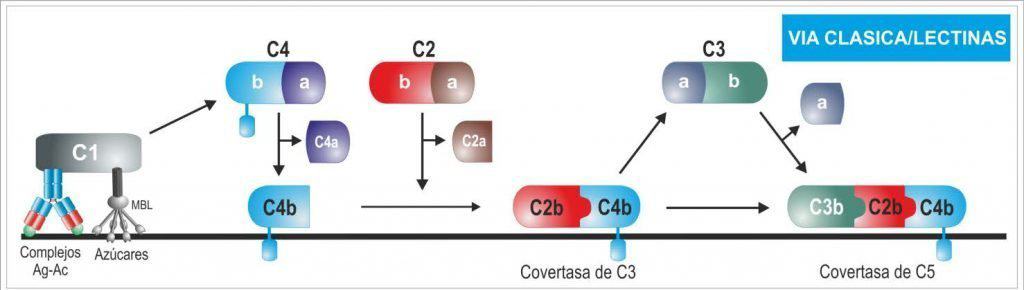
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
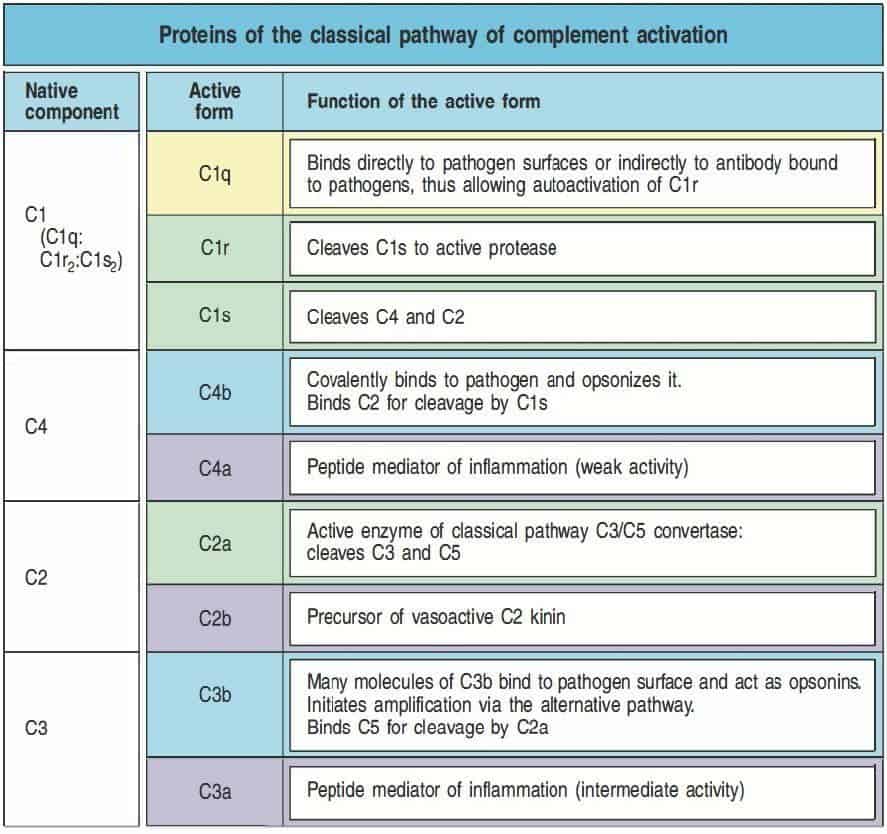
(Reproduit de Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)