Effets des cytokines
Elles régulent l’activité cellulaire de manière coordonnée et interactive :
• PLÉIOTROPIE : une cytokine a plusieurs effets différents sur différentes cellules cibles (ex. : l’IL-2 a plusieurs effets sur différentes cellules cibles, selon le tissu où elle se trouve et les cellules réceptrices)
• REDONDANCE : deux cytokines ou plus ont des effets similaires, qui peuvent toutefois varier d’un tissu à l’autre. D’autres ont les mêmes effets mais par des voies différentes. Il est difficile d’attribuer un effet à une seule cytokine (ex. : chimiokines qui agissent « en nuée »)
• EFFET ADDITIF : l’effet de deux cytokines ensemble est égal à la somme des effets de chacune. (effet multiplicateur : c’est-à-dire qu’il ne s’agit pas seulement de la somme des effets des deux)
• SYNERGIE : l’effet conjoint dépasse l’effet additif des deux cytokines prises séparément ; autrement dit, une cytokine associée à une autre aura un effet déterminé et différent de celui de la cytokine d’origine associée à une autre cytokine.
• ANTAGONISME : une cytokine aura un effet inhibiteur sur l’autre.
Les deux seules cytokines inhibitrices : IL-10 ET TGF-β (facteur de croissance transformant β)
- L’IL-10 agit en bloquant les cellules présentatrices d’antigène et bloque donc les lymphocytes T
- LE TGF-β : agit en bloquant directement le lymphocyte T, ce qui l’empêche de s’activer ou de proliférer)
Ce sont les seules qui agissent en produisant un effet inhibiteur net. Il existe cependant d’autres cytokines qui agissent normalement comme des cytokines positives et qui, pourtant, bloquent une seconde cytokine, en agissant comme antagonistes.
• INDUCTION EN CASCADE : certaines cytokines importantes induisent un effet en pyramide, une cascade de sécrétion de différentes cytokines. (une cytokine agit sur une cellule qui induit à son tour une autre cytokine, et ainsi de suite, très typique des réponses inflammatoires)
De cette façon, l’action d’une cytokine sur sa cellule cible amène cette dernière à sécréter une ou plusieurs cytokines qui, en agissant à leur tour sur d’autres cellules cibles, induisent la sécrétion de nouvelles cytokines.
- Deux exemples de cette propriété d’« induction en cascade » concernent le facteur de nécrose tumorale alpha (TNFα) et l’interleukine 1 (IL-1), qui, lorsqu’ils sont produits de façon systémique, provoquent la perte de l’homéostasie et conduisent au choc septique.
L’intérêt médical, dans ce cas, concerne la manipulation du système immunitaire, la manipulation de toutes ces cytokines afin que le système immunitaire bloque sa fonction dans certaines situations, comme dans les pathologies auto-immunes, qui surviennent lorsque la réponse immunitaire s’active dans des tissus inappropriés. Ces cytokines sont très utiles dans ce type de situations.

Image tirée des diapositives fournies par le professeur Arranz, faculté de médecine de Valladolid, thème 13, Immunologie, année 2014-2015
Régulation des effets des cytokines
Trois facteurs principaux régulent l’action des cytokines au cours de la réponse immunitaire et sont responsables du fait que leurs effets n’ont pas de répercussions non spécifiques :
1.- L’expression des récepteurs sur les cellules cibles n’a lieu qu’après l’activation par l’antigène. Une cellule qui n’exprime pas de récepteurs ne peut pas reconnaître les cytokines. Parfois, plus les cellules sont immatures, moins elles sont capables d’interagir avec les autres cellules, car elles expriment moins de récepteurs à leur surface ; cette expression détermine donc la spécificité de la cytokine.
2.- Dans certains cas, une interaction directe est nécessaire entre la cellule productrice de la cytokine et sa cellule cible. On s’assure ainsi que le gradient de concentration efficace n’existe que dans le microenvironnement local.
L’effet paracrine est le plus courant : par exemple, dans le cas d’une cellule dendritique ou d’un macrophage qui présente un Ag au lymphocyte T et libère de l’IL-12, laquelle aidera ce lymphocyte T à se développer et à mûrir vers une voie fonctionnelle déterminée. Cet effet paracrine repose donc sur ce concept ; il dépend du microenvironnement et des concentrations de cette cytokine dans ce milieu, ou du degré d’affinité du récepteur pour la cytokine
3.- La demi-vie de ces molécules dans les liquides corporels est habituellement très courte ; elles agissent puis, pour éviter des effets indésirables, cette protéine est détruite. Si, au cours d’une réponse immunitaire, tous les pathogènes ne sont pas détruits, la réponse immunitaire reste active et la cytokine également ; la demi-vie est donc un facteur de contrôle de la réponse immunitaire, de son intensité et de sa durée. Les cytokines durent aussi longtemps que la réponse immunitaire est active. CLASSIFICATION DES CYTOKINES (PROFILS) CLASSIFICATION DES CYTOKINES (PROFILS)
Classification des cytokines (profils)
1. Cytokines de la réponse immunitaire innée
Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7ª Ed.) Garland Science, New York.
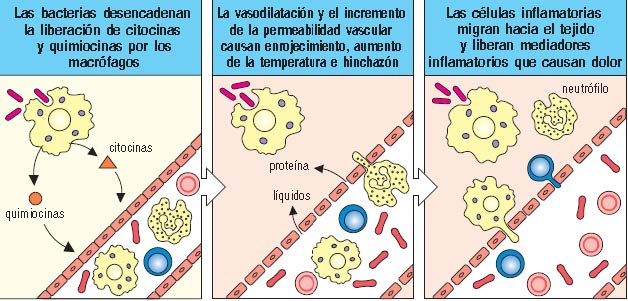
-CYTOKINES INFLAMMATOIRES OU MACROPHAGIQUES : TNFα (facteur de nécrose tumorale alpha), IL-1, IL-6, IL-12 : Les macrophages produisent des cytokines dans le cadre de leur fonction d’alerte des autres cellules de défense quant à la présence de pathogènes. Les cytokines et les chimiokines libérées par les macrophages activés déclenchent le processus appelé inflammation. Lorsque les macrophages rencontrent dans les tissus des bactéries ou d’autres types de micro-organismes, ils libèrent des cytokines qui augmentent la perméabilité des vaisseaux sanguins, ce qui permet le passage de liquide et de protéines vers les tissus. Ils produisent aussi des chimiokines, qui dirigent la migration des polynucléaires neutrophiles vers le site d’infection. L’épaisseur des cellules endothéliales de la paroi du vaisseau sanguin change également, de sorte que les cellules adhèrent à la paroi et peuvent s’y déplacer lentement. L’accumulation de liquide et de cellules au site d’infection provoque la rougeur, la tuméfaction, la chaleur et la douleur qui sont désignées ensemble sous le nom d’inflammation.

Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7ª Ed.) Garland Science, New York
Ces trois cytokines (les 3 premières) comptent parmi les plus pro-inflammatoires dans tous les processus. Les 3 sont produites par les pathogènes dans le but d’attirer davantage de cellules vers le foyer inflammatoire.
IL-12 : (rappelons que l’IL-10 a un effet inhibiteur sur les lymphocytes T en bloquant les cellules présentatrices d’Ag, ce qui bloque à son tour la synthèse d’IL-12. Elle active les lymphocytes T pour qu’ils continuent à produire certaines cytokines importantes dans les réponses contre les parasites intracellulaires.
-INTERFÉRONS ANTIVIRAUX (TYPE I) : IFNα, IFNβ : toutes les cellules de l’organisme, lorsqu’elles sont infectées par un virus, libèrent des interférons de type I, qui interfèrent avec la capacité des virus à produire leurs propres protéines en utilisant la machinerie de la cellule une fois celle-ci infectée. (le virus Ebola survit parce qu’il bloque la synthèse des interférons)

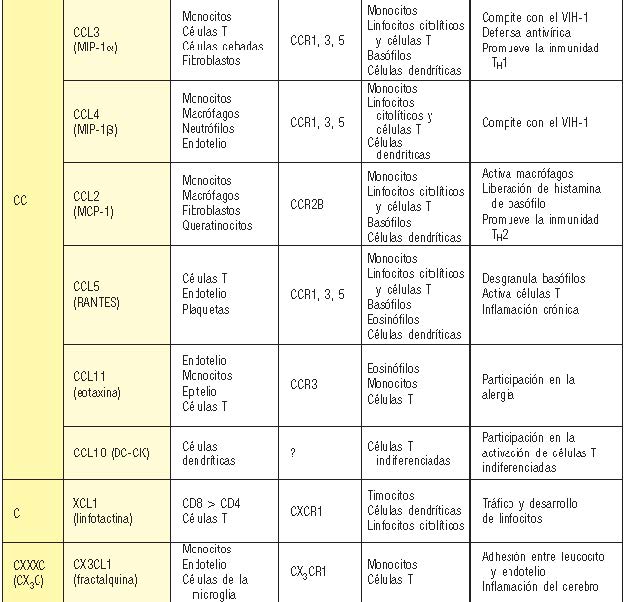
2. CHIMIOKINES (cytokines chimiotactiques) : Les chimiokines fonctionnent principalement comme des chimioattractants pour les leucocytes ; elles recrutent les monocytes, les polynucléaires neutrophiles et d’autres cellules effectrices depuis le sang vers les sites d’infection. Elles peuvent être libérées par de nombreux types cellulaires différents et servent à guider les cellules de l’immunité innée vers les sites d’infection. Elles guident aussi les lymphocytes dans l’immunité adaptative. Elles interviennent beaucoup dans les processus inflammatoires où le confinement ou la destruction sont nécessaires pour venir à bout des envahisseurs.
Les chimiokines sont une famille de protéines de structures similaires qui se lient à des récepteurs de chimiokines et font partie d’une vaste famille de récepteurs couplés aux protéines G.
Les chimiokines peuvent être produites par une grande variété de types cellulaires en réponse à des produits bactériens, à des virus et à des agents causant des lésions physiques ; elles mettent en place la production de gradients de chimiokines qui peuvent diriger les phagocytes vers les sites où ils sont nécessaires.
CCL3 : PROTÉINE INHIBITRICE DES MACROPHAGES (ligand de la protéine CC et lorsque R : récepteur)
Les chimiokines se classent principalement en deux groupes apparentés mais distincts. Les chimiokines CXC, dont les gènes se trouvent principalement dans un regroupement sur le chromosome 17 chez l’être humain, ont un résidu d’acide aminé (X) entre deux cystéines invariables (C) dans la région amino-terminale. Les chimiokines CC, qui chez l’être humain sont codées pour la plupart dans une région du chromosome 4, ont ces deux cystéines invariables adjacentes.
Toutes les chimiokines qui attirent les polynucléaires neutrophiles possèdent ce motif, alors que presque toutes les autres chimiokines CXC, y compris celles qui interagissent avec les récepteurs CXCR3, 4 et 5, en sont dépourvues. récepteurs et affecte un ou plusieurs types de cellules.
Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7ª Ed.) Garland Science, New York.

Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7ª Ed.) Garland Science, New York.
3. CYTOKINES DE LA RÉPONSE IMMUNITAIRE SPÉCIFIQUE Th0, Th1 (IL-2, IFN-γ, IL-12), Th2 (IL-4, IL-5, IL-10, IL-13). Les cellules CD4 activent la libération de cytokines (ce sont les chefs d’orchestre) et, selon le type de micro-organisme envahisseur, le lymphocyte T s’active et se différencie pour synthétiser un profil de cytokines précis :
- Si, par exemple, une bactérie extracellulaire pénètre dans le sang, les Ac pourraient agir contre elle.
En revanche, face à un parasite intracellulaire qui pénètre à l’intérieur d’un macrophage, la détection et l’activation par les cellules CD4+ sont nécessaires ; celles-ci activent à leur tour d’autres cellules capables de former des phagocytes (ex. : macrophage).
Cela explique l’existence de sous-types différents (Th1, Th2, etc.) ; ces cellules, aussi appelées cytotoxiques, agissent en reconnaissant les protéines virales d’une cellule envahie par un virus et provoquent sa destruction.
Th0 : cellule immunocompétente mais naïve, non activée. Lorsqu’elle arrive dans un nœud lymphatique et reconnaît, par exemple, l’Ag d’une bactérie intracellulaire (à l’intérieur d’un macrophage), elle libère de l’IL-12, ce qui va faire que les lymphocytes T se différencient en un type de cellules plus efficaces contre les infections intracellulaires.
S’il y a activation des lymphocytes B : IL-4 et production de Th2. Ces cellules Th2 sont aussi importantes chez les individus allergiques (IgE)
-IL-12 : fait que les lymphocytes T se différencient en un sous-type précis afin d’éradiquer ce type de micro-organisme
-Th17 : importance surtout dans les inflammations aiguës.

Image tirée des diapositives fournies par le professeur Arranz, faculté de médecine de Valladolid, thème 13, Immunologie, année 2014-2015.
4. FACTEURS DE CROISSANCE HÉMATOPOÏÉTIQUES SCF, IL-3, IL-7, GM-CSF (facteur de stimulation des colonies de granulocytes et de macrophages), IL-11 (thrombopoïétine), Epo (en cas d’augmentation du nombre d’érythrocytes, la capacité d’oxygéner le muscle est beaucoup plus grande… cyclistes)
SCF : se lient aux cellules de la moelle osseuse qui n’ont pas encore de destin défini, de sorte qu’ils favorisent seulement le maintien de ces cellules.
Ce sont des cytokines qui stimulent la synthèse des cellules hématopoïétiques.
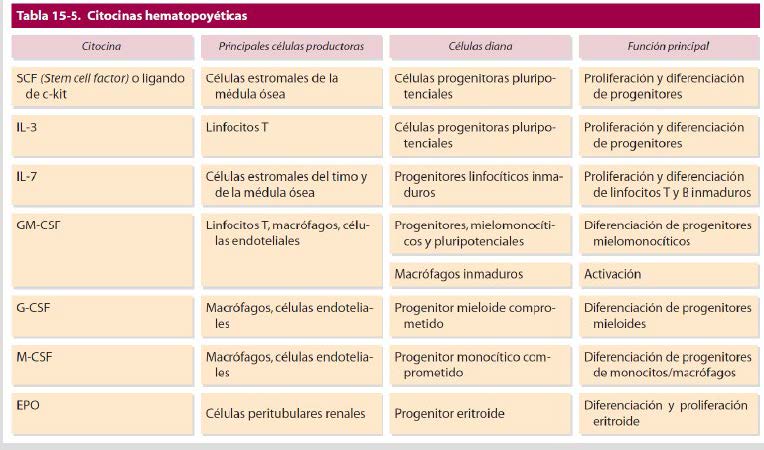
Image tirée des diapositives fournies par le professeur Arranz, faculté de médecine de Valladolid, thème 13, Immunologie, année 2014-2015.
Le réseau des cytokines
Supposons que nous nous trouvions dans un organe lymphoïde secondaire : selon le micro-organisme détecté et les cytokines générées, ces cellules vont se différencier (Th1, Th2, Th17, etc.) ; ce que vont faire les cytokines, c’est promouvoir l’activité de toutes les cellules du système immunitaire et d’autres cellules extérieures à celui-ci (lymphoblastes) afin qu’elles interviennent dans la réponse inflammatoire.
MODÈLE GÉNÉRAL : La cytokine est reconnue par le récepteur (en général, les récepteurs membranaires sont des dimères) et, en se liant, elle provoque une dimérisation qui conduit à l’activation d’une cascade de kinases, laquelle active et provoque aussi la dimérisation d’une famille de protéines STAT qui agissent dans le noyau sur l’ADN en activant une série spécifique de gènes
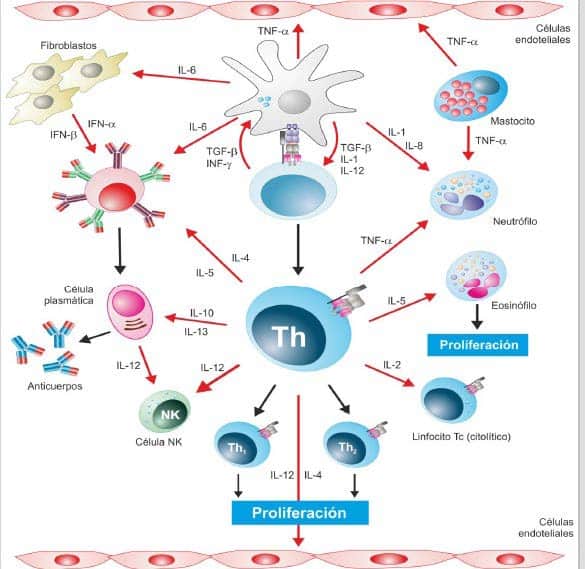
Image tirée des diapositives fournies par le professeur Arranz, faculté de médecine de Valladolid, thème 13, Immunologie, année 2014-2015.
Chaque membre d’une famille est une variante de spécificité différente, qui remplit une fonction particulière dans la cellule qui l’exprime :
- La superfamille des récepteurs de l’hématopoïétine comprend des récepteurs homodimériques et hétérodimériques, subdivisés en familles selon leur séquence protéique et leur structure en sous-unités.
- Le récepteur de la cytokine macrophagique IL-6 (chap. 2) est lui aussi membre de la superfamille de l’hématopoïétine, mais il transmet le signal par une chaîne accessoire distincte de βc ou γc.
- Les récepteurs des interférons et des cytokines de type interféron sont des récepteurs hétérodimériques qui constituent une autre famille, plus restreinte, de récepteurs de cytokines.
- Le récepteur du facteur de nécrose tumorale (TNFR) et la famille des récepteurs de chimiokines, cette dernière appartenant à la très vaste superfamille des récepteurs couplés aux protéines G.
De nombreux membres de la sous-famille des récepteurs de l’IL-2 (récepteurs de cytokines de classe I) partagent une chaîne γ de transduction du signal (chaîne gamma commune). Les récepteurs de l’IL-2 et de l’IL-15 sont des hétérotrimères dont les chaînes de transduction sont β et γ.