Voici le programme expliqué dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Traitement des gènes des immunoglobulines
Les segments géniques qui codent les régions variables des immunoglobulines sont très éloignés les uns des autres dans le génome de toutes les cellules de l’organisme, sauf dans celles de la lignée B.
Compte tenu de la disposition décrite des gènes en segments sur différents chromosomes, la production d’immunoglobulines est impossible si rien d’autre ne se produit. Le rapprochement de ces gènes a lieu dans la moelle osseuse au cours du processus de maturation des lymphocytes B, par un processus de recombinaison entre les différents segments géniques appelé recombinaison somatique. Ce processus ne participe pas seulement à la génération de la diversité : il est indispensable à l’expression des immunoglobulines, et c’est pourquoi seuls les lymphocytes B peuvent en produire.
Traitement des chaînes lourdes
Dans les chaînes lourdes, 2 recombinaisons somatiques ont lieu. Lors d’une première étape de recombinaison, un gène D se combine, là aussi au hasard, avec un gène J, qui deviennent contigus sur le chromosome 14. Ensuite, un gène V se combine également au hasard avec le fragment D-J déjà formé (Figures 8.2 et 8.4).
Dans ces deux recombinaisons, de grandes séquences d’ADN sont perdues et, en conséquence, les 3 fragments V, D et J, initialement séparés, deviennent contigus. Ces 3 fragments (V-D-J) forment un exon pour le domaine variable de la chaîne lourde. Les autres domaines constants seront codés par un gène C (il y a 9 gènes C, un pour chaque classe et sous-classe d’immunoglobuline).
Traitement des chaînes légères
Pour la chaîne légère, le mécanisme de recombinaison somatique a lieu une seule fois (entre un fragment V et un fragment J) (Figures 8.3 et 8.4). Pour la chaîne κ, un gène V et un gène J (séparés dans le génome) se combinent au hasard et produisent un exon qui, une fois traduit en protéine, codera le domaine variable de la chaîne légère. Pour le domaine constant, il n’y a pas de problème puisqu’il n’existe qu’un seul gène C. Pour la chaîne λ, il se passe la même chose, mais c’est le gène C qui suit le J choisi au hasard qui est exprimé. De cette façon, un grand segment d’ADN circulaire est éliminé.
Ce phénomène de réarrangement des gènes se produit pendant la maturation du lymphocyte B dans la moelle osseuse. Cette recombinaison permet la synthèse d’un ARN messager comportant les segments V, J et C nécessaires, qui seront alignés par excision des introns (de grands segments d’ARN sont éliminés lors de la maturation).
Mécanisme de la recombinaison somatique
Pour que le mécanisme de recombinaison somatique soit possible, deux éléments sont indispensables : les recombinases et les séquences signal de recombinaison (RSS).
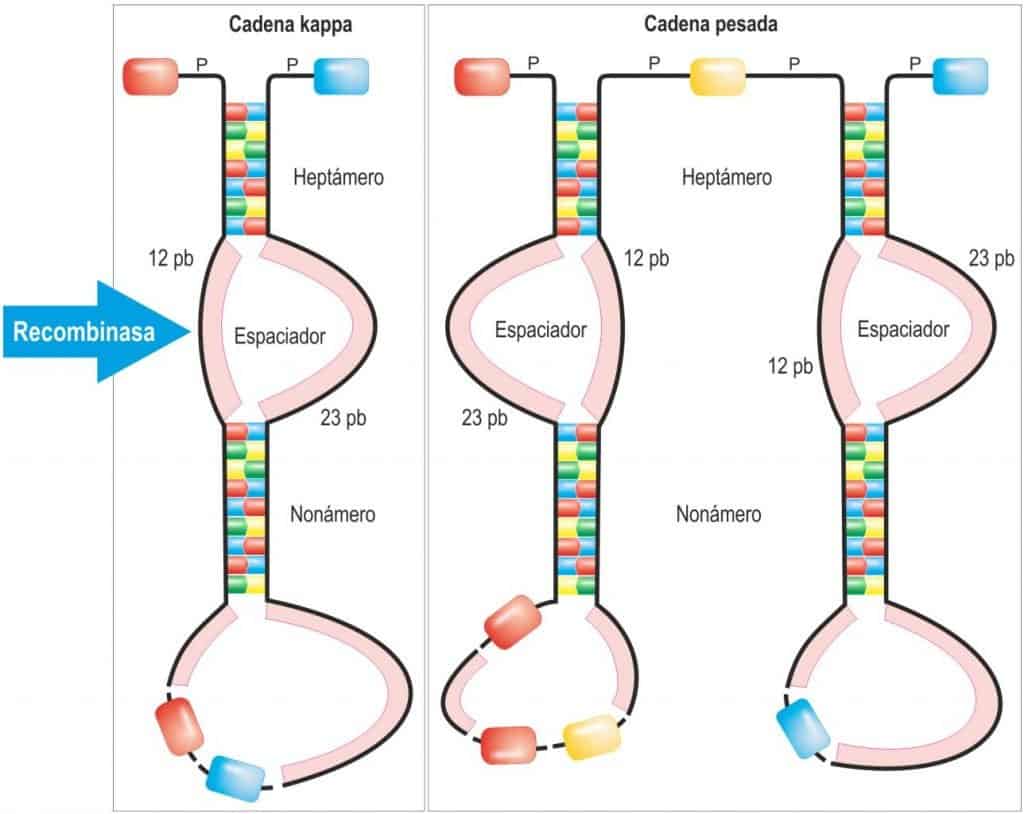
Les recombinases (Figure 8.4) sont des enzymes spécifiques qui forment des hétérodimères et sont connues sous les noms de RAG-1 et RAG-2. Par exemple, dans le cas de λ, elles se lient à un gène V (V3) et à un gène J (J2).
Les séquences signal de recombinaison (RSS) (Figure 8.4) sont des séquences de nucléotides très conservées qui flanquent les segments géniques. Ces signaux sont formés d’une séquence de 7 paires de bases (heptamère) et d’une autre de 9 (nonamère), séparées par un ADN espaceur non conservé de 12 ou 23 pb.
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Il existe des RSS en aval de chaque fragment V et en amont de chaque segment J. Les fragments D possèdent des RSS en amont et en aval, car ils participeront à 2 recombinaisons somatiques (la première en arrière, lors de la combinaison avec un segment J, et la seconde en avant, lors de la combinaison avec un segment V).
Les séquences des heptamères et des nonamères des RSS sont complémentaires les unes des autres, de sorte que les séquences en aval du segment V seront complémentaires de celles en amont du segment D, et celles en aval du segment D seront complémentaires de celles en amont du segment J (ce qui permet la formation de palindromes).
La longueur des régions espaceurs semble jouer un rôle important pour que la recombinaison somatique se déroule de façon ordonnée (VDJ), car elle n’a lieu qu’entre une paire heptamère-nonamère séparée de 12 paires de bases (pb) et une autre paire heptamère-nonamère séparée de 23 pb. Ces séquences espaceurs de 12 pb et de 23 pb sont situées de façon alternée dans les différents segments géniques.
C’est pourquoi, dans les chaînes lourdes, une recombinaison VJ ne peut pas avoir lieu, puisque ces deux régions sont flanquées d’espaceurs de 23 pb. En revanche, elles peuvent se recombiner avec les segments D, car ceux-ci sont flanqués d’espaceurs de 12 pb.
Les signaux de recombinaison sont reconnus par des enzymes spécialisées (recombinases), RAG-1 et RAG-2, qui, en se rapprochant l’une de l’autre, assurent le rapprochement au hasard des fragments en formant une boucle dans l’ADN, stabilisée par les palindromes entre les heptamères et les nonamères signal. Ensuite, les recombinases résolvent la boucle en coupant, en ligaturant les 2 fragments et en excisant les extrémités libres (sous forme d’ADN circulaire). Tout ce qui se trouvait dans la boucle est perdu de façon irrécupérable. Lors de cette coupure et de cet assemblage des fragments, qui comportent des imprécisions, des nucléotides au hasard sont entraînés et parfois des nucléotides sont insérés. Cela constitue un mécanisme d’augmentation de la variété des Ig, comme nous le verrons plus loin, mais peut aussi modifier le cadre de lecture et donner lieu à des codons STOP prématurés ou à des protéines non fonctionnelles (abortives).
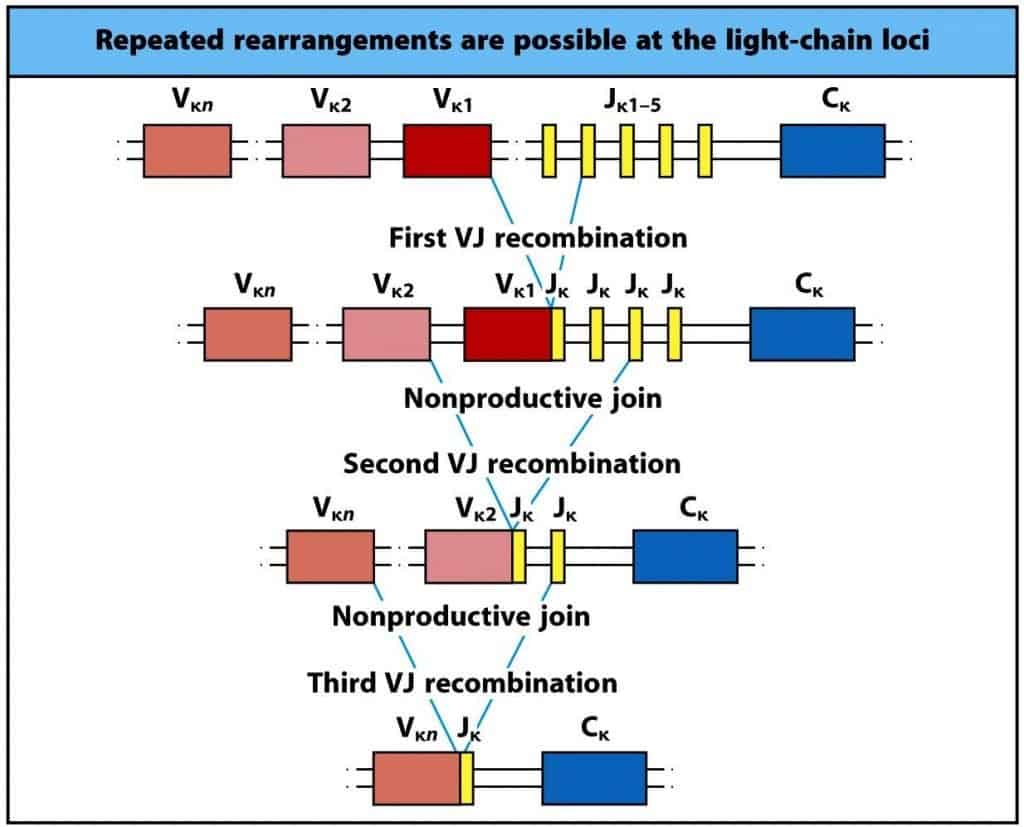
Comme le système de réarrangement comporte de nombreuses imprécisions, des erreurs peuvent survenir lors du réarrangement des fragments, aussi bien dans les lymphocytes B que dans les lymphocytes T, produisant au hasard des protéines abortives (codon STOP ou décalage du cadre de lecture), sans aucune utilité (réarrangements non productifs) (Figure 8.5). C’est pourquoi, aussi bien lors du traitement des chaînes lourdes que des chaînes légères, des réarrangements initiaux non productifs peuvent être rattrapés (à condition qu’il reste des fragments V, D et J disponibles) et les chromosomes correspondants peuvent être réarrangés de nouveau au hasard jusqu’à l’obtention de réarrangements productifs ; la limite est donc le nombre de fragments restants. Une fois qu’un réarrangement productif est obtenu, un signal interrompt le processus.
(Reproduit de Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)