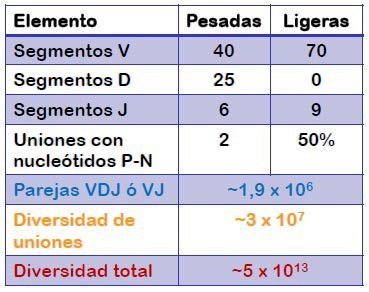
Voici le programme expliqué dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Mécanismes d’amplification du répertoire
La diversité des immunoglobulines découle, d’une part, de la variabilité des chaînes légères et lourdes et, d’autre part, des différentes possibilités d’association de ces chaînes entre elles. On obtiendrait ainsi une diversité potentielle d’immunoglobulines de 4,5 millions. On sait pourtant que notre répertoire lymphocytaire atteint l’ordre de 1011 (Figure 8.10) ; c’est pourquoi il existe deux mécanismes supplémentaires : la diversité de jonction et les hypermutations somatiques.
Diversité de jonction
Ces mécanismes interviennent au moment du réarrangement génétique pendant la maturation du lymphocyte B dans la moelle osseuse. Ils s’expliquent par le fait que la recombinaison somatique VDJ (dans les chaînes lourdes) ou VJ (dans les chaînes légères) n’est pas un mécanisme de haute précision. La coupure et l’assemblage entre les différents fragments ne sont donc pas toujours identiques, même lorsque ce sont les mêmes fragments qui participent. Cela constitue un mécanisme de diversité pour plusieurs raisons :
- La flexibilité propre des jonctions (Figure 8.6) : le point de coupure de l’ADN dans les 2 fragments peut varier, ce qui produit des codons alternatifs. Autrement dit, la recombinase elle-même ne coupe pas nécessairement les fragments toujours au même endroit. Selon le point de coupure et les nucléotides entre lesquels la jonction se fait, le cadre de lecture de l’ADN peut changer et, avec lui, des acides aminés différents peuvent être introduits dans la protéine ; toutes les jonctions ne donnent cependant pas lieu à des réarrangements VJ ou VDJ productifs, car des codons de terminaison précoces peuvent être introduits (Figure 8.7).
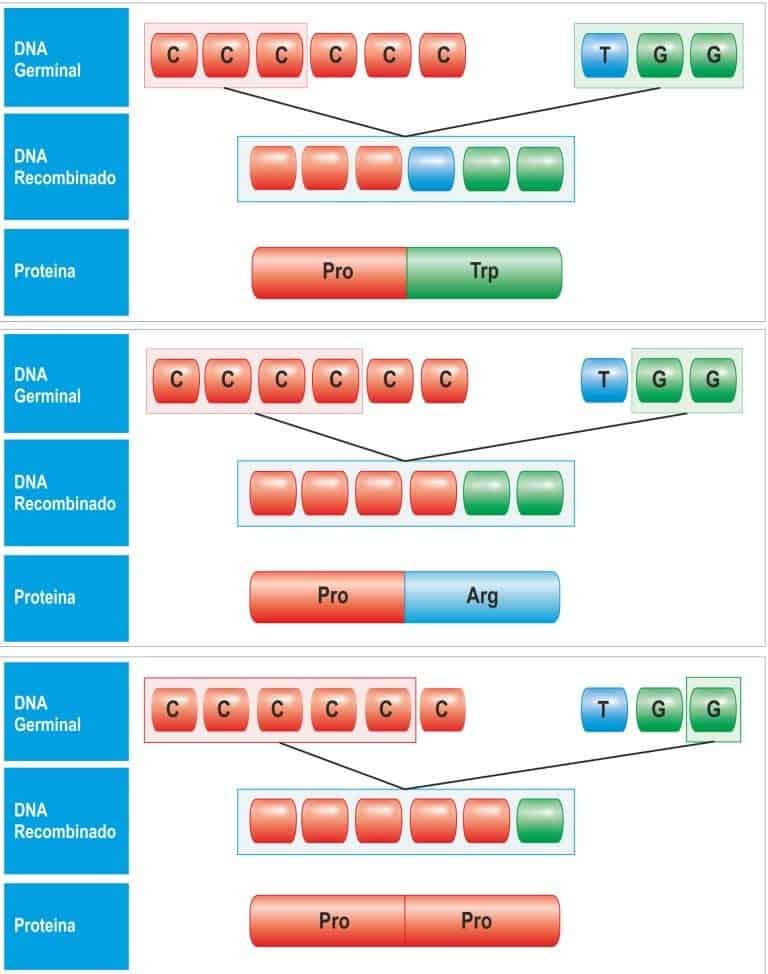
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
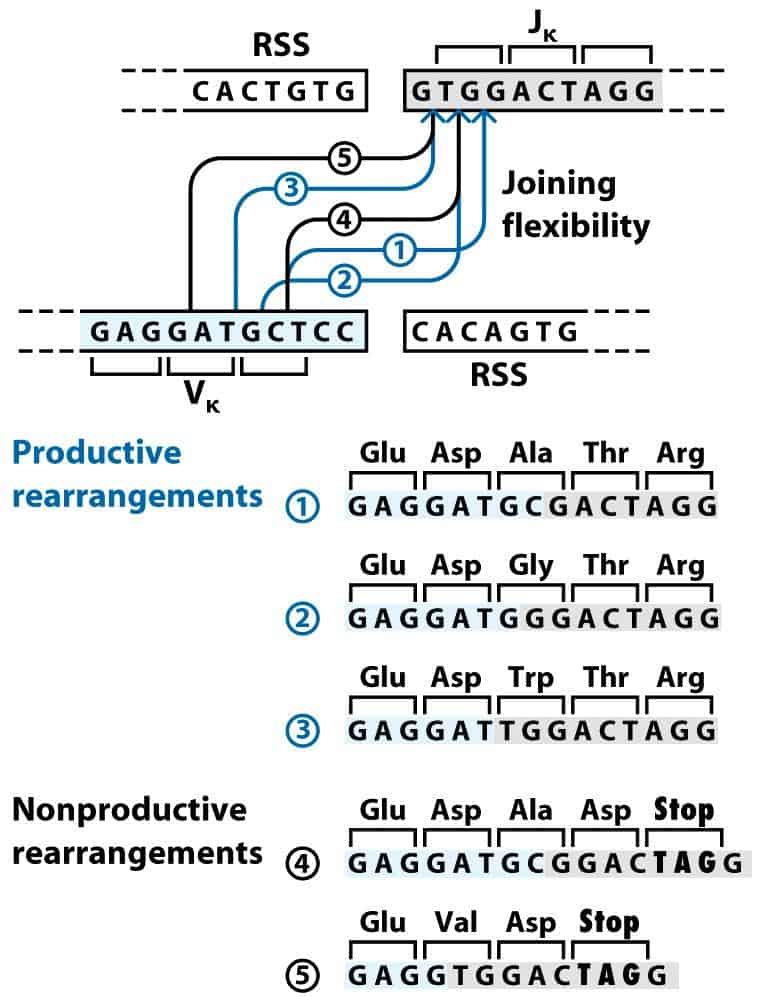
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
- L’ajout de nucléotides supplémentaires, qui s’effectue selon 2 processus distincts :
- Les nucléotides entraînés lors des réarrangements, après l’excision de l’ADN monocaténaire, et qui restent pendants à l’extrémité, se replient pour former une structure en épingle à cheveux (Figure 8.8-A) qui protège l’ADN. Lorsque cette épingle se rompt, ces nucléotides restent « pendants » et l’action d’enzymes de réparation ajoute les nucléotides complémentaires à ce brin, générant une séquence palindromique ; c’est pourquoi ces nucléotides sont appelés nucléotides P. Dans ce processus, les nucléotides P sont entraînés au hasard, aussi bien dans les chaînes légères que dans les chaînes lourdes (et ils sont responsables d’une forte augmentation de la variabilité, mais aussi de possibles décalages du cadre de lecture qui donneraient lieu à des protéines abortives).
- Mais en outre, l’enzyme désoxynucléotidyl transférase terminale (TdT) peut ajouter quelques nucléotides (en nombre variable) au hasard, sans matrice, dans les zones de jonction (Figure 8.8-B). Leur incorporation génère une diversité considérable. Ces nucléotides sont appelés nucléotides N. Cet ajout de nucléotides au hasard par la TdT a toujours lieu et en 2 endroits (entre les fragments D et J et entre les fragments V et D) dans les chaînes lourdes. En revanche, dans la chaîne légère, il a lieu en un seul endroit (entre le fragment V et le J) et seulement dans 50 % des cas. On a observé que la longueur des nucléotides N peut atteindre jusqu’à 15.
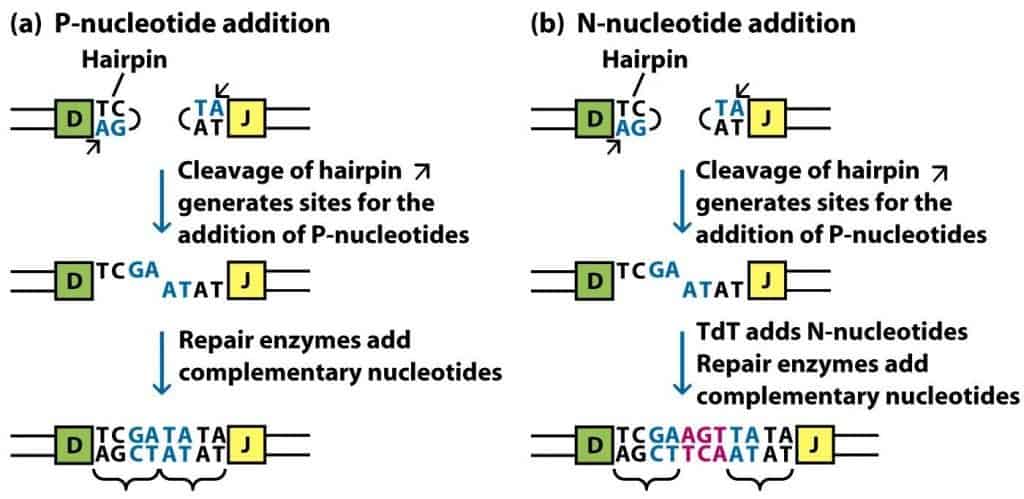
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Hypermutation somatique
Ce mécanisme inducteur de variabilité agit dans les organes lymphoïdes secondaires, une fois qu’un lymphocyte B mature a été activé en réponse à un antigène. On a pu vérifier expérimentalement que, lorsqu’on introduit un antigène chez une souris, des mutations apparaissent au bout de quelques jours dans les régions variables des chaînes lourdes comme des chaînes légères (Figure 8.9). Ensuite, en cas d’immunisation secondaire, on observe encore beaucoup plus de mutations dans les régions variables. Les mutations ponctuelles introduites dans ce processus peuvent modifier ou non la séquence en acides aminés de la région variable.
Les changements qui modifient la séquence protéique (mutations productives) se concentrent dans les régions codant les régions hypervariables (CDR, d’interaction avec l’antigène), tandis que ceux qui ne modifient pas la séquence (mutations silencieuses) se produisent généralement au niveau des régions flanquantes. Ce processus a lieu au hasard au moment où la cellule B répond à l’antigène.
Le résultat peut être néfaste : il peut y avoir des codons de terminaison qui génèrent des protéines tronquées, ou des immunoglobulines qui ne reconnaissent pas l’antigène. Dans ces cas, les lymphocytes B ne progressent pas.
Il est toutefois également possible que la mutation produise des anticorps de plus forte affinité, permettant une meilleure reconnaissance de l’antigène. C’est pourquoi ce mécanisme est aussi appelé maturation d’affinité. Ces clones seront sélectionnés, ce qui permettra un affinement de la réponse immunitaire.
Ce système d’amplification du répertoire n’est pas inclus dans le calcul des récepteurs distincts qui peuvent être générés ; c’est cependant un mécanisme supplémentaire de génération de diversité.
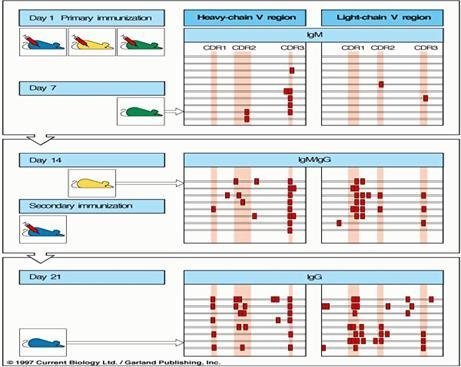
(Reproduit de Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)