Voici le programme expliqué dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Régulation du système du complément
Étant donné les effets destructeurs dévastateurs que déclenche le système du complément et la rapidité avec laquelle son activation est déclenchée et amplifiée, il n’est pas surprenant qu’il existe de multiples mécanismes empêchant son activation incontrôlée.
Un mécanisme passif de régulation du système du complément est la labilité de certains de ses composants, qui permet leur inactivation spontanée lorsqu’ils ne sont pas stabilisés par une réaction avec d’autres composants. Par exemple, la C3 convertase de la voie alterne a une demi-vie active d’environ 5 minutes, à moins qu’elle ne soit stabilisée par la properdine.
Les mécanismes actifs de régulation du système du complément font intervenir un ensemble de protéines régulatrices qui inactivent différents éléments du complément. Les protéines régulatrices du complément peuvent se trouver sous forme soluble ou ancrées à la membrane, comme le détaille la Figure 12.8.
Il faut distinguer les récepteurs du complément des protéines régulatrices du complément qui tapissent les membranes cellulaires. Dans les deux cas, leurs ligands sont des composants du complément, mais leurs fonctions biologiques diffèrent : les premiers servent aux cellules du système immunitaire à améliorer l’élimination des pathogènes, les secondes inhibent l’activation incontrôlée du complément sur les tissus sains. Il existe une exception : CR1 remplit les deux rôles.
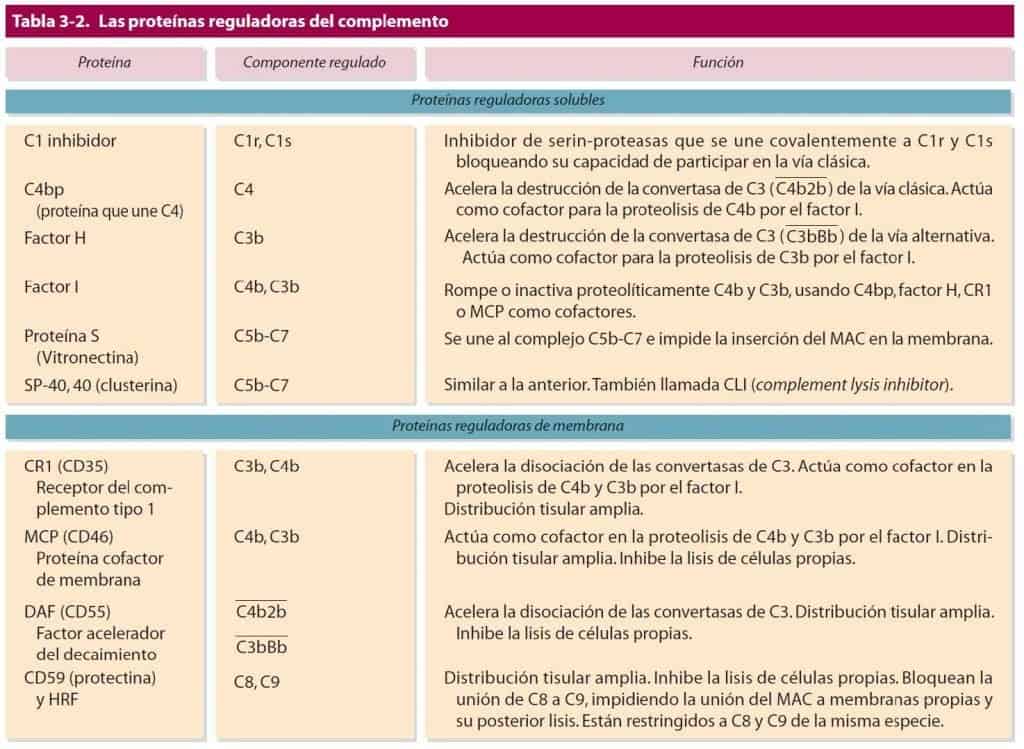
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Régulation du complément avant l’assemblage de la convertase
L’inhibiteur de C1 (C1Inh) est une glycoprotéine soluble capable de former un complexe avec C1r2s2, ce qui provoque la dissociation de C1q et empêche ainsi l’activation de C4 ou de C2 (Figure 12.9-1).
La réaction catalysée par la C3 convertase issue de n’importe laquelle des voies d’activation est capable de générer des centaines de molécules de C3b. Celles-ci, à leur tour, sont capables de se lier aux cellules voisines et de les endommager en induisant sur elles la formation du CAM. Comme mécanisme de régulation, C3b subit une hydrolyse spontanée dès qu’il s’éloigne de plus de 40 nm des C3 convertases. En outre, il existe une série de protéines, appelées RCA (regulators of complement activation), qui régulent l’activité des C3 convertases. Parmi elles figurent la protéine de liaison à C4b (C4bBP), le récepteur du complément 1 (CR1) et la protéine cofacteur membranaire (MCP). Chacune de ces protéines régulatrices se lie à C4b et empêche sa liaison à C2b. Ensuite, une autre protéine régulatrice, le facteur I, clive C4b en C4d lié et C4c soluble (Figure 12.9-2,3).
Une séquence régulatrice similaire empêche l’assemblage de la C3 convertase de la voie alterne. Dans ce cas, CR1, MCP ou un composant régulateur appelé facteur H se lient à C3b et empêchent sa liaison au facteur B. Le facteur I clive ensuite C3b en un fragment iC3b lié et un fragment C3f soluble. La protéolyse ultérieure de iC3b par le facteur I donne du C3c soluble et du C3dg lié à la membrane (Figure 12.9-4,5).
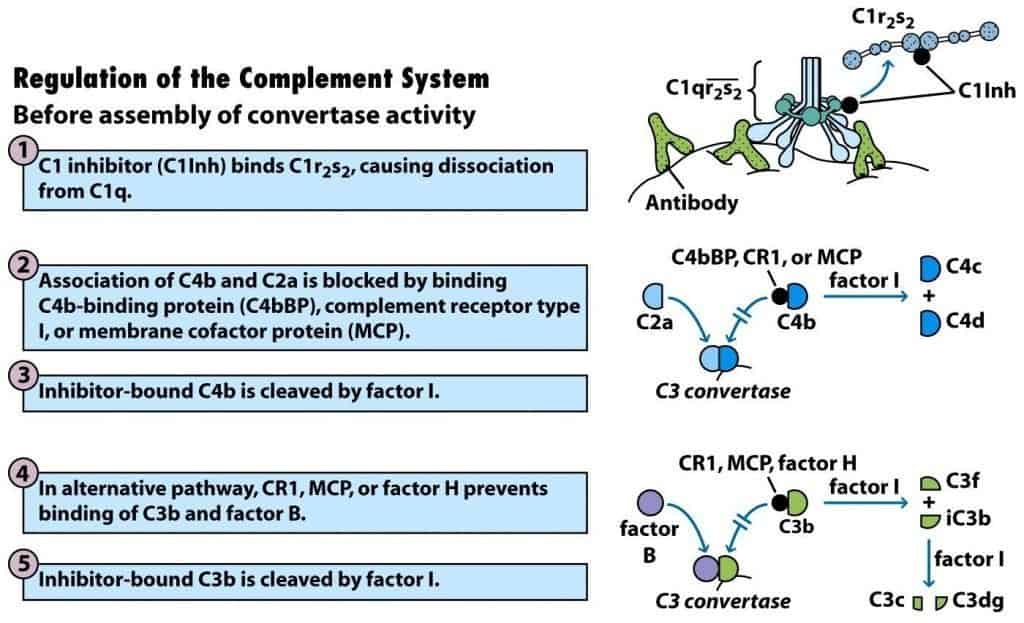
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Régulation du complément après l’assemblage de la convertase
Les protéines RCA, en particulier C4bBP, CR1 et le facteur H, agissent également sur la C3 convertase assemblée et provoquent sa dissociation. Le facteur accélérateur de la dégradation (DAF) ou CD55, une glycoprotéine membranaire, a lui aussi la capacité de dissocier la C3 convertase. Après la dissociation de la C3 convertase, le facteur I clive le composant C4b ou C3b restant lié à la membrane, ce qui inactive irréversiblement la convertase (Figure 12.10).
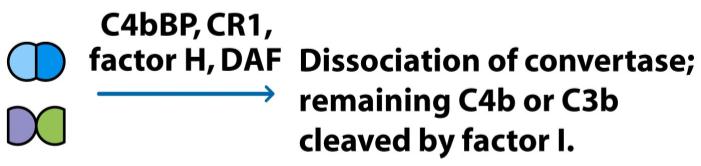
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Régulation du complément lors de l’assemblage du CAM
La formation du complexe C5b67 comporte un risque élevé de lyse pour les cellules saines de l’hôte. C’est pourquoi de multiples protéines sériques contrecarrent cette menace en se liant au complexe et en empêchant son insertion dans la membrane des cellules voisines. Ainsi, la protéine S est capable de se lier à C5b67 et d’empêcher son insertion dans la membrane cellulaire (Figure 12.11-1).
La lyse cellulaire médiée par le complément est plus efficace lorsque le complément provient d’une espèce différente de celle des cellules lysées. Ce phénomène est attribué au facteur de restriction homologue (HRF), inhibiteur membranaire de la lyse réactive (MIRL), CD59 ou protectine. Cette protéine se trouve dans la membrane de nombreux types cellulaires et protège les cellules de la lyse non spécifique médiée par le complément en se liant à C8, ce qui empêche l’assemblage de poly-C9 et son insertion dans la membrane. Cette inhibition n’a lieu que lorsque les composants du complément proviennent de la même espèce que les cellules cibles (Figure 12.11-2).
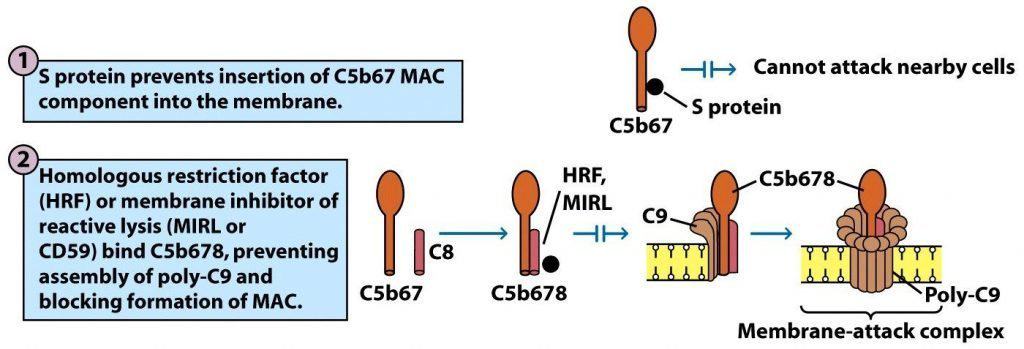
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)