Voici le programme présenté dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Structure protéique du TCR
Le récepteur de la cellule T (TCR) se compose d’un ensemble de protéines membranaires, les unes impliquées dans la reconnaissance de l’antigène (protéines variables) et les autres ayant une fonction structurale ou de transmission du signal à l’intérieur de la cellule (protéines constantes).
Protéines variables
Comme on l’a déjà décrit, il existe deux récepteurs possibles de la cellule T quant à la composition des chaînes variables : α-β (cellules T2) et γ-δ (cellules T1).
Structure du récepteur de la cellule T α-β
Le récepteur antigénique majoritaire, aussi bien des cellules T auxiliaires (CD4+) que des lymphocytes T cytotoxiques (CD8+), est un hétérodimère formé de deux chaînes polypeptidiques transmembranaires appelées α et β, reliées entre elles de façon covalente par un pont disulfure (Figure 7.2). Cette structure hétérodimérique est « équivalente » à un fragment Fab de l’immunoglobuline. Chaque chaîne se compose de deux domaines : un domaine variable (V) N-terminal qui reconnaît les antigènes et un domaine constant (C) qui intervient dans la signalisation. Le TCR est donc un autre membre de la superfamille des immunoglobulines.
Les régions V des chaînes α et β possèdent de courts segments de séquence où se concentre la variabilité entre les différents TCR et qui forment les régions hypervariables ou déterminant la complémentarité (CDR). Dans la chaîne α, on trouve 3 CDR juxtaposés aux CDR de la chaîne β, qui font partie du TCR reconnaissant la molécule du CMH.
À la suite des domaines C se trouve la région charnière, courte et comportant des résidus de cystéine qui contribuent à un pont disulfure entre les deux chaînes. Vient ensuite la zone transmembranaire hydrophobe et, enfin, les chaînes α et β possèdent de courtes queues cytoplasmiques carboxy-terminales.
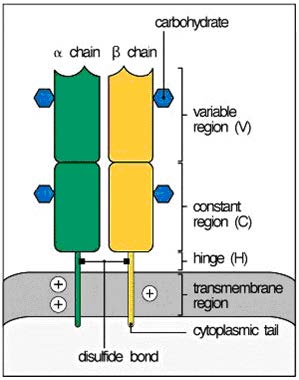
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Structure du récepteur de la cellule T γ−δ
C’est un second type d’hétérodimère relié par un pont disulfure, exprimé dans une petite sous-population de cellules T qui représentent moins de 5 % de l’ensemble des cellules T (dans le sang périphérique, bien qu’elles puissent être en plus grande proportion dans les tissus lymphoïdes secondaires, principalement muqueux). Il se compose de régions V et C extracellulaires de type immunoglobuline, d’une région charnière, de segments transmembranaires hydrophobes et de courtes queues cytoplasmiques semblables à celles des chaînes α-β. La région charnière contient des résidus de cystéine impliqués dans des ponts disulfure interchaînes. La fonction de ce type de récepteur n’est pas encore claire, mais il est moins évolué et l’on sait qu’il reconnaît des molécules non peptidiques dérivées de bactéries ainsi que de petites molécules phosphorylées (phospholipides présentés par CD1).
Les lymphocytes porteurs de récepteurs α-β peuvent exprimer le corécepteur CD4 (Th) ou CD8 (Tc), mais jamais les deux simultanément. Les lymphocytes T porteurs d’un récepteur γ-δ n’expriment normalement pas de corécepteur et, s’ils en expriment un, ce sera toujours CD8.
Protéines constantes
Les protéines CD3 et le dimère δ-δ s’associent de façon non covalente aux hétérodimères α-β ou γ-δ et, lorsque le TCR reconnaît l’antigène, ces protéines associées transduisent les signaux qui conduisent à l’activation de la cellule T.
Protéines CD3
Le complexe protéique CD3 est composé de 3 types de protéines : CD3-γ, CD3-δ et CD3-ε. Ces 3 protéines s’organisent en deux hétérodimères avec le TCR : CD3-ε/CD3-γ et CD3-ε/CD3-δ (Figure 7.3). Les gènes de ces trois protéines sont situés côte à côte sur le chromosome 11, ce qui fait proposer une origine évolutive commune. Les régions extracellulaires N-terminales des chaînes CD3-γ, -δ et -ε contiennent un domaine unique de type immunoglobuline, et c’est pourquoi toutes trois font partie de la superfamille des immunoglobulines. Les domaines cytoplasmiques de CD3-γ, -δ et -ε contiennent des motifs à fonction de signalisation appelés ITAM (motifs d’activation à base de tyrosines des immunorécepteurs).
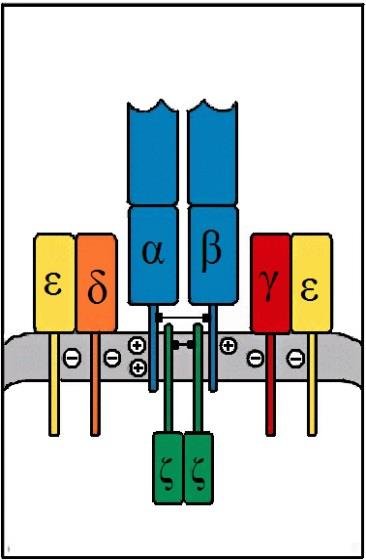
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Dimère δ-δ
Les complexes TCR contiennent aussi un homodimère de la chaîne δ relié par un pont disulfure. Cette chaîne δ, bien qu’également transmembranaire, a la plus grande proportion de sa protéine dans le cytoplasme de la cellule. Les protéines CD3 et la chaîne δ sont identiques dans toutes les cellules T, quelle que soit leur spécificité, ce qui confirme qu’elles interviennent dans la signalisation et non dans la reconnaissance de l’antigène.
La chaîne δ possède une courte région extracellulaire, une région transmembranaire et une longue région cytoplasmique qui contient trois ITAM. Cette chaîne appartient à la superfamille des immunoglobulines.