Voici le programme présenté dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Caractéristiques des anticorps
La structure minimale d’un antigène qui est reconnue par un anticorps et qui est capable de déclencher une réponse immunitaire s’appelle l’épitope.
Les épitopes peuvent résulter de la succession d’acides aminés dans la structure primaire (épitopes linéaires) ou du repliement de la protéine (épitopes conformationnels). Les épitopes sont en contact étroit avec les paratopes des immunoglobulines.
Les trois caractéristiques fondamentales d’un anticorps sont l’affinité, l’avidité et la spécificité (déterminée par la séquence d’acides aminés de ses domaines variables).
L’affinité détermine la rapidité avec laquelle l’anticorps (Ac) se lie à l’Ag ; elle est déterminée par la force des liaisons entre les deux molécules. Cette liaison ne sera jamais covalente et se trouvera dans un équilibre déplacé d’un côté ou de l’autre selon l’affinité. Cette force de liaison, et donc l’affinité, dépend du nombre et du type de liaisons chimiques entre le paratope et l’épitope.
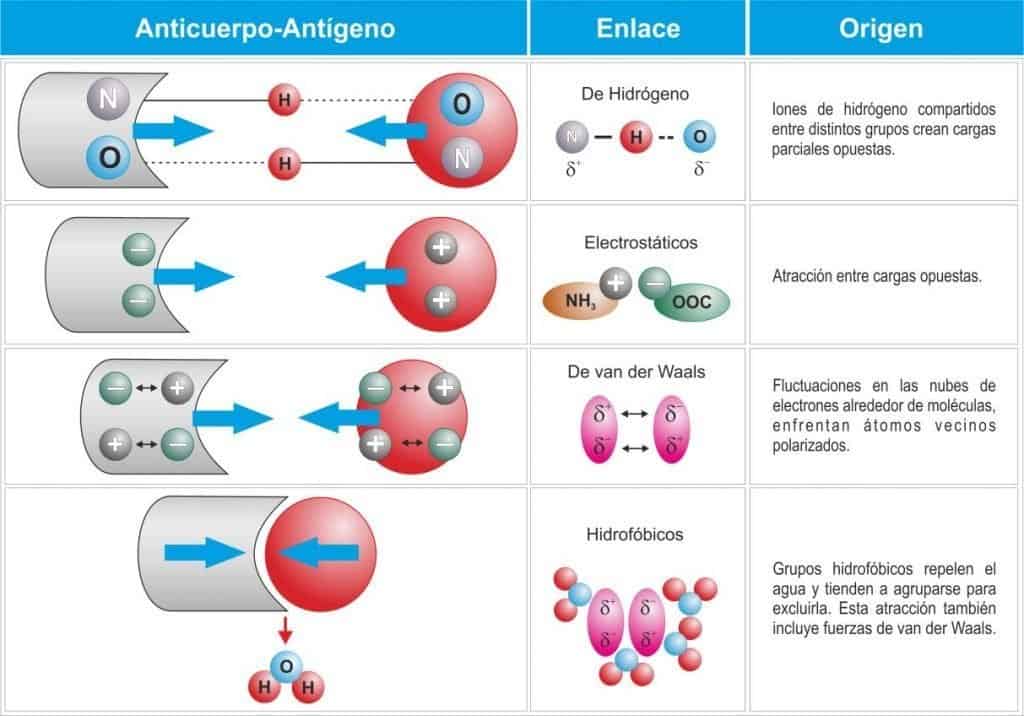
Ces liaisons peuvent être de plusieurs types (Figure 6.9) :
- Liaisons hydrogène : des ions H partagés par des atomes de l’Ag et de l’Ac créent des charges partielles opposées.
- Liaisons électrostatiques : des charges de polarité opposée apparaissent entre l’Ac et l’Ag.
- Forces de Van der Waals : des fluctuations dans les nuages électroniques autour des molécules mettent en regard des atomes voisins polarisés.
- Liaisons hydrophobes : des groupes hydrophobes de l’Ac et de l’Ag se lient en excluant les molécules d’eau.
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Selon le type et le nombre de liaisons, l’affinité d’un anticorps pour son antigène sera plus ou moins grande. L’avidité est donnée par le nombre de sites de liaison : c’est la force avec laquelle un anticorps multivalent se lie à un antigène multivalent. Certains antigènes présentent des séquences répétitives dans leur structure. Ces antigènes se comportent de façon multivalente, et la force de liaison Ag-Ac est supérieure à la simple somme des affinités de chacun des sites de liaison de l’anticorps à l’antigène. Ainsi, plus il y a de sites de liaison, plus l’avidité est grande.
Par exemple, l’IgM pentamérique est généralement la plus avide pour un antigène, car elle présente 10 sites de liaison. Dans les situations physiologiques, l’avidité est probablement plus importante que l’affinité, parce que les anticorps sont en majorité divalents et que les antigènes sont le plus souvent multivalents. La spécificité, l’avidité et l’affinité sont déterminées par la région Fab de l’anticorps. La fonction est déterminée par le fragment Fc.
Fonctions des anticorps
Les anticorps sont de bons exemples de la manière dont la structure est étroitement liée à la fonction. Ce sont des molécules en forme de Y, dont les bras courts (Fab) interagissent avec l’antigène et dont la tige (Fc) assure la fonctionnalité effectrice. À la suite de la réaction Ac-Ag, différentes fonctions se mettent en place :
- Agglutination – neutralisation de l’antigène. Les anticorps sont bivalents, c’est-à-dire qu’ils possèdent deux sites de reconnaissance de l’antigène. Cela permet son agglutination afin de mieux l’éliminer. En outre, lorsque toute la surface du pathogène est recouverte de molécules d’anticorps, il se produit un phénomène appelé neutralisation. Ainsi, par exemple, certaines toxines attaquent les terminaisons nerveuses, mais lorsque les anticorps s’y lient, ils les neutralisent.
- Opsonisation – phagocytose. Le revêtement de la surface du pathogène par des anticorps peut avoir des conséquences ultérieures. Ainsi, les macrophages, qui possèdent des récepteurs de la portion cristallisable de l’anticorps (Fc), appelés FcR, peuvent phagocyter les pathogènes recouverts d’anticorps. Dans ce cas, ce revêtement porte le nom d’opsonisation.
- Immobilisation du pathogène. Si l’anticorps se lie à la partie mobile du pathogène (cils, flagelles), il provoque son immobilisation, ce qui réduit sa pathogénicité.
- Activation du complément. Lorsqu’un anticorps se lie à un antigène, un changement de conformation se produit dans la région Fc de l’anticorps, qui induit l’activation du système du complément. Seules l’IgM et l’IgG sont capables de réaliser cette action, qui joue un rôle important dans l’immunité adaptative contre les infections. L’unité de reconnaissance du système du complément qui reconnaît les anticorps liés est la protéine C1q du facteur C1.
- Expulsion. Lorsque les anticorps sont de type IgE et que les antigènes sont des parasites, la liaison IgE-antigène favorise la libération d’amines vasoactives qui relâchent la musculature lisse et provoquent une diarrhée dans l’intestin afin d’expulser le parasite.
- Cytolyse médiée par les anticorps (ADCC). Une autre fonction médiée par des récepteurs de la portion Fc de l’anticorps est la cytotoxicité à médiation cellulaire dépendante des anticorps (ADCC). Les cellules effectrices sont en majorité les lymphocytes NK qui, en reconnaissant l’anticorps fixé à la surface du pathogène, libèrent des substances cytotoxiques qui attaquent le pathogène. Le mécanisme de l’ADCC est indépendant du système du complément et exige que le lymphocyte NK exprime des récepteurs membranaires FcR de la portion distale des anticorps IgG (CD16).
- Immunité chez le fœtus et le nouveau-né : pendant la grossesse et les premiers mois de vie, les immunoglobulines maternelles sont le seul mécanisme de défense spécifique dont dispose le nouveau-né. Son système immunitaire n’a pas encore atteint sa maturité et il n’a pas, dans un premier temps, les moyens de fabriquer ses propres immunoglobulines. Celles-ci doivent être transportées à travers le placenta, ou à travers l’épithélium intestinal du nouveau-né lorsqu’elles proviennent du lait maternel.
Concentration et fonction des différents isotypes
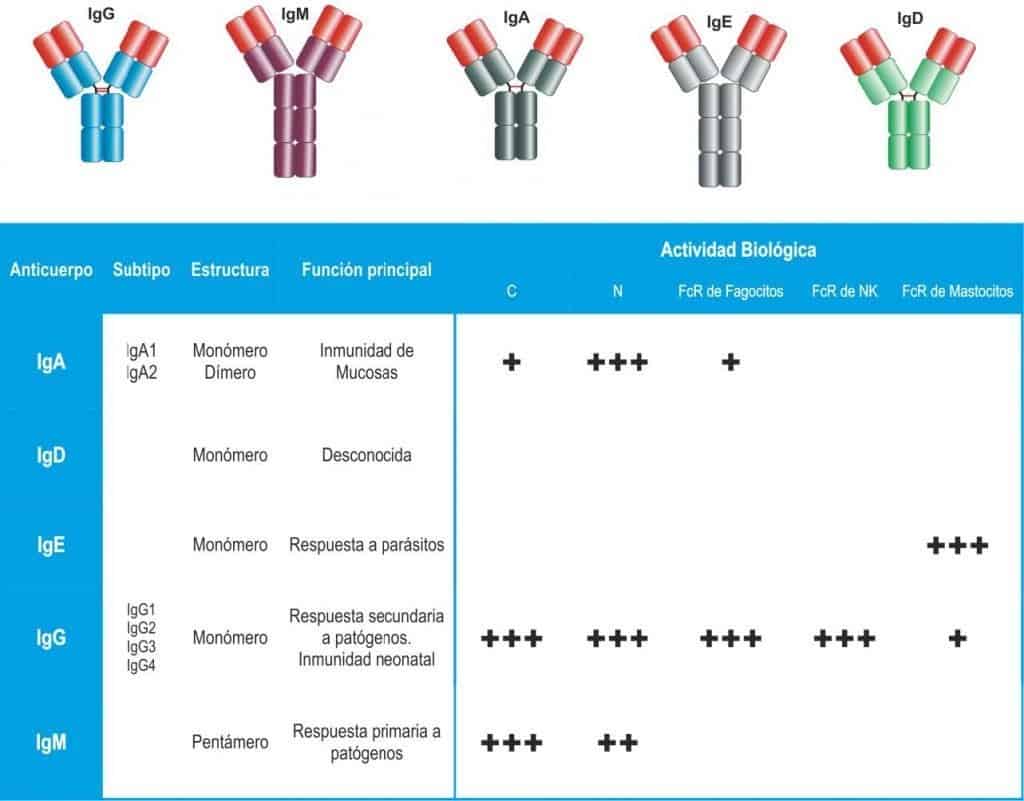
Chaque isotype d’anticorps assure plus efficacement certaines de ces fonctions effectrices (Figure 6.10). Ainsi, pour une même région variable, des régions constantes différentes entraînent des différences dans la fonction effectrice de l’anticorps :
- IgA : il existe deux sous-classes, IgA1 (80 à 90 % du total des IgA du sérum) et IgA2 (30 à 50 % du total des IgA des sécrétions comme le lait). Les deux sous-classes semblent être régulées de façon indépendante. Les taux sériques varient avec l’âge et sont élevés chez la femme pendant l’allaitement, ainsi que dans les infections chroniques, les maladies hépatiques et le myélome. Un taux bas d’IgA indique un déficit généralisé en protéines ou un déficit immunitaire spécifique en IgA. Cette Ig est la plus abondante dans les sécrétions séromuqueuses comme la salive, le lait ou le colostrum. Elle fait partie du système de défense de la surface externe de l’organisme. Dans les sécrétions, elle se présente sous forme de dimère relié à une chaîne J, qui unit les deux monomères d’IgA, et à la pièce sécrétoire, tandis que dans le sang elle se présente sous forme de monomère (composé de deux chaînes lourdes alpha et de deux chaînes légères). Sa fonction principale est la neutralisation, mais elle possède aussi, dans une moindre mesure, une capacité d’activation du complément.
- IgD : on la trouve essentiellement dans le plasma (moins de 1 % du total des immunoglobulines plasmatiques, et indétectable chez les individus sains) et toujours sous forme de monomère. Sa fonction est inconnue, mais elle est abondante à la surface des lymphocytes B et l’on pense qu’elle participe à la différenciation de ces cellules induite par l’antigène. Les lymphocytes B porteurs d’IgD se transforment en cellule anergique (qui ne sera jamais activée, inutile). On pense aussi qu’il pourrait s’agir d’un vestige évolutif appelé à disparaître.
- IgE : sa concentration plasmatique (sous forme monomérique) est faible et indétectable chez les individus sains. Elle se lie (par l’intermédiaire de récepteurs de Fc) à la surface des basophiles et des mastocytes, et sa fonction est la défense contre les gros parasites ; cependant, dans les sociétés industrialisées, elle est associée aux réactions d’hypersensibilité immédiate, comme l’asthme ou le rhume des foins (hypothèse hygiéniste).
- IgG : dans le plasma ou le sérum des adultes normaux, l’IgG représente 75 % du total des immunoglobulines circulantes. Les taux sériques d’IgG varient en général avec l’âge, et même avec l’origine ethnique. Un taux élevé d’IgG est associé aux maladies chroniques du foie et au myélome ; des taux réduits peuvent être associés à une malignité et à de graves déficits en protéines, ainsi qu’à un déficit immunitaire. Elle comporte quatre sous-classes, toutes sous forme de monomère. L’IgG1 est la plus abondante dans le plasma, tandis que l’IgG4 est la plus rare. Elle présente une grande polyvalence fonctionnelle : elle est importante dans l’immunité fœtale parce qu’elle traverse le placenta et passe dans le plasma fœtal (seul anticorps de la période néonatale, d’origine maternelle), dans la réponse secondaire et dans l’activation du complément, en plus de renforcer la phagocytose, la cytotoxicité et la neutralisation.
- IgM : on la trouve dans le sang et dans les tissus infectés sous forme pentamérique (reliée par des chaînes J). Chaque unité se compose de deux chaînes lourdes µ et de deux chaînes légères. C’est l’isotype le plus important dans la réponse primaire. Elle se montre très efficace contre les antigènes pluripotents comme les bactéries et les virus, et intervient dans l’activation du complément. C’est un bon anticorps neutralisant, mais pas autant que l’IgG et l’IgM. Des taux élevés d’IgM sont associés à l’hépatite, au myélome, à la macroglobulinémie de Waldenström, aux infections et au syndrome d’hyper-IgM (déficit immunitaire congénital). Des taux réduits d’IgM s’observent dans certains déficits immunitaires en anticorps.
Par conséquent, dans le sérum, on trouvera par ordre décroissant d’abondance : IgG, IgA, IgM ; les quantités d’IgD et d’IgE seront indétectables chez un individu sain (moins de 1 % du total).
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Passage des IgA vers les muqueuses
L’immunoglobuline A est l’isotype fondamental des sécrétions, en particulier dans les épithéliums des voies digestives et respiratoires. Les plasmocytes (stade final de différenciation des lymphocytes B) producteurs d’IgA se trouvent surtout dans le tissu conjonctif (chorion ou lamina propria) situé immédiatement sous de nombreuses surfaces épithéliales.
L’IgA synthétisée dans la lamina propria est sécrétée sous forme d’IgA dimérique associée à une chaîne de jonction J (Figure 6.11). Cette forme polymérique d’IgA se lie sélectivement à un récepteur des polyimmunoglobulines (poly-Ig-R) présent sur les surfaces basolatérales des cellules épithéliales. Une fois l’IgA dimérique liée à ce récepteur, le complexe est internalisé dans la cellule et transporté à travers le cytoplasme de la cellule épithéliale dans des vésicules de transport, jusqu’à la partie apicale de la cellule. Ce processus s’appelle transcytose.
Une fois dans la zone apicale de la cellule épithéliale, le récepteur des poly-Ig est clivé par une endoprotéase (favorisée par le pH acide de la lumière intestinale), ce qui libère la portion la plus externe du récepteur, encore liée à l’IgA dimérique. Ce fragment du récepteur libéré avec l’IgA s’appelle pièce sécrétoire et semble protéger l’IgA dimérique d’éventuelles dégradations enzymatiques ; l’autre fragment reste fixé à la surface de la cellule épithéliale.
Les tissus où la synthèse d’IgA est la plus importante sont l’intestin, l’épithélium respiratoire, la glande mammaire (pendant l’allaitement) et d’autres glandes exocrines comme les glandes salivaires et lacrymales. On pense que la fonction principale des anticorps IgA est de protéger la surface épithéliale contre les agents infectieux en les neutralisant.
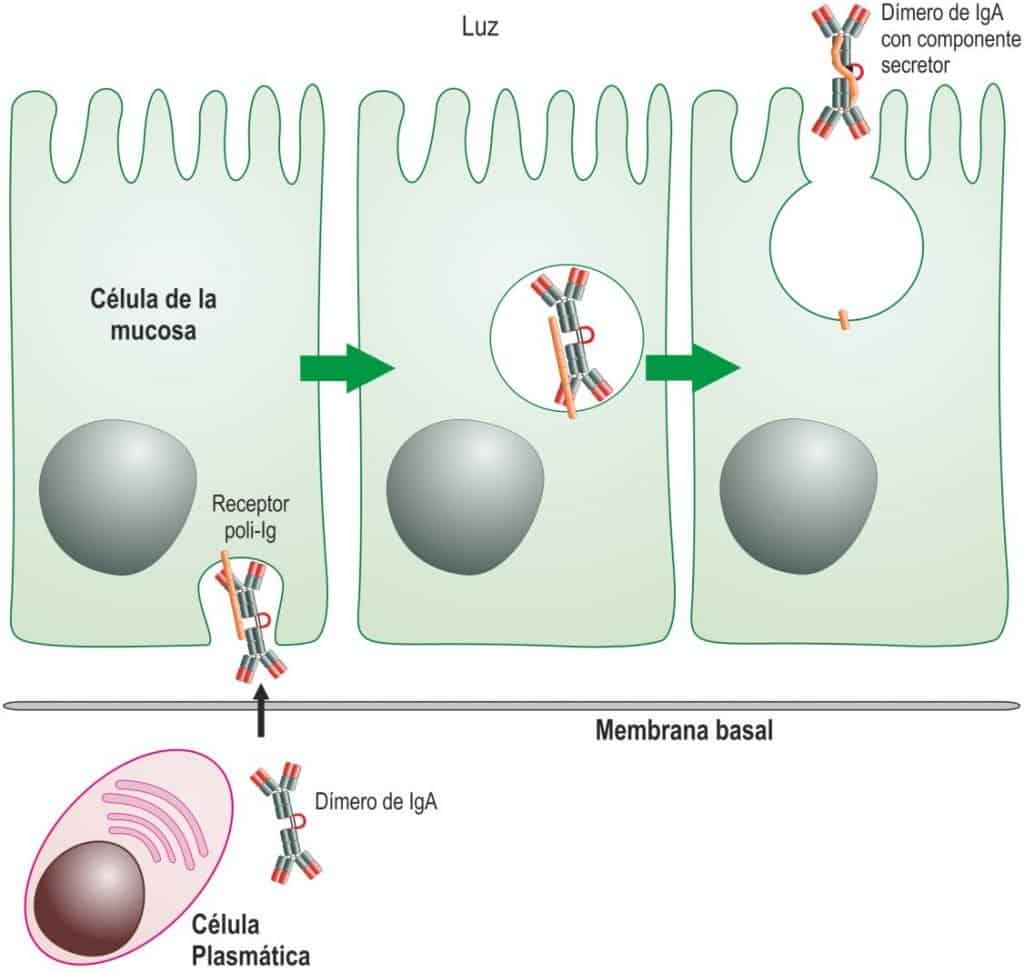
Figure 6.11 Passage des IgA vers les muqueuses
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)