Voici le programme présenté dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
La réponse immunitaire spécifique repose sur la reconnaissance spécifique des antigènes, aussi bien dans la réponse des lymphocytes B que dans celle des lymphocytes T. Pour cette reconnaissance spécifique, chaque type de lymphocyte possède des protéines fondamentales, et les immunoglobulines sont les molécules spécifiques de l’antigène propres aux cellules B. Par conséquent, la fonction principale du lymphocyte B est la synthèse d’immunoglobulines.
Les immunoglobulines forment un vaste groupe de protéines présentes dans le sérum et dans d’autres liquides de l’organisme. On les trouve sous deux formes principales :
- Forme soluble, appelées alors anticorps.
- Ancrées dans la membrane des lymphocytes B, elles font alors partie du récepteur de l’antigène des cellules B (BCR).
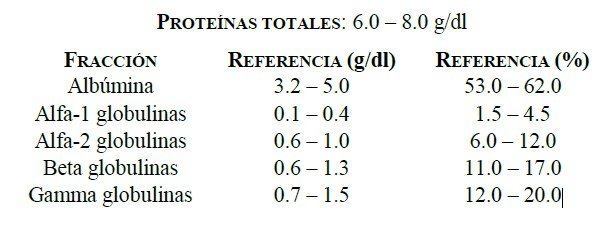
Les immunoglobulines se situent dans la fraction gamma des protéines du sérum après leur séparation par électrophorèse sur un protéinogramme (Figure 6.1).
Les immunoglobulines
Structure protéique de base
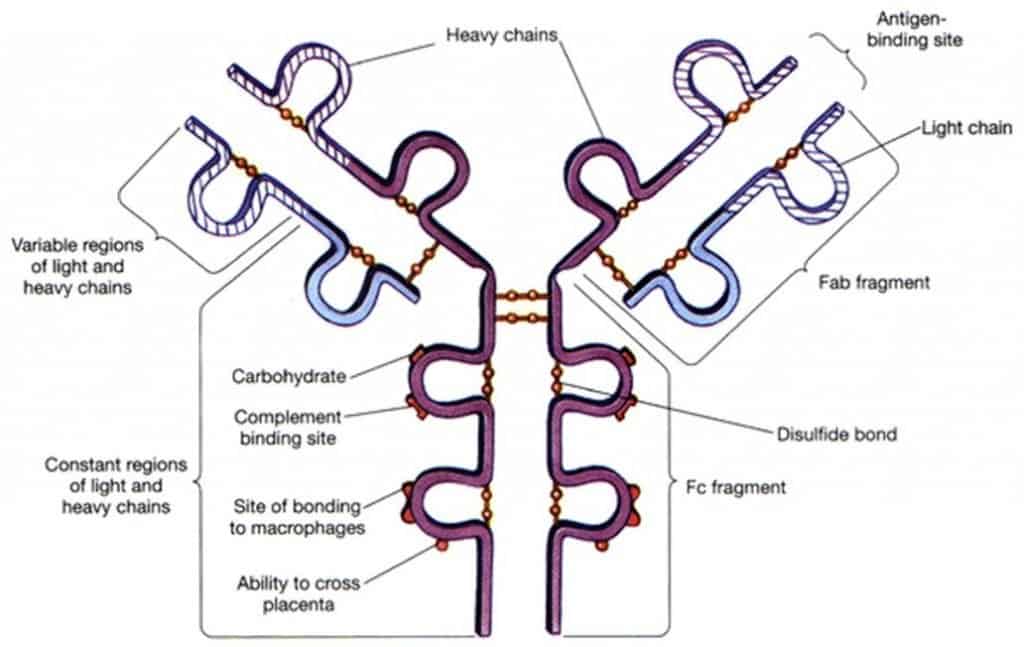
Les immunoglobulines ont une structure commune de 4 chaînes polypeptidiques identiques deux à deux. Cette structure comprend deux chaînes lourdes (H = heavy) et deux chaînes légères (L = light), identiques dans chaque molécule d’immunoglobuline (Figure 6.2). La masse moléculaire des chaînes H est comprise entre 55 et 77 kD, et celle des chaînes L est de 25 kD. Les différentes chaînes sont stabilisées par des ponts disulfure entre les deux chaînes lourdes et entre chaque chaîne lourde et une chaîne légère (mais jamais entre deux chaînes légères).
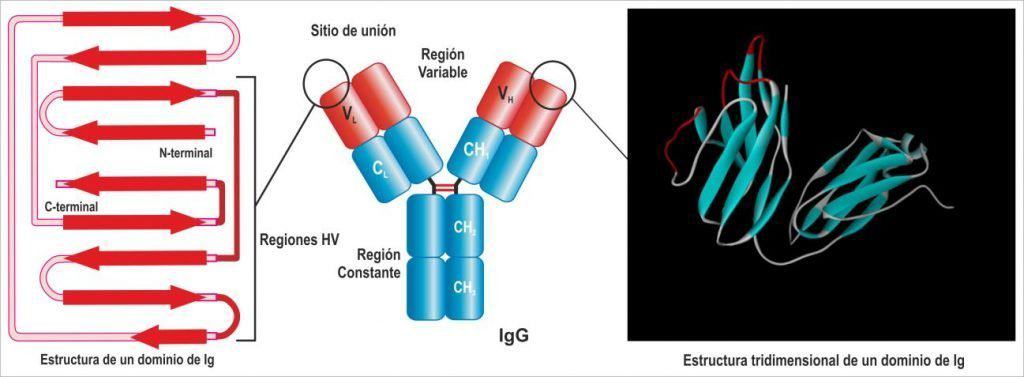
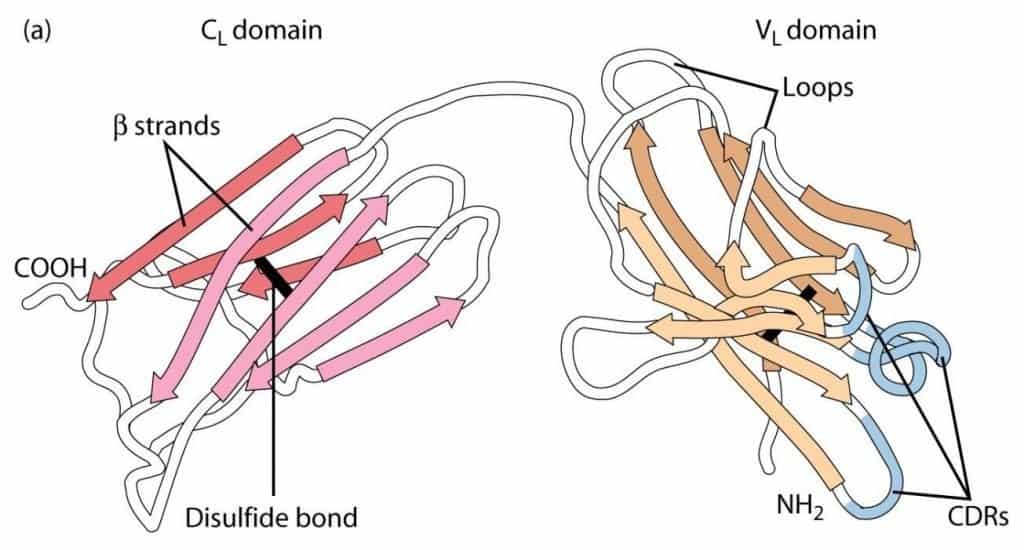
Les chaînes lourdes comme les chaînes légères présentent une unité structurale de base (le domaine immunoglobuline), qui se répète 4 à 5 fois dans les chaînes lourdes et 2 fois dans les chaînes légères. Ce domaine est constitué de deux feuillets bêta, chacun formé de 3 à 4 hélices alpha antiparallèles, très stables grâce à des interactions hydrophobes et à un pont disulfure intradomaine entre deux cystéines, chacune appartenant à l’une des hélices de chaque feuillet. On dit que les protéines qui présentent ce motif dans leur structure appartiennent à la superfamille des immunoglobulines.
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Ces domaines sont nommés selon qu’ils entrent ou non en contact avec l’antigène (Figure 6.3). Les domaines de la région carboxy-terminale sont dits constants (C), et l’on précise s’ils appartiennent à la chaîne lourde ou à la chaîne légère par un indice (H ou L) : on a ainsi des domaines CH et CL. Les domaines amino-terminaux sont responsables de la reconnaissance de l’antigène ; ce sont les domaines variables (V) et, là encore, l’appartenance aux chaînes lourdes ou légères est précisée par les indices VH et VL. Seulement dans le cas des chaînes lourdes (puisque les chaînes légères n’ont qu’un seul domaine constant), les domaines constants sont numérotés : CH1, CH2, CH3. Il peut exister un domaine constant supplémentaire (CH4), comme dans le cas des IgM et des IgE. La chaîne H comporte donc 4 à 5 domaines : le premier, à l’extrémité amino-terminale, est variable et les 3 ou 4 suivants sont constants. Les chaînes légères comportent toujours 2 domaines : un variable et un constant.
Entre le premier et le deuxième domaine constant de la chaîne lourde se trouve une zone ou région charnière de longueur variable (10 à 60 aa), non structurée en domaines, où se forment les liaisons disulfure entre les chaînes lourdes et qui confère de la flexibilité à l’Ig. C’est ce qui donne à la molécule sa structure caractéristique, que l’on schématise par un Y. Chaque Ig peut reconnaître simultanément 2 Ag identiques, car chaque paire de domaines variables (VH et VL) interagit avec un Ag identique à celui de l’autre paire.
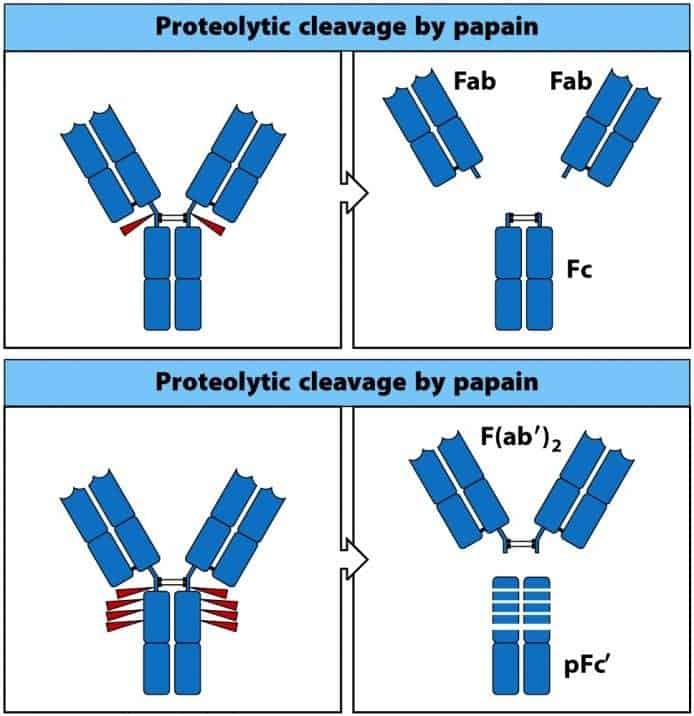
Lorsque la molécule d’Ig est soumise à l’action de protéases végétales (pepsine et papaïne), différents fragments protéiques sont libérés (Figure 6.4) :
- Papaïne : elle provoque une coupure dans chaque chaîne lourde, au niveau de la région charnière. On obtient 3 fragments : l’un contenant les 2 à 3 domaines constants des 2 chaînes lourdes, appelé fragment cristallisable (Fc), et 2 fragments identiques qui comprennent les domaines variables des deux chaînes, un domaine constant de la chaîne lourde et la chaîne légère en entier, appelés Fab (antigen binding fragment, fragment de liaison à l’antigène). La spécificité de l’Ig réside dans Fab, et Fc détermine la fonctionnalité de la molécule.
- Pepsine : elle coupe les chaînes lourdes en plusieurs points. On obtient un gros fragment contenant les deux sites de liaison à l’antigène reliés entre eux, appelé F’(ab)2, et différents fragments de la partie constante des chaînes lourdes, appelés pFc’.
(Reproduit de Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)