L’immunocompétence est la capacité de reconnaître un antigène de façon spécifique. Cette capacité s’acquiert dans la moelle osseuse.
Les lymphocytes naïfs mûrissent et se différencient dans la moelle osseuse. De là, ils passent dans la circulation et gagnent les organes lymphoïdes secondaires. Les cellules circulent en permanence, car ce sont des cellules naïves dotées d’une grande capacité de déplacement (les cellules activées créent des mécanismes pour rester à l’endroit où elles ont été activées). Les antigènes des pathogènes qui ont infecté l’organisme arrivent dans les organes lymphoïdes secondaires.
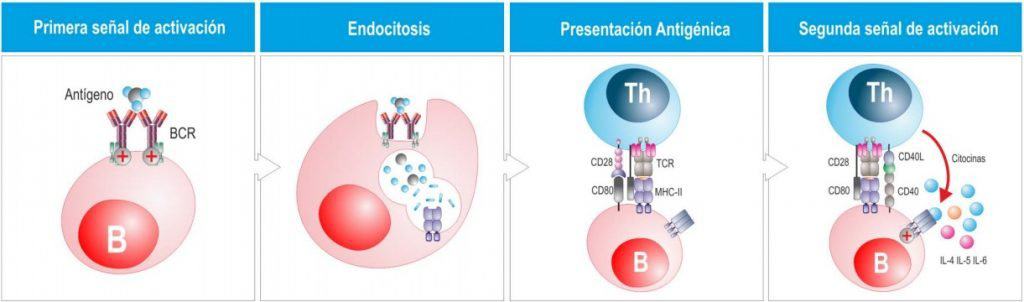
Les bactéries, les virus et les autres agents pathogènes, y compris les cellules tumorales, expriment des antigènes étrangers à leur membrane. Les récepteurs BCR du lymphocyte B interagissent avec leur Ag spécifique.
Après l’interaction du lymphocyte B avec l’antigène, celui-ci prolifère et crée un clone de lymphocytes portant le même BCR. Ce premier contact avec l’antigène (par l’intermédiaire d’un épitope) correspond à l’activation partielle du lymphocyte B, qui exprime alors, entre autres molécules, des récepteurs de cytokines et des molécules accessoires.
La cellule B se comporte alors comme un phagocyte et internalise le pathogène. Elle le dégrade, l’apprête et le présente aux lymphocytes T sur les molécules du CMH. La cellule B agit alors comme une cellule présentatrice d’antigène. La différence avec les autres cellules présentatrices d’antigène est que la spécificité des lymphocytes B pour les antigènes est beaucoup plus élevée : ils interagissent avec eux à des concentrations d’antigène beaucoup plus faibles. Cela, associé à l’interaction de CD28 avec CD80/86 de la cellule B, active le lymphocyte T.
Cette interaction entre les lymphocytes T et B permet la production du deuxième signal d’activation des lymphocytes B. Le lymphocyte T exprime CD40L, qui interagit avec CD40 du lymphocyte B, ce qui stimule la voie de formation des plasmocytes et transforme les cellules B en plasmocytes pour qu’elles synthétisent des anticorps. Les cytokines libérées par le lymphocyte T sont responsables de la production d’une Ig ou d’une autre.
Les cellules Th (CD4+) qui reconnaissent le peptide présenté par le CMH de classe II du lymphocyte B s’activent et commencent à proliférer et à se différencier pour activer les lymphocytes B. Pendant la présentation antigénique, une série d’interactions ont lieu entre les lymphocytes B et les Th. Une fois différenciés, les lymphocytes Th2 effecteurs ne quittent pas les organes lymphoïdes secondaires, contrairement aux lymphocytes Th1 ou Tc, mais y restent et envoient des signaux qui activent et amplifient le clone de lymphocytes B spécifique de l’antigène, qui avaient été partiellement activés. Les cytokines libérées par la cellule Th2 indiquent la commutation isotypique ainsi que le type de pathogène présent dans le milieu.
Le lymphocyte B agit de deux manières :
- Contacts directs membrane-membrane par une molécule CD40 - CD40L (une partie du deuxième signal stimulateur, avec les cytokines).
- Par des facteurs solubles (IL-4, IL-10, IL-13).
Selon le type de cytokine, différents isotypes seront produits. Tout cela se déroule dans le nœud lymphatique.
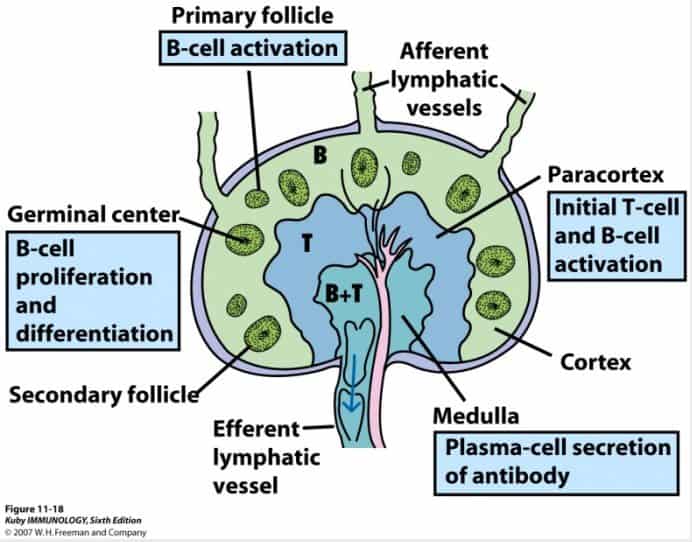
Dans les nœuds lymphatiques, les cellules B activées prolifèrent dans les centres germinatifs, situés dans le cortex.
Follicule lymphoïde primaire
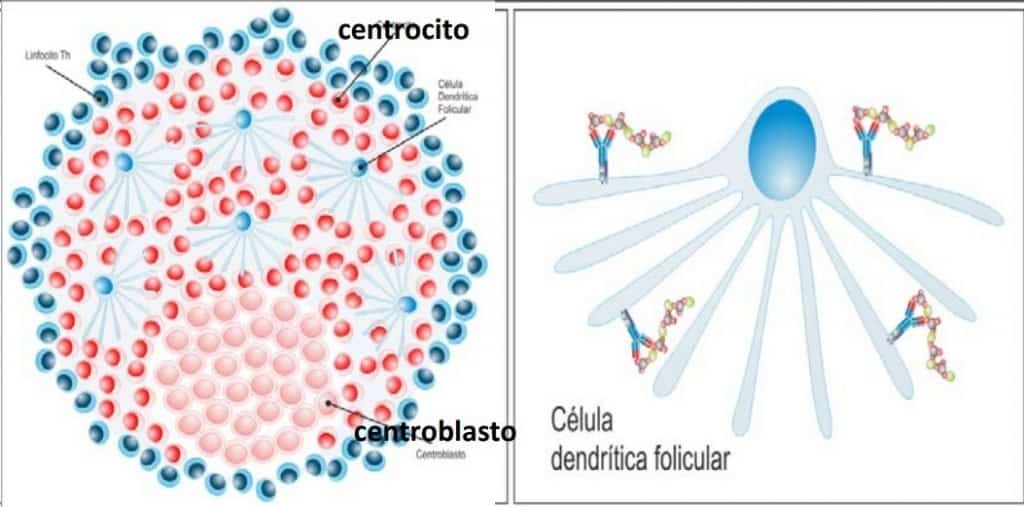
Premier clone de cellules B activées, en prolifération. Au bout d’un certain temps (environ une semaine), le follicule primaire devient un follicule lymphoïde secondaire, qui comporte une zone centrale plus dense appelée centre germinatif, où l’on trouve des cellules B en division, et une zone périphérique moins dense formée de lymphocytes B qui ne prolifèrent pas, appelée manteau. Les lymphocytes B qui prolifèrent dans le centre germinatif changent de morphologie et se distinguent de ceux qui sont au repos parce qu’ils sont plus gros. Les centroblastes sont les cellules B qui ont reconnu l’Ag et qui sont en division, et les lymphocytes B issus de la division précédente sont les centrocytes, qui ont déjà cessé de se diviser. À l’extérieur, il y a une couche de lymphocytes T.
Les cellules en prolifération subissent une série de changements qui améliorent leur affinité (hypermutation somatique) et leur efficacité contre le pathogène.
Cellules dendritiques folliculaires ou interdigitées
Elles se trouvent à l’intérieur du centre germinatif. Elles présentent des antigènes (de micro-organismes ou de bactéries) fixés à leurs dendrites par des processus d’opsonisation. Ce que ces cellules captent, ce sont des molécules d’immunoglobuline qui se sont elles-mêmes liées à un peptide antigénique. Elles possèdent des récepteurs du complément et du fragment Fc des Ig, ce qui permet à ces cellules de présenter, dans ce centre germinatif, tous ces antigènes étrangers arrivés dans le nœud lymphatique. Elles ne fonctionnent pas comme des cellules dendritiques ordinaires, car ce ne sont pas des cellules présentatrices d’antigène : elles agissent comme un présentoir d’antigènes.
Dans le centre germinatif se produisent des phénomènes très importants pour comprendre comment se forme la réponse immunitaire humorale.
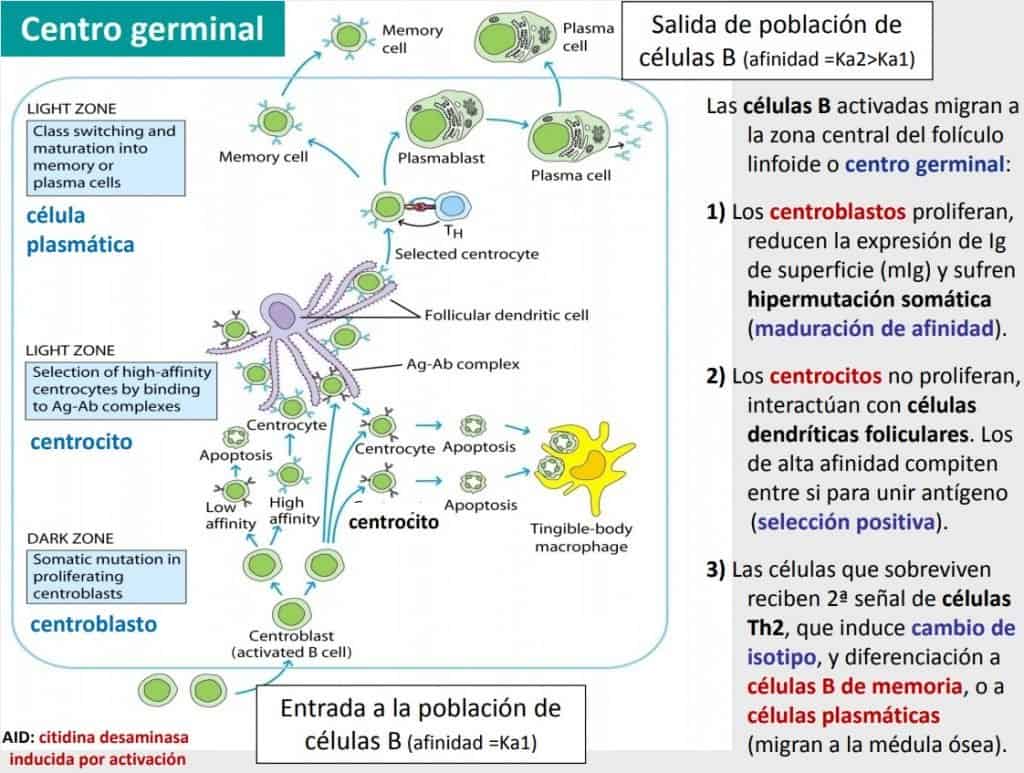
Les lymphocytes B qui se sont activés migrent vers la zone centrale du follicule lymphoïde ou centre germinatif (ils expriment des récepteurs BCR à la membrane et des Ig). Ils s’organisent autour d’un centre germinatif à différents stades de différenciation.
- Les lymphocytes B qui viennent d’interagir avec un antigène ont une affinité pour s’y fixer, mais elle n’est pas suffisante (faible affinité) : ce sont les centroblastes (cellules en division situées dans la « zone sombre »). Les centroblastes prolifèrent et réduisent l’expression d’Ig à leur membrane.
- Les centroblastes subissent un processus appelé hypermutation somatique (maturation de l’affinité) (uniquement dans les nœuds lymphatiques !) : les enzymes cytosine désaminases induites par l’activation induisent une série de mutations qui touchent les parties hypervariables de la molécule d’immunoglobuline. Elles convertissent une cytosine en uracile et la région variable est remaniée. Les mutations peuvent être productives ou non, mais lorsqu’elles sont productives, elles améliorent l’affinité.
- Seuls les centroblastes ayant subi une hypermutation somatique productive survivent. Ces centroblastes se différencient en centrocytes, qui possèdent une Ig plus affine pour l’antigène spécifique. Les centrocytes passent dans la zone claire, zone où a lieu la sélection de haute affinité. Les centrocytes ne prolifèrent pas, mais interagissent avec les complexes antigène-anticorps des cellules dendritiques folliculaires. C’est le processus de sélection positive, dans lequel seuls survivent les lymphocytes qui ont l’affinité maximale.
- Les cellules qui survivent à la sélection positive reçoivent le deuxième signal des cellules Tfh pour la commutation isotypique et la différenciation en cellules B mémoire ou en plasmocytes (qui migrent vers la moelle osseuse). Ce signal provient de cytokines libérées par le lymphocyte T, qui détermine le type d’Ig qui sera synthétisé.
- Plasmocyte producteur d’immunoglobulines : il n’exprime pas de molécules d’immunoglobuline à sa membrane. Il est déjà activé et n’a besoin ni de se diviser ni de processus d’hypermutation somatique. Les plasmocytes se dirigent vers la moelle osseuse. Ce sont des cellules dotées d’un RER développé, productrices d’anticorps. Ils s’activent en fonction des cellules dont on a besoin.
- Cellules mémoire : elles expriment bien des molécules d’immunoglobuline à leur membrane, c’est-à-dire qu’elles reconnaissent bien l’Ag. Elles ne se diviseront pas. Ces cellules vont recirculer de nouveau et, dans de nombreux cas, se cantonner dans certains sites. Elles sont responsables des réponses secondaires.
Au final, nous avons deux types de cellules dont l’affinité est bien supérieure à celle qu’elles avaient au départ.