Voici le programme expliqué dans la vidéo précédente. Si vous avez la moindre question, posez-la dans le système de commentaires en bas de la page.
Préférences de liaison des peptides aux molécules du CMH
Molécules du CMH de classe I
Les molécules du CMH de classe I possèdent une cavité de liaison des peptides formée d’un plancher de feuillets β antiparallèles sur lequel reposent deux hélices α (Figure 10.4-AB). Comme cette cavité est formée par les domaines α1 et α2 de la chaîne α du CMH de classe I, c’est-à-dire par une seule protéine, c’est un site très rigide pour la liaison des peptides.
Outre cette limitation, les peptides doivent répondre à d’autres caractéristiques pour pouvoir se lier au CMH de classe I :
- Longueur : la longueur des peptides qui se lient au CMH de classe I varie de 8 à 11 acides aminés, les peptides de 9 acides aminés étant préférentiels.
- Extrémités : les peptides se lient aux molécules du CMH de classe I par leurs extrémités amino-terminale et carboxy-terminale.
- Résidus d’ancrage critiques : les molécules du CMH de classe I comportent des sous-poches qui déterminent le type d’acides aminés qui peuvent s’y lier (aromatiques, hydrophobes, apolaires,…). Ainsi, ce sont les molécules du CMH de classe I qui déterminent les peptides qui peuvent s’y lier (Figure 10.4-CD, Figure 10.5, Figure 10.6-CDE).
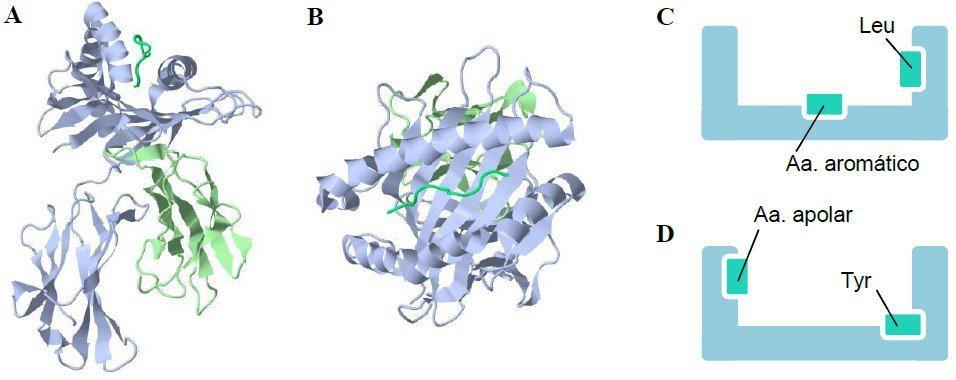
(A) (B) Schéma en rubans du CMH de classe I, vu de côté (A) et de dessus (B). Dans les deux cas, on observe un peptide antigénique dans la cavité de liaison des peptides. (C) (D) Schéma de la cavité de liaison des peptides des molécules du CMH de classe I, dans lequel sont représentés les résidus d’ancrage critiques des peptides antigéniques. (C) représente la molécule de la figure 10.5-A. (D) représente la molécule de la figure 10.5-B. (Avec l’aimable autorisation de David Pérez Torres, Université de Valladolid.)
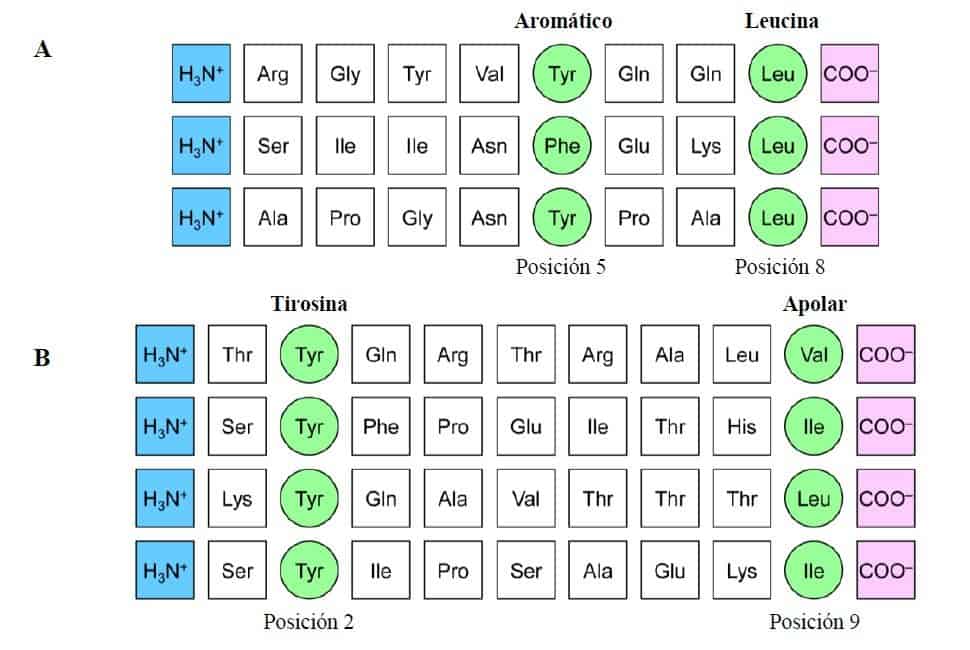
La figure représente les séquences d’acides aminés de peptides extraits de deux molécules du CMH de classe I différentes. Les résidus d’ancrage (représentés en vert) diffèrent selon les peptides qui se lient aux différents allèles des molécules du CMH de classe I, mais sont semblables pour tous les peptides qui s’ancrent à la même molécule. Les peptides se lient également aux extrémités amino-terminale (représentée en bleu) et carboxy-terminale (représentée en rose) des molécules du CMH de classe I. (A) Les peptides qui se lient à cette molécule du CMH de classe I le font par des résidus d’ancrage qui ne sont pas forcément identiques, mais qui sont apparentés : en position 5, ils sont toujours aromatiques et, en position 8, c’est toujours une leucine. (B) Dans cette autre molécule du CMH de classe I, le peptide lié doit contenir une tyrosine en position 2 et un acide aminé
apolaire en position 9. (Redessiné et modifié d’après Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Molécules du CMH de classe II
La cavité de liaison des peptides des molécules du CMH de classe II est composée de deux molécules distinctes unies de façon non covalente, les chaînes α et β, ce qui en fait une cavité plus flexible que celle des molécules du CMH de classe I (Figure 10.6-AB). Cela permet aux peptides qui s’y lient de mesurer jusqu’à plus de 20 acides aminés ; ils dépassent donc fréquemment de part et d’autre de la cavité. Normalement, le peptide se lie au CMH de classe II par 9 résidus d’acides aminés. Comme pour le CMH de classe I, il existe des résidus d’ancrage critiques (Figure 10.6-CD).
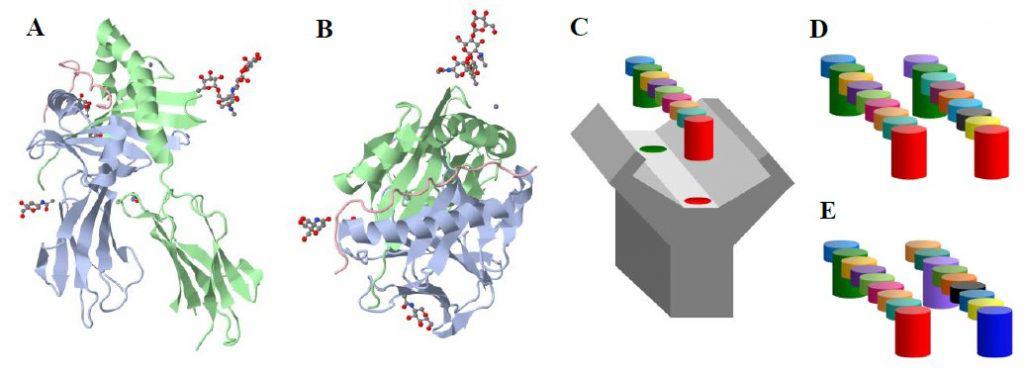
(A) (B) Schéma en rubans du CMH de classe II, vu de côté (A) et de dessus (B). Dans les deux cas, on observe un peptide antigénique dans la cavité de liaison des peptides, ainsi que la position d’ancrage d’autres molécules. (C) Représentation schématique de la liaison d’un nonapeptide à une molécule du CMH de classe I ou II. Notez que les résidus d’ancrage critiques (représentés en vert et en rouge) sont différents pour chaque molécule du CMH. (D) Représentation schématique d’un peptide ayant les mêmes résidus d’ancrage que celui de la Figure 10.6-C. (E) Représentation schématique d’un peptide ayant des résidus d’ancrage différents de ceux de la Figure 10.6-C, qui ne peut donc pas se lier à la molécule du CMH de cette figure.
(Avec l’aimable autorisation de David Pérez Torres, Université de Valladolid.)
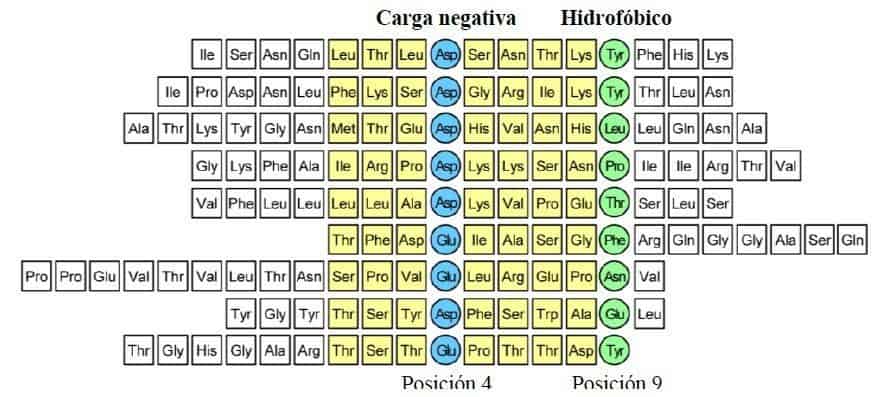
Séquence de peptides qui se lient à l’allèle HLA-DR3 du CMH de classe II humain. La longueur des peptides est variable et, par convention, le premier résidu d’ancrage est désigné par le numéro 1. La zone de contact entre le peptide et le CMH de classe II comprend 9 acides aminés. Tous les peptides partagent un acide aminé chargé négativement en position 4 (acide aspartique ou acide glutamique) (représenté en bleu) et tendent à présenter un résidu hydrophobe en position 9 (représenté en vert). (Redessiné et modifié d’après Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Superantigènes
Les antigènes conventionnels sont apprêtés par les cellules présentatrices d’antigène et présentés aux lymphocytes T par les molécules du CMH de classe II (Figure 10.8-A). Dans ce cas, les lymphocytes TH dotés de récepteurs capables de reconnaître l’antigène sont activés et commencent à produire des cytokines. Les lymphocytes TH activés ne stimulent que les lymphocytes B qui réagissent avec l’antigène contre lequel la réponse est en train de se mettre en place, de sorte que le système immunitaire ne produit des anticorps que contre l’antigène qui lui a été présenté par la molécule du CMH de classe II.
Les superantigènes (SAg), comme l’entérotoxine B du Staphylococcus (SEB), qui provoque des intoxications alimentaires chez l’être humain, ne peuvent pas être apprêtés par les cellules présentatrices d’antigène. À la place, ils se lient directement aux zones constantes des molécules du CMH de classe II des cellules présentatrices d’antigène et aux zones constantes du TCR des lymphocytes TH, formant un pont entre ces deux structures moléculaires.
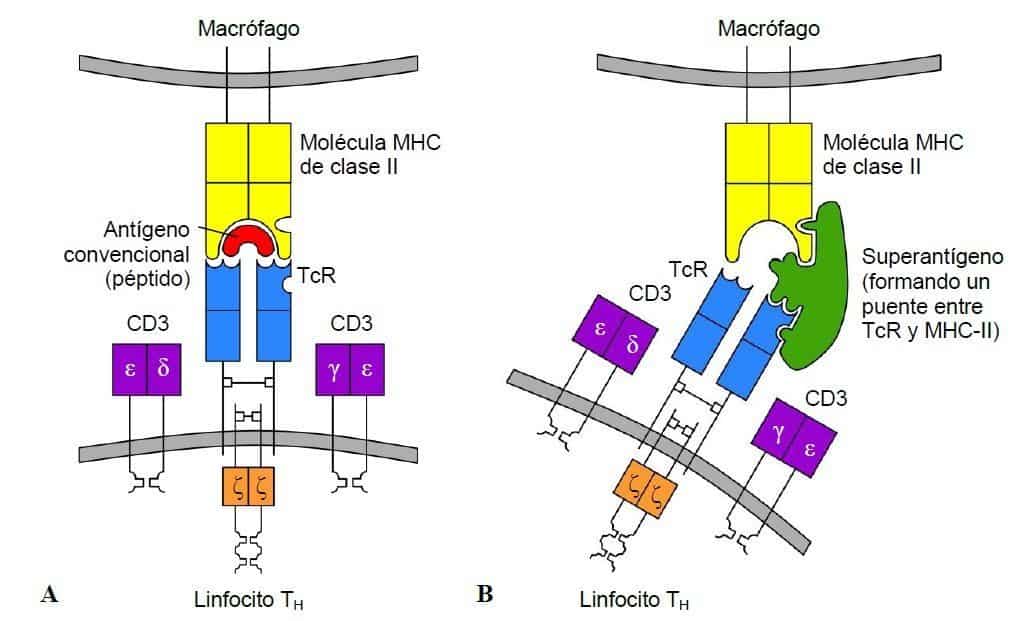
(A) Les antigènes conventionnels sont présentés aux lymphocytes T par les molécules du CMH de classe
II. La reconnaissance entre le CMH, le peptide et le TCR active le nombre nécessaire de lymphocytes TH spécifiques de l’antigène. (B) Les superantigènes sont capables de former des ponts entre les régions constantes des molécules du CMH de classe II et du TCR. Il n’y a pas de reconnaissance spécifique entre le superantigène, le CMH et le TCR, ce qui active un nombre excessif de lymphocytes TH et aboutit à une réponse dangereuse pour l’individu. (Redessiné et modifié d’après Regueiro JR et al. (2003) Inmunología. Biología y Patología del Sistema Inmune. (3ª Ed.) Editorial Médica Panamericana, Madrid.)
Les antigènes conventionnels présentés par les molécules du CMH de classe II ne se lient qu’aux lymphocytes TH qui les reconnaissent de façon spécifique, lesquels représentent un pourcentage très inférieur à 0,01 % du répertoire lymphocytaire T total de l’individu. En revanche, les superantigènes sont capables de se lier de façon non spécifique à une multitude de molécules du CMH de classe II et de TCR, ce qui entraîne l’activation d’un nombre excessif de lymphocytes TH qui, dans ce cas, représentent entre 2 % et 25 % du répertoire lymphocytaire T total de l’individu
L’activation des lymphocytes TH conduit à la production de cytokines, parmi lesquelles il faut souligner l’interleukine 2 (IL-2). Avec les antigènes conventionnels, la production de cytokines est un événement qui se déroule à l’échelle locale et permet l’élimination adéquate de l’antigène. Avec les superantigènes, la surproduction de cytokines par le nombre excessif de lymphocytes TH activés ne peut pas être contenue à l’échelle locale et gagne la circulation sanguine (Figure 10.9). L’entrée des cytokines dans la circulation provoque des effets indésirables chez l’individu, comme de la fièvre, des nausées, des vomissements et de la diarrhée. Dans les cas les plus graves, il peut survenir un choc, une défaillance multiviscérale, une défaillance circulatoire et même la mort.
La capacité des SAg de lymphocytes T à se lier de façon non spécifique à de grandes quantités de molécules du CMH de classe II leur permet de déclencher des processus mettant la vie de l’individu en danger, ce qui en fait un groupe de molécules totalement indésirable.
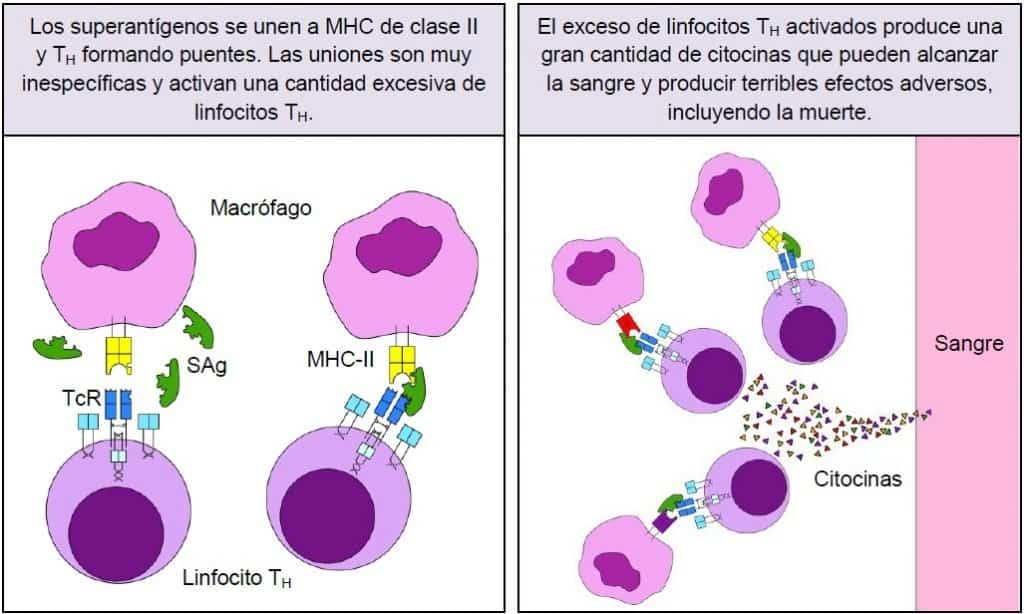
Les superantigènes se lient au CMH de classe II et au TCR en formant un pont entre ces deux structures. Le caractère non spécifique de la liaison permet aux superantigènes d’activer jusqu’à 25 % des lymphocytes TH de l’individu. La grande quantité de cytokines produite par les lymphocytes TH activés ne peut pas être contenue à l’échelle locale et pénètre dans la circulation sanguine, produisant des effets indésirables.
(Avec l’aimable autorisation de David Pérez Torres, Université de Valladolid.)
On a décrit récemment une nouvelle classe de superantigènes, qui active de façon spécifique les lymphocytes B et induit leur apoptose ; on les appelle pour cette raison superantigènes de lymphocytes B. Les superantigènes de lymphocytes B se lient aux régions FAB des immunoglobulines en dehors de leurs régions déterminant la complémentarité. La protéine A du Staphylococcus (SpA), le SAg le mieux étudié de cette classe, réagit avec les régions FAB de la plupart des immunoglobulines VH3+, qui sont exprimées sur 30 à 60 % des lymphocytes B périphériques humains. Parmi les autres SAg de lymphocytes B figurent la gp120 du virus de l’immunodéficience humaine (VIH), la protéine Fv (une sialoprotéine hépatique humaine) ou l’entérotoxine D du Staphylococcus (SED).
La capacité des SAg de lymphocytes B à se lier à de grandes quantités d’immunoglobuline sérique leur confère des propriétés biologiques potentiellement dangereuses.
Présentation des antigènes non protéiques : le système CD1
Il existe de nombreux mécanismes qui confèrent au système immunitaire la capacité de générer une grande variété de lymphocytes T, ce qui permet de reconnaître une large variété d’antigènes et d’organiser une réponse adaptative adéquate face à des agents pathogènes aux caractéristiques très différentes. La plus grande partie du répertoire lymphocytaire T reconnaît des peptides antigéniques présentés par les molécules hautement polymorphes du CMH. Cependant, il existe une population significative de cellules T qui ne réagissent pas aux antigènes présentés par le CMH. Cet ensemble de cellules T se lie plutôt aux molécules d’une famille présentatrice d’antigènes appelée CD1.
Les molécules CD1 sont des glycoprotéines de type CMH de classe I, ou MHC class I-like, spécialisées dans la liaison des lipides et des glycolipides en vue de leur présentation ultérieure aux cellules T. Il existe cinq gènes CD1 situés sur le chromosome 1, appelés CD1A, CD1B, CD1C, CD1D et CD1E. Malgré le polymorphisme allélique limité du système CD1, ces molécules sont capables de lier et de présenter un large éventail de structures lipidiques provenant d’agents pathogènes et même de tissus étrangers transplantés.
CD1 (Figure 10.10) est la première glycoprotéine exprimée par les thymocytes lors de la différenciation thymique. Sur le plan structural, c’est un hétérodimère formé d’une chaîne α, qui contient trois domaines (α1, α2 et α3), à laquelle s’associe de façon non covalente une protéine soluble appelée β2-microglobuline. Entre les domaines α1 et α2 se forme une cavité physique qui permet la liaison des lipides, appelée cavité de liaison antigénique (par analogie avec la cavité de liaison des peptides du système du CMH)
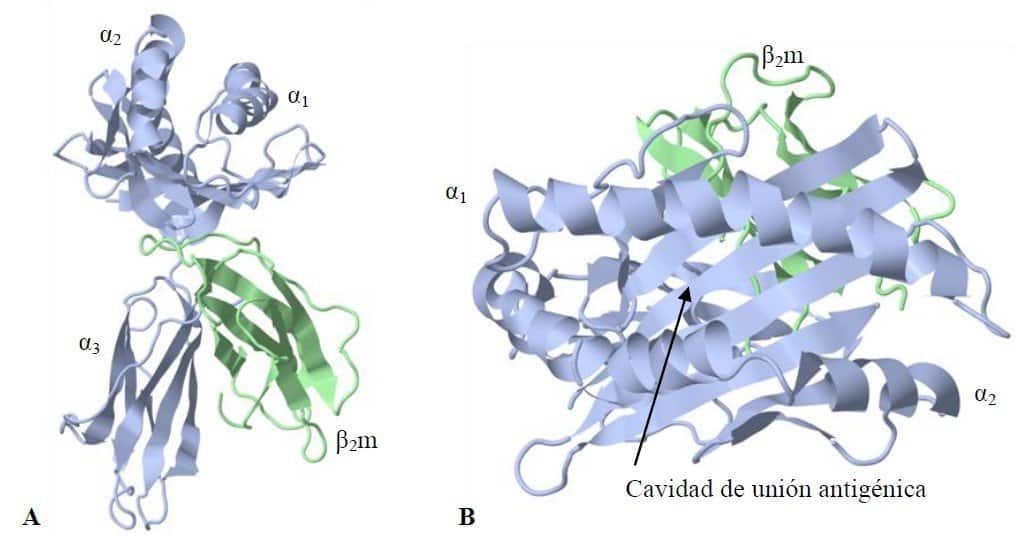
CD1 représente une troisième lignée de molécules présentatrices d’antigènes mais, à la différence des molécules du CMH, le type d’antigène présenté est de nature lipidique. La structure cristalline de CD1d1 de la souris, correspondant à la CD1d humaine, adopte une conformation très semblable à celle du CMH de classe I. (A) Notez les similitudes structurales entre le CMH de classe I et CD1. CD1 est formée d’une chaîne α à trois domaines et d’une molécule associée de β2-microglobuline. Comme dans les molécules du CMH de classe I, les domaines α1 et α2 constituent le site de liaison des antigènes. (B) On voit la cavité de liaison antigénique de CD1, nettement plus étroite que la cavité de liaison des peptides des molécules du CMH, mais bien plus profonde que celle-ci, avec deux poches de nature hydrophobe.
(RCSB PDB ID 1CD1)
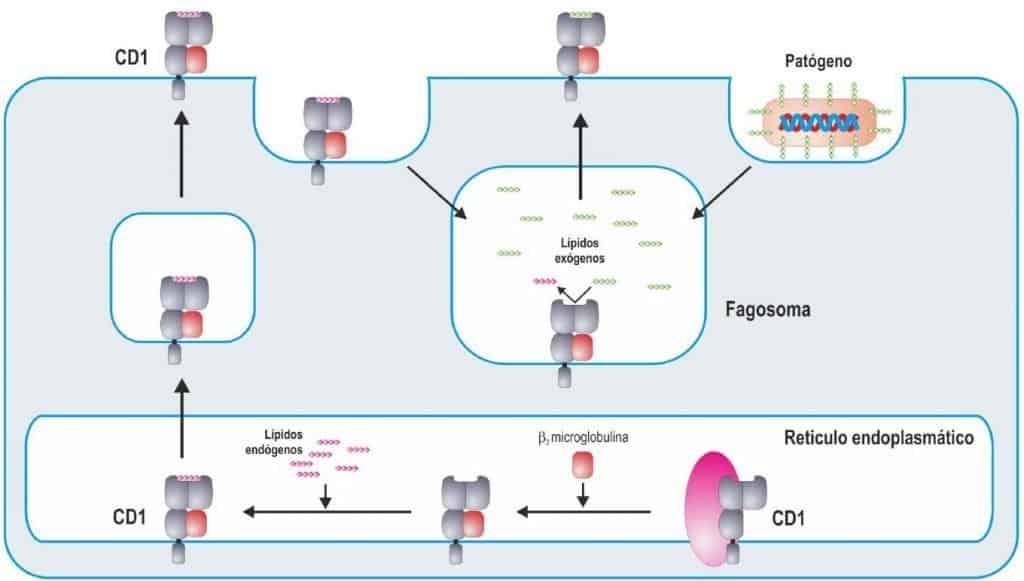
Les molécules CD1 sont synthétisées dans le réticulum endoplasmique rugueux, puis subissent un processus de maturation semblable à celui des molécules du CMH de classe I (Figure 10.11). Les chaînes α sont glycosylées par des glycosidases du réticulum endoplasmique et leur repliement est assuré par des chaperonnes comme la calnexine, la calréticuline et ERp57. L’association ultérieure de la β2-microglobuline stabilise le complexe et, dans la plupart des molécules de la famille, est une condition indispensable pour que CD1 soit exprimée à la surface cellulaire.
(A) Les antigènes conventionnels sont présentés aux lymphocytes T par les molécules du CMH de classe
II. La reconnaissance entre le CMH, le peptide et le TCR active le nombre nécessaire de lymphocytes TH spécifiques de l’antigène. (B) Les superantigènes sont capables de former des ponts entre les régions constantes des molécules du CMH de classe II et du TCR. Il n’y a pas de reconnaissance spécifique entre le superantigène, le CMH et le TCR, ce qui active un nombre excessif de lymphocytes TH et aboutit à une réponse dangereuse pour l’individu. (Reproduit de Regueiro J.R.,
López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Les molécules CD1 ne sont exprimées que sur les cellules présentatrices d’antigène professionnelles, en particulier les cellules dendritiques et les macrophages. Les molécules CD1 présentent les antigènes glycolipidiques aux lymphocytes T, mais pas aux lymphocytes conventionnels : aux lymphocytes doubles négatifs (CD4– CD8–). CD1d, qui est aussi exprimée dans l’épithélium intestinal, présente ses antigènes à un type particulier de lymphocyte appelé NKT, qui porte les marqueurs caractéristiques des lymphocytes NK mais constitue un type spécialisé de lymphocytes T, doté d’une fonction cytotoxique et de la capacité de synthétiser des cytokines.
On pense que le système CD1 est complémentaire du système HLA ; alors que les molécules HLA présentent un échantillon des peptides de l’intérieur de la cellule, les molécules CD1 présenteraient des lipides. Ainsi, une cellule saine ne présentera que des lipides du soi, mais une cellule infectée peut présenter des lipides microbiens, qui peuvent alors être reconnus par les lymphocytes
T. La diversité lipidique des êtres vivants est bien moindre que celle des protéines ou des peptides ; pour cette raison, les molécules CD1 ne sont pas polymorphes, car elles sont conçues pour accueillir un nombre limité et bien défini de lipides.