Voici le programme expliqué dans la vidéo précédente. Si vous avez la moindre question, posez-la dans le système de commentaires en bas de la page.
La présentation de l’antigène aux lymphocytes T : généralités
Pour que les antigènes puissent être reconnus par les TCR des lymphocytes T, deux phases consécutives sont nécessaires :
- Apprêtement de l’antigène : il consiste en la dégradation de l’antigène protéique en peptides par des mécanismes de digestion intracellulaire.
- Présentation de l’antigène apprêté : il s’agit de l’association de certains des peptides obtenus précédemment avec la cavité de liaison des peptides des molécules codées par des gènes du complexe majeur d’histocompatibilité (CMH).
L’origine des agents pathogènes peut être intracellulaire ou extracellulaire (Figure 10.1). Dans le premier cas, l’antigène est présenté par la voie cytosolique, à laquelle participent les lymphocytes TC et les molécules du CMH de classe I ; dans le second cas, il est présenté par la voie endocytaire, qui nécessite la phagocytose de l’antigène et la participation des lymphocytes TH et des molécules du CMH de classe II (Tableau 10.1).
La plupart des antigènes peuvent être présentés aux lymphocytes T par l’une ou l’autre de ces deux voies, mais certains échappent à ces voies, comme les antigènes lipidiques.
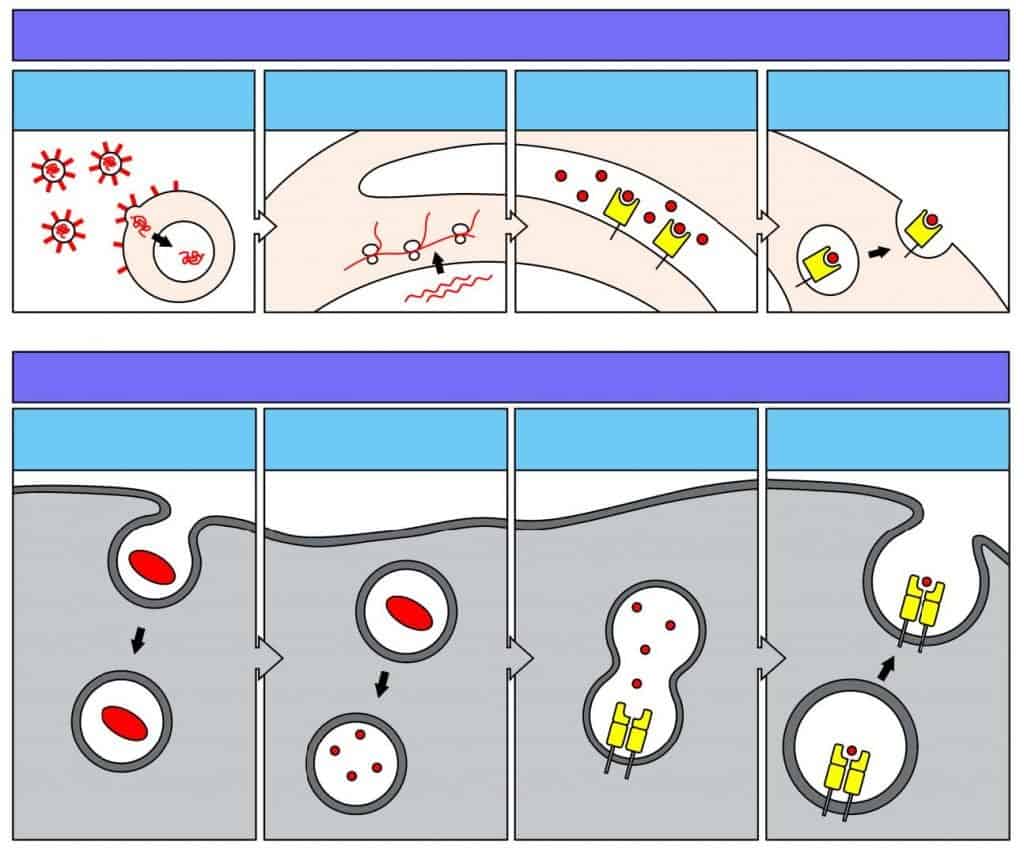
Selon leur origine, les antigènes peuvent être présentés par deux voies. Les antigènes intracellulaires, comme le matériel génétique d’un virus, sont présentés à la surface par les molécules du CMH de classe I via la voie cytosolique. Les antigènes extracellulaires, comme une bactérie ou ses débris, sont présentés à la surface par les molécules du CMH de classe II via la voie endocytaire. (Redessiné d’après Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland
Science, New York.)
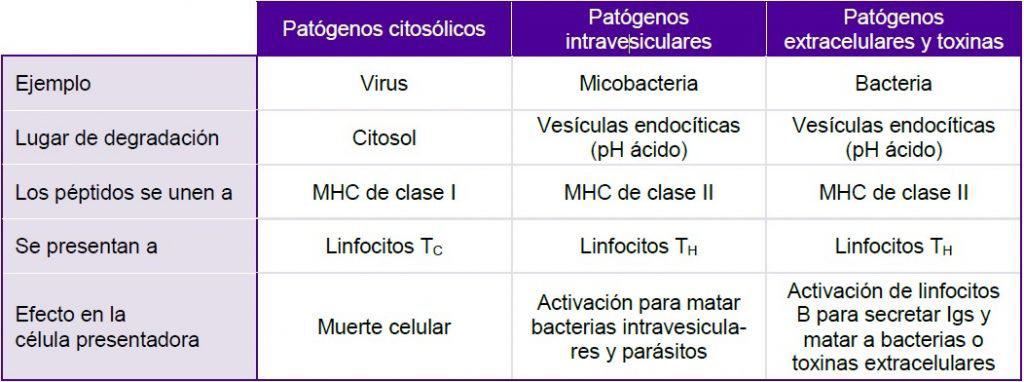
Le tableau résume les caractéristiques de l’apprêtement et de la présentation de différents agents pathogènes.
(Modifié d’après Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Voie des molécules du CMH de classe I
Les molécules du CMH de classe I sont formées d’une chaîne α à laquelle s’associe une protéine soluble appelée β2-microglobuline ; les deux sont synthétisées indépendamment dans le réticulum endoplasmique. La protéine du CMH de classe I est très instable pendant son repliement dans le réticulum endoplasmique, c’est pourquoi elle s’associe à des protéines chaperonnes.
Au début de son repliement, la chaîne α s’associe à une chaperonne appelée calnexine. La liaison ultérieure de la β2-microglobuline à la chaîne α nécessite le remplacement de la calnexine par la calréticuline. Ce complexe s’associe à la tapasine et se rapproche d’un hétérodimère formé de TAP-1 et de TAP-2. La fonction du complexe TAP est de transporter les peptides du cytosol vers la lumière du réticulum endoplasmique, avec consommation d’ATP.
Les protéines virales sont dégradées en peptides de longueurs et de séquences variées dans le cytosol par le protéasome, un complexe multi-enzymatique formé de quatre anneaux empilés, à l’intérieur desquels se trouvent des sous-unités douées d’une activité protéolytique, appelées LMP. Ces sous-unités, de même que TAP-1 et TAP-2, sont codées par des gènes situés dans la région de classe II du CMH.
Une fois les peptides dans la lumière du réticulum, ils s’insèrent au hasard dans la cavité de liaison des peptides des molécules du CMH de classe I jusqu’à trouver le site de liaison adéquat. Lorsque cela se produit, la molécule du CMH de classe I achève son repliement et est transportée vers l’appareil de Golgi, où elle subit des processus de glycosylation.
Après avoir subi les modifications nécessaires dans l’appareil de Golgi, le complexe peptide-CMH est libéré à la surface cellulaire par une vacuole d’exocytose, où il s’ancre en attendant d’être reconnu par le TCR d’un lymphocyte TC (Figure 10.2).
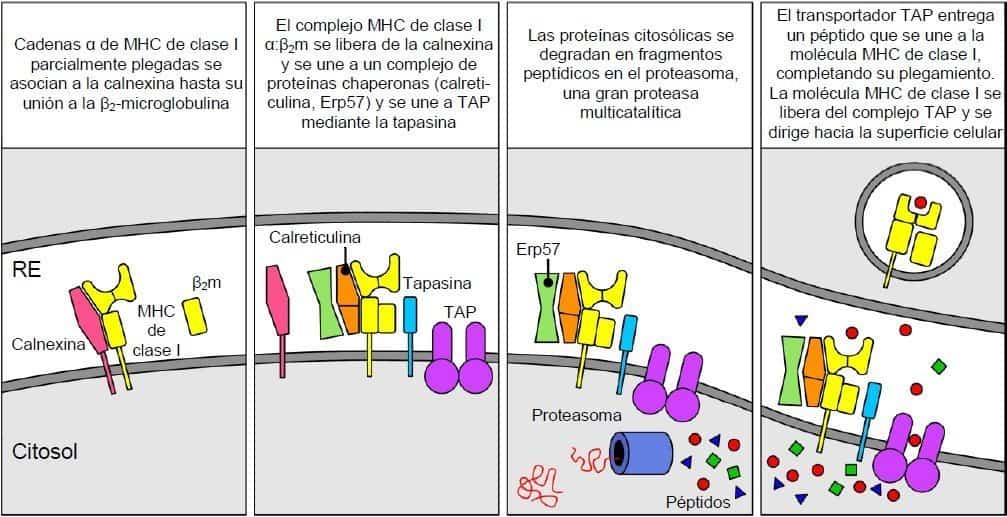
Notez que les molécules du CMH de classe I ne quittent pas le réticulum endoplasmique (RE) tant qu’elles n’ont pas lié un peptide. Une fois le peptide lié à la molécule du CMH, le complexe peptide-CMH quitte le réticulum et est envoyé à l’appareil de Golgi, où il pourra subir des modifications. Ensuite, le complexe sera acheminé vers la surface cellulaire. (Redessiné et modifié d’après Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)