Voici le programme expliqué dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de la page.
Nomenclature du système HLA
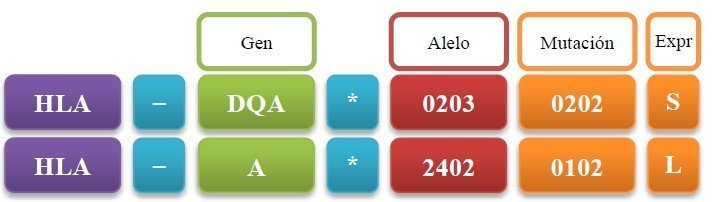
La nomenclature des antigènes du système HLA est standardisée. Le nom commence par le sigle HLA suivi d’un trait d’union. On indique ensuite le gène dont il est question par la lettre qui l’identifie comme gène de classe I (A, B, C, D, E, F, G) ou de classe II (DP, DQ, DR). S’il s’agit d’un gène de classe II, il faut préciser s’il code la chaîne alpha (A) ou la chaîne bêta (B). Lorsqu’il existe plusieurs gènes pour cette chaîne, comme dans le cas de DRB, il faut préciser le numéro du gène. Une fois le gène précisé, on écrit un astérisque puis l’allèle de ce gène présent sur le chromosome de l’individu (Figure 9.8).
L’allèle est localisé avec précision par un système d’au moins quatre chiffres. Les premier et deuxième chiffres indiquent le groupe allélique. Les troisième et quatrième chiffres indiquent l’allèle précis au sein de ce groupe. Le système peut être complété par des chiffres qui apportent plus d’informations : les cinquième et sixième chiffres servent à indiquer des mutations dans les exons, les septième et huitième chiffres des mutations dans les introns. Enfin, on peut ajouter une lettre majuscule (L, N, Q, S) qui précise le niveau d’expression de la protéine.
Par exemple, le gène HLA-DRB3*0202 désigne le gène qui code la chaîne bêta de type trois d’un antigène HLA de classe II de type DR ; plus précisément, le deuxième allèle du deuxième groupe de ce gène.
Mécanismes de variabilité
Une série de mécanismes de variabilité rendent extrêmement difficile de trouver deux individus dans la population dont les cellules expriment la même collection d’antigènes HLA. Ces mécanismes sont la polygénie, la codominance, le polymorphisme et la complémentation.
Tous ces mécanismes font de la combinaison d’antigènes de chaque individu une marque d’identification très fiable, les probabilités d’erreur étant de l’ordre de 1/106. Nos cellules présentent autant d’antigènes HLA, et aussi variés, à leur surface afin de pouvoir présenter le plus grand nombre possible de peptides antigéniques différents et d’être assurés de disposer de lymphocytes T dotés d’un TCR adéquat. Il faut en outre tenir compte du fait que tous ces gènes sont très proches, dans une région de 1 cM du bras court du chromosome 6. Le taux de recombinaison est donc très faible et, par conséquent, ces gènes tendent à être transmis en bloc, formant ce que l’on appelle l’haplotype HLA. Cela, joint à la grande variabilité déjà expliquée, rend l’analyse des antigènes HLA très utile pour diverses épreuves d’identification, comme les tests de paternité.
Polygénie
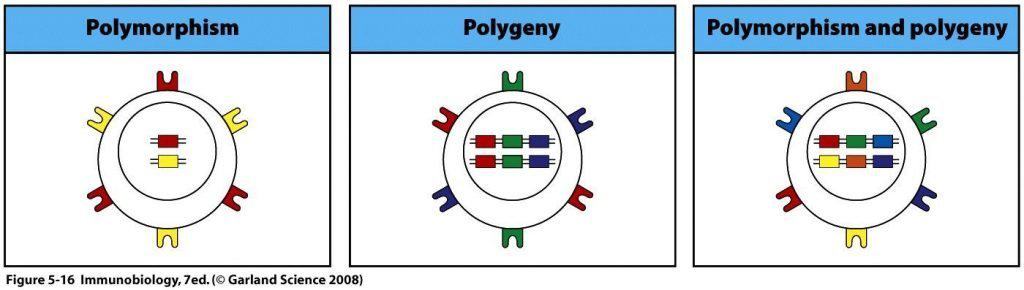
La polygénie, ou présence de plusieurs gènes différents liés aux mêmes fonctions, garantit que chaque individu produit une grande variété de molécules HLA. Par exemple, les molécules HLA-A, B et C ont la même fonction et sont pourtant toutes synthétisées dans chacune de nos cellules nucléées (Figure 9.9).
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Codominance
Les gènes des deux chromosomes sont exprimés. C’est pourquoi, à la membrane des cellules, on trouve aussi bien les antigènes HLA hérités de la mère que ceux hérités du père (Figure 9.10). La polygénie et la codominance ont pour conséquence que toute cellule nucléée de l’organisme peut présenter jusqu’à six antigènes HLA de classe I différents : A, B et C hérités du père ; et A, B et C hérités de la mère.
Polymorphisme
Les gènes qui codent les antigènes HLA présentent un grand nombre d’allèles distincts. Autrement dit, il existe de nombreuses formes différentes de chacun des gènes (de nombreuses formes de A, de nombreuses formes de B et de nombreuses formes de C pour les HLA de classe I) et chacun d’entre nous exprime deux de ces formes dans ses cellules, l’une d’origine maternelle et l’autre d’origine paternelle.
On peut classer les gènes du système HLA selon leur polymorphisme (Figure 9.11) :
- HLA de classe I : HLA-B > HLA-A > HLA-C.
- HLA de classe II : HLA-DRB > HLA-DP > HLA-DQ. Parmi les HLA-DRB, le plus polymorphe est HLA-DRB1.
Cette variabilité n’est pas répartie de façon homogène sur l’ensemble du gène, mais se concentre dans des régions hypervariables, qui coïncident avec les acides aminés de la cavité de liaison des peptides (Figure 9
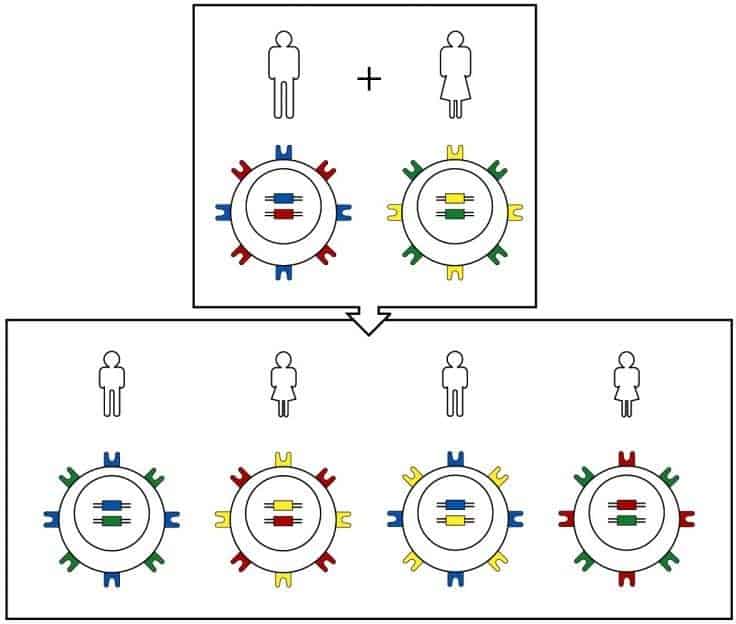
Le CMH est si polymorphe qu’il est probable que presque tous les individus soient hétérozygotes pour chaque locus. Chez un individu, les allèles des deux haplotypes du CMH sont exprimés, et cette expression se traduit par la présence de leurs produits à la surface cellulaire. (Reproduit de Murphy
K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
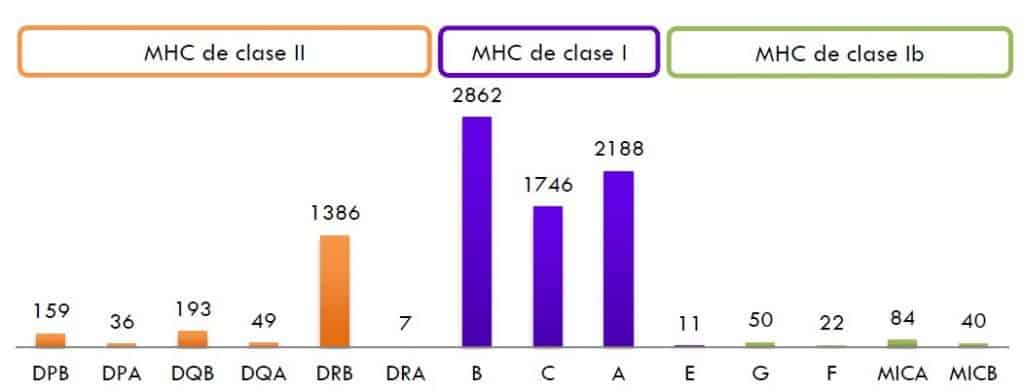
Le graphique montre le nombre d’allèles connus pour chaque locus HLA. Les loci les plus polymorphes sont HLA-B et HLA-DRB. Les chiffres indiqués sont purement indicatifs, car la découverte de nouveaux allèles est constante. La hauteur des barres représente le nombre d’allèles du système HLA attribués par le WHO Nomenclature Committee for Factors of the HLA System (mis à jour en janvier 2013).
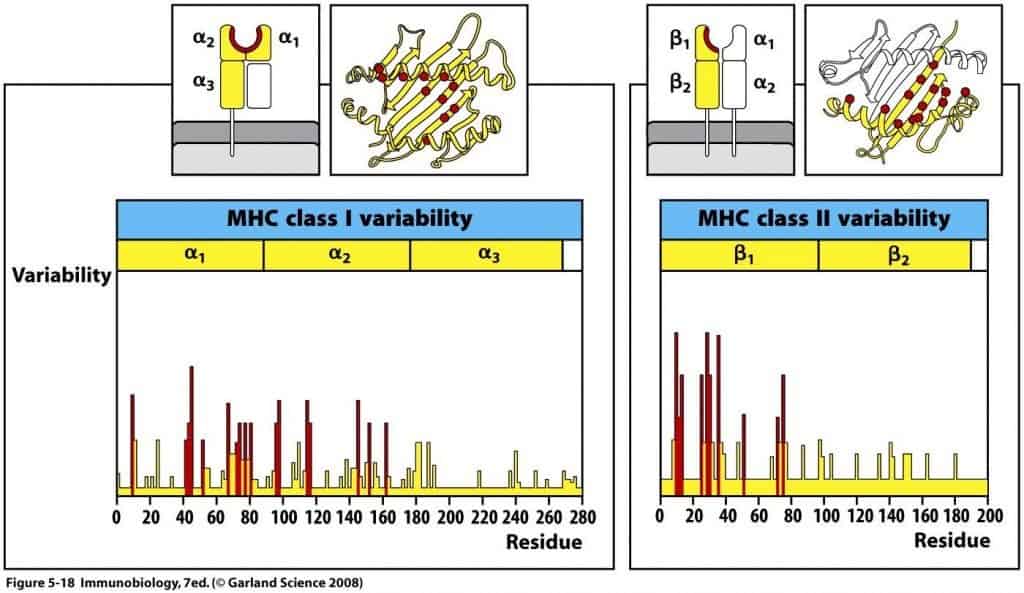
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Complémentation
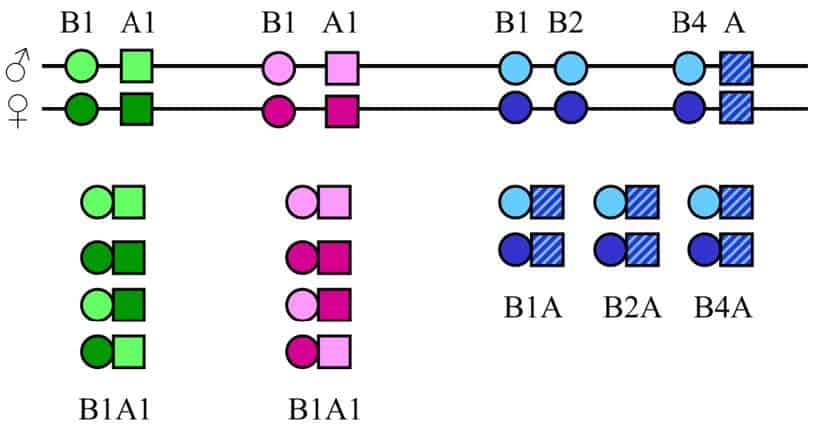
Il existe un dernier mécanisme de variabilité, présent uniquement dans les antigènes HLA de classe II, appelé complémentation (Figure 9.13). Les molécules HLA de classe II se composent d’une chaîne lourde bêta et d’une chaîne lourde alpha, synthétisées de façon indépendante dans le réticulum endoplasmique. L’association d’une chaîne alpha et d’une chaîne bêta se fait donc au hasard, avec deux résultats possibles :
- Complémentation en cis : une chaîne alpha maternelle s’associe à une chaîne bêta maternelle ou une chaîne alpha paternelle s’associe à une chaîne bêta maternelle.
- Complémentation en trans : une chaîne alpha maternelle s’associe à une chaîne bêta paternelle ou une chaîne alpha paternelle s’associe à une chaîne bêta maternelle.
Physiologie du système HLA
La fonction physiologique des molécules HLA de classe I et HLA de classe II consiste à présenter des peptides antigéniques, une fois l’antigène apprêté, respectivement aux lymphocytes Tc et Th, étant donné que les TCR, contrairement aux BCR, ne sont pas capables de reconnaître l’antigène à l’état natif.
Les molécules HLA ont aussi une grande importance dans d’autres situations non physiologiques, comme la transplantation d’organes, l’identification des individus en médecine légale, et elles confèrent également une susceptibilité à certaines maladies auto-immunes. Les molécules HLA ne sont exprimées à la surface cellulaire que lorsqu’elles sont liées au peptide, et on les appelle alors complexe antigénique.
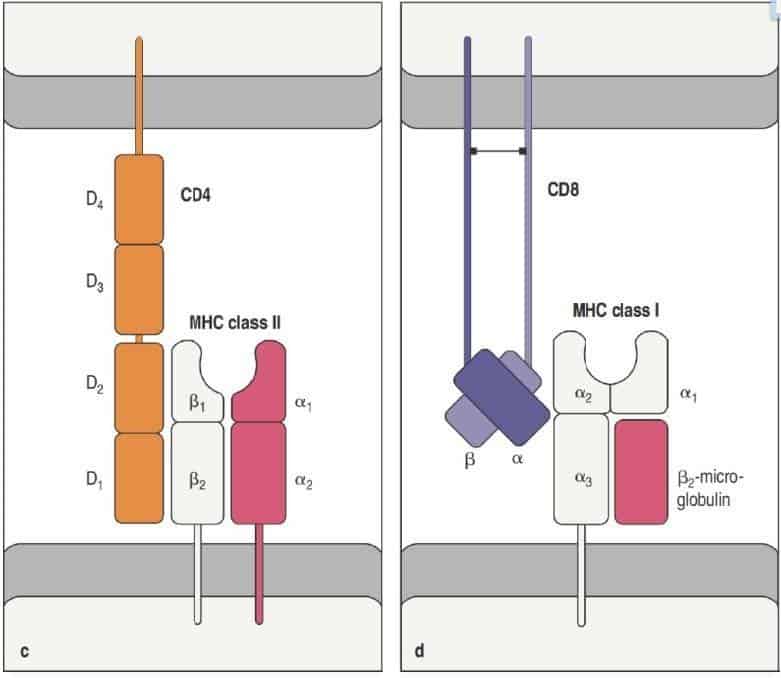
Lorsqu’une molécule de HLA de classe I de la surface d’une cellule nucléée quelconque se lie à son TCR approprié, sa cavité de liaison des peptides contient déjà le peptide de l’antigène. Le corécepteur du lymphocyte Tc, CD8, s’associe au domaine α3 de la molécule HLA de classe I (Figure 9.14).
Lorsqu’une molécule de HLA de classe II est exprimée à la surface d’une cellule présentatrice d’antigène, le peptide étant déjà lié à sa cavité de liaison des peptides, et se lie au TCR du lymphocyte Th, le corécepteur, CD4, se liera à son ligand naturel, qui est le domaine β2 de la molécule HLA de classe II (Figure 9.14).
(Reproduit de Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
Les corécepteurs CD4 et CD8 sont des glycoprotéines qui facilitent la liaison intercellulaire et renforcent en outre la transmission des signaux vers l’intérieur de la cellule. Une fois le complexe antigénique reconnu par le TCR, les lymphocytes T commencent à produire des cytokines, qui agissent comme des signaux chimiques. Les cytokines attirent davantage de lymphocytes T et induisent la prolifération des lymphocytes B afin qu’ils produisent des anticorps. Les anticorps sont libérés dans la circulation sanguine pour rencontrer et lier davantage d’antigènes, de sorte que les pathogènes ne puissent pas se reproduire et provoquer des maladies.
(Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
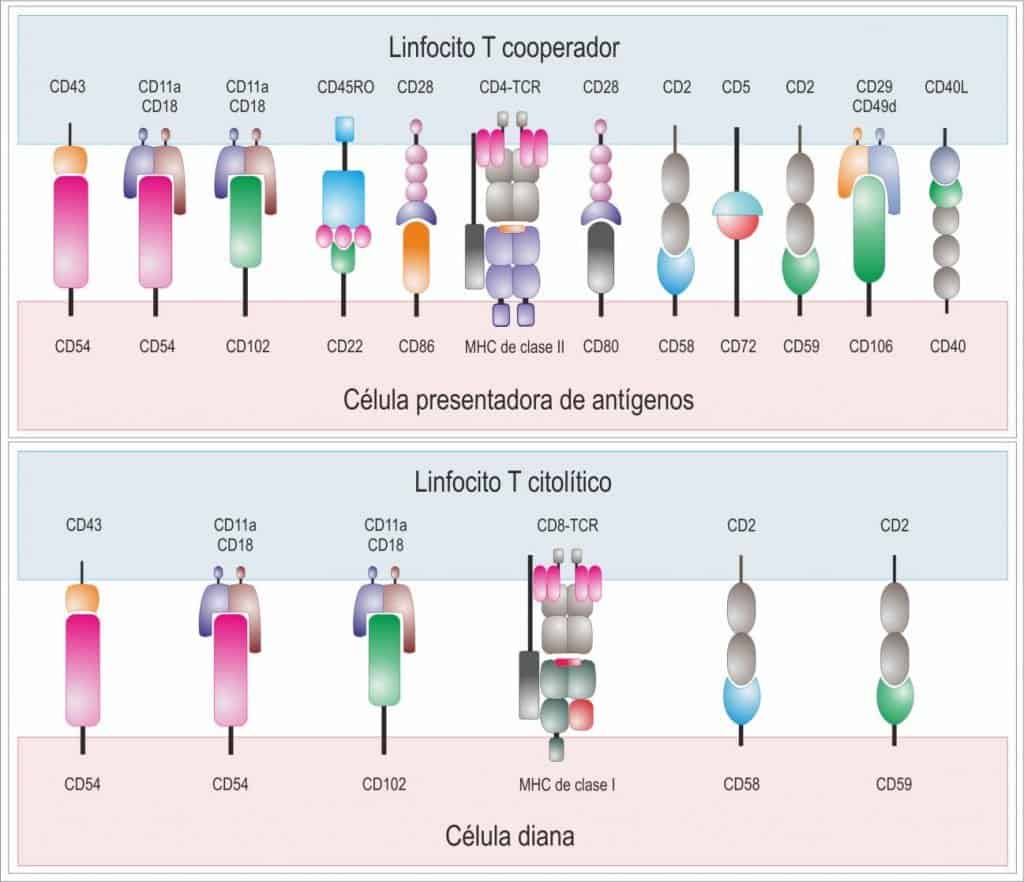
Dans de nombreux cas, la liaison du complexe antigénique au TCR ne suffit pas pour produire une réponse efficace, et la participation d’une série de molécules accessoires est nécessaire, dont la fonction est de contribuer au développement d’une réponse immunitaire efficace en facilitant l’interaction entre les différentes cellules. Il se forme ainsi une synapse immunologique entre les lymphocytes T et la cellule qui présente l’antigène, plus intense entre les lymphocytes T auxiliaires et les cellules présentatrices d’antigène qu’entre les lymphocytes T cytotoxiques et leurs cellules cibles (Figure 9.15).
Des molécules très variées participent à la synapse immunologique, parmi lesquelles on peut citer :
- Les récepteurs spécifiques de l’antigène : BCR et TCR.
- Les corécepteurs CD4 et CD8.
- Les molécules présentatrices d’antigène : HLA de classe I et de classe II.
- Les récepteurs de molécules adaptatrices (opsonines) : récepteurs des protéines du complément (CD21) et récepteurs du fragment Fc des immunoglobulines (CD16).
- Les récepteurs des cytokines : pour l’IL-1 (IL-1R ou CD121a) et pour l’IL-2 (CD25).
- Les molécules de costimulation intervenant dans l’activation et la différenciation : CD28 (lymphocytes T) et CD80 ou CD86 (sur la CPA), CD19, CD20 (lymphocytes B), CD2 (lymphocytes T et NK), CD45 (marqueur pan-leucocytaire) ; CD40 (sur la CPA ou le lymphocyte B) et CD40L (sur le lymphocyte T).
- Les molécules induites après l’activation : CD25, CD38 et CD69.
- Les molécules d’adhésion cellulaire : CD2, CD11 (a, b, c), CD18.
- Les marqueurs de l’état de différenciation cellulaire : CD45R0 (mémoire) ou CD45RA (naïfs).