Voici le programme expliqué dans la vidéo précédente. Si vous avez des questions, posez-les dans le système de commentaires en bas de page.
Types de récepteurs et de ligands
Il existe fondamentalement deux types de récepteurs phagocytaires (Figure 4.4) :
- Les récepteurs endocytaires, dont la fonction est de médier la phagocytose.
- Les récepteurs de signalisation, inducteurs de réponses inflammatoires contre le pathogène.
La reconnaissance des antigènes par les récepteurs endocytaires, premier grand groupe de récepteurs phagocytaires, conduit à l’internalisation et à la fusion avec les lysosomes, où les pathogènes seront détruits (Figure 4.4). En outre, dans les cellules dendritiques et le système monocytes-macrophages, il est également possible de présenter l’antigène par l’intermédiaire des protéines HLA de classe II (Figure 4.5), puisqu’il s’agit de cellules présentatrices d’antigène (CPA).
Parmi les récepteurs endocytaires, on peut souligner :
Les récepteurs de reconnaissance des motifs moléculaires :
- MR reconnaît le mannose, un glucide très fréquent dans les glycoprotéines et les glycolipides bactériens et viraux.
- LPSR (CD14), associé à un TLR, reconnaît les lipopolysaccharides des bactéries à Gram négatif.
- SR reconnaît les débris de bactéries à Gram positif, à Gram négatif ou de cellules apoptotiques.
- MBL (lectine liant le mannose) se fixe aux mannoses et aux fucoses des parois bactériennes et déclenche la voie des lectines d’activation du complément.
- Récepteurs des molécules adaptatrices (opsonines) : les récepteurs de reconnaissance des motifs moléculaires sont inutiles lorsque le pathogène est dépourvu de polysaccharides dans sa capsule. Il ne peut alors être phagocyté que s’il est opsonisé par des molécules adaptatrices (immunoglobulines et fragments du complément). Les phagocytes peuvent reconnaître les pathogènes opsonisés grâce aux opsonines suivantes :
- Immunoglobuline G, reconnue par les récepteurs FcγRI, RII et RIII des phagocytes.
- Fragment C3b du complément : reconnu par les récepteurs CR1, CR3 et CR4 des cellules phagocytaires.
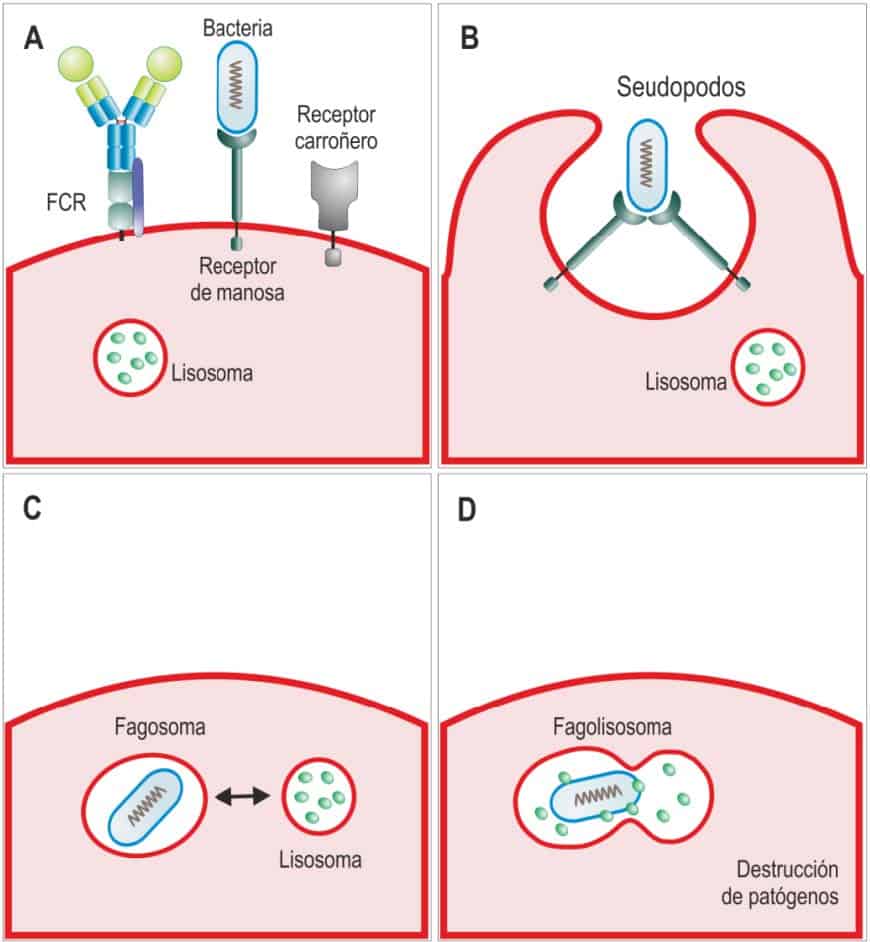
La reconnaissance des micro-organismes comme étrangers par les récepteurs des phagocytes conduit à leur internalisation dans des phagosomes qui, en fusionnant avec les lysosomes, forment les phagolysosomes, à l’intérieur desquels les micro-organismes sont détruits. (Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª
Ed.) Editorial Médica Panamericana, Madrid.)
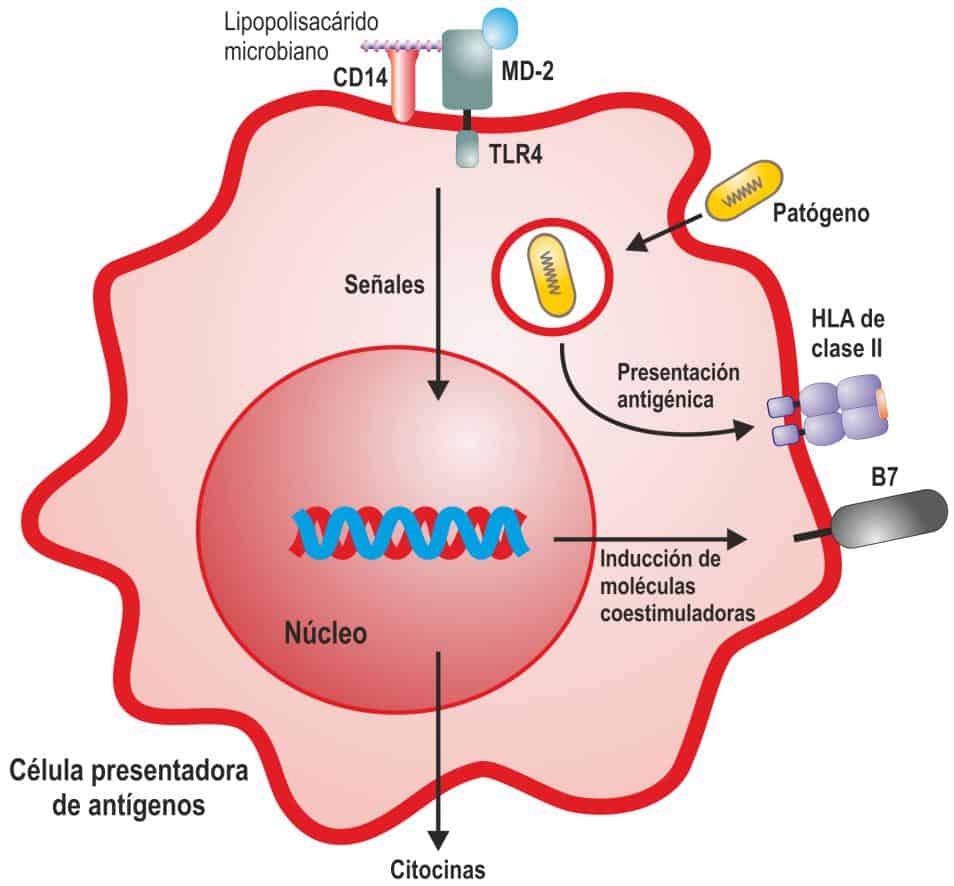
Les macrophages participent à l’inflammation et à l’activation des lymphocytes T. La reconnaissance des pathogènes par les récepteurs de signalisation (de type Toll ou TLR) transmet vers le noyau cellulaire une série de signaux qui entraînent la synthèse et la sécrétion de cytokines participant au déclenchement de la réponse inflammatoire et de la réponse immunitaire adaptative. En outre, les pathogènes phagocytés sont traités et présentés sous forme de peptides aux lymphocytes T par les molécules du CMH ou HLA. Pour s’activer, les lymphocytes T doivent reconnaître le peptide étranger et recevoir un second signal provenant d’une série de molécules de costimulation exprimées à la surface des phagocytes lorsque les récepteurs de signalisation reconnaissent les micro-organismes. (Reproduit de Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología.
Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Les récepteurs de signalisation, qui constituent le second grand groupe de récepteurs phagocytaires, se répartissent entre la surface, les endosomes ou même le cytoplasme cellulaire, où ils sont libres. Ils reconnaissent des motifs moléculaires associés aux pathogènes (PAMP) ; il existe plusieurs familles de ce type de récepteurs, l’une des plus importantes étant celle des récepteurs de type Toll (TLR).
Toll-Like Receptors (TLR)
Les Toll-Like Receptors, ou récepteurs de type Toll, possèdent un domaine extracellulaire contenant de nombreuses répétitions riches en leucine (LRR), un domaine transmembranaire et un domaine intérieur ou domaine TIR (Figure 4.6). Le domaine TIR interagit avec d’autres membres de la voie de transduction du signal des TLR, comme MyD88 (Figure 4.7).
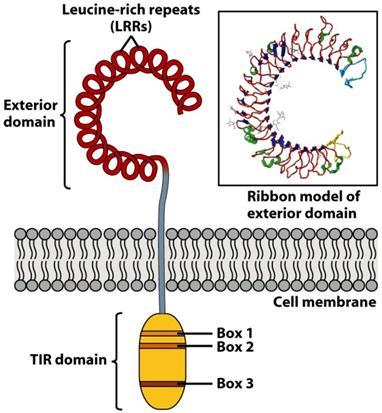
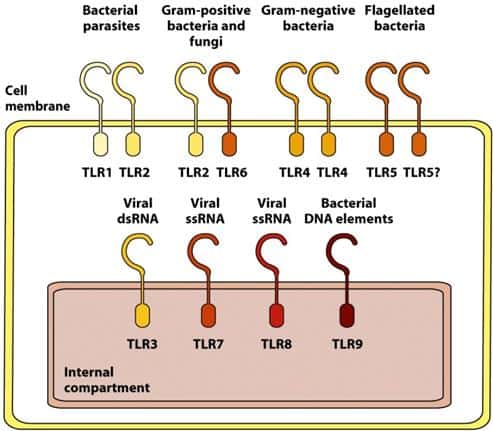
(Reproduit de Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
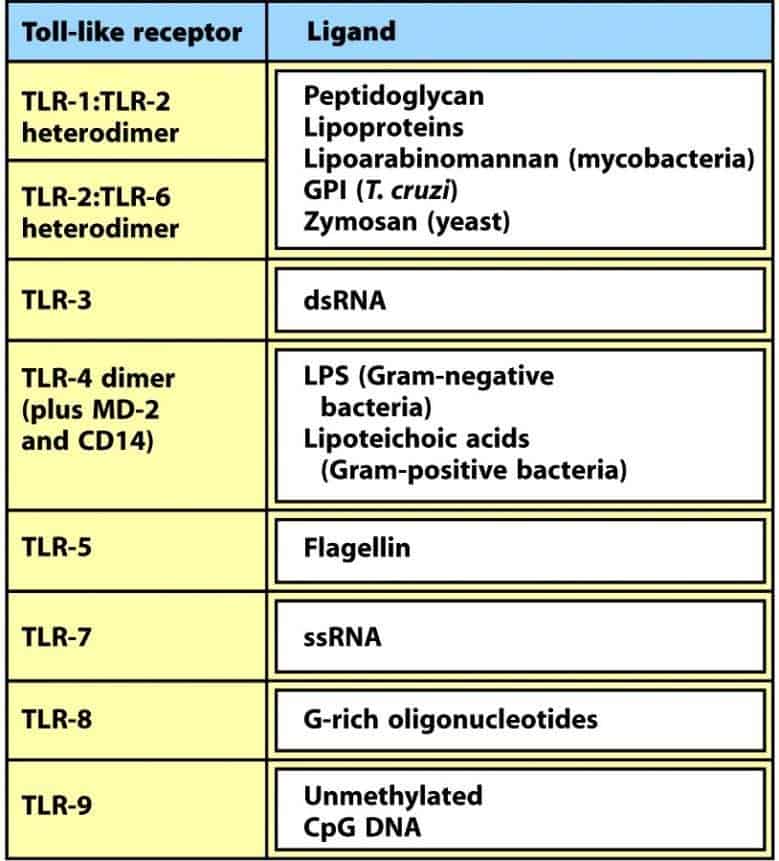
On connaît 10 TLR chez l’être humain, chacun capable de reconnaître un ensemble différent de motifs moléculaires de pathogènes (PAMP) qui n’existent normalement pas chez les vertébrés. Comme il n’y a que 10 protéines différentes, leur spécificité est limitée, mais elles peuvent reconnaître des molécules de pathogènes très divers.
Certains TLR sont exprimés à la surface cellulaire (ceux qui reconnaissent les protéines, les peptidoglycanes, les lipoprotéines ou le LPS), tandis que d’autres sont exprimés dans la membrane des endosomes (Figure 4.7), où ils détectent des fragments de pathogènes préalablement endocytés.
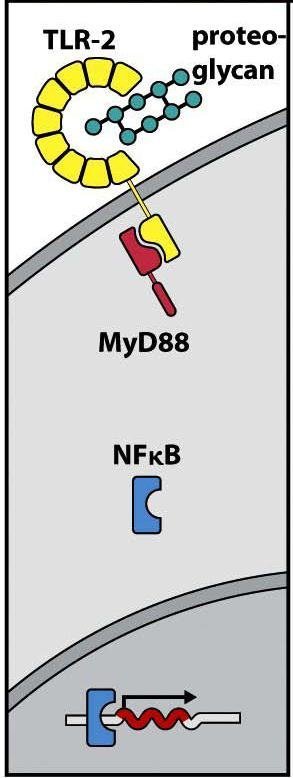
Reconnaissance des protéoglycanes par les TLR 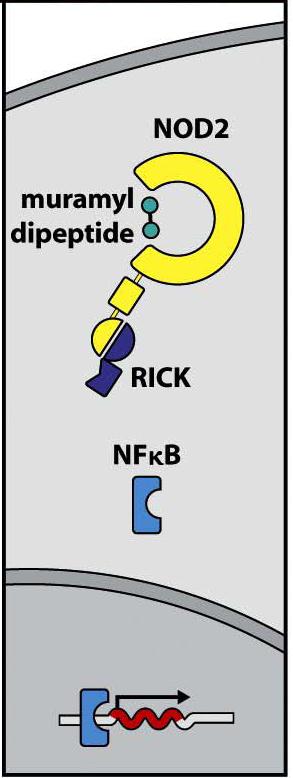
Reconnaissance des protéoglycanes par les NOR
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Les TLR endosomaux reconnaissent essentiellement différentes formes d’acides nucléiques des micro-organismes. Ils peuvent agir sous forme d’hétérodimères, d’homodimères, de monomères ou même, dans le cas de TLR-4, par association aux protéines CD14 et MD-2 pour reconnaître le LPS lié à une protéine de liaison du LPS (phase aiguë d’une infection) (Figure 4.8).
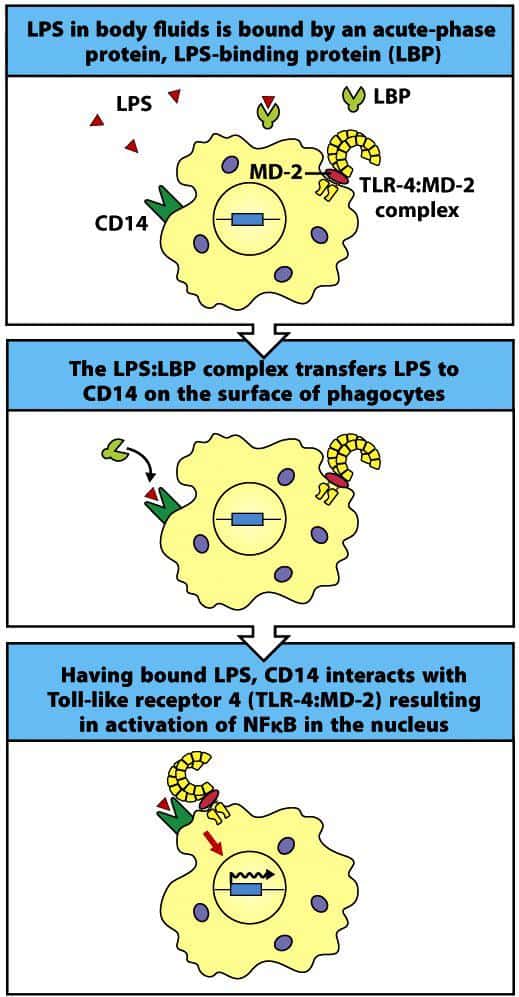
(Reproduit de Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Une autre famille de récepteurs semblables aux TLR, mais de distribution cytosolique, est celle des récepteurs NOD (Nucleotide-binding Oligomerization Domain), qui se lient à des produits bactériens libres dans le cytoplasme (Figure 4.7). La signalisation induite par les TLR et les NOD comporte certains médiateurs différents et d’autres communs. Toutefois, dans les deux cas, le facteur de transcription nucléaire NFκB est activé, se transloque dans le noyau et induit la synthèse de cytokines et d’autres protéines du processus inflammatoire (Figure 4.9).
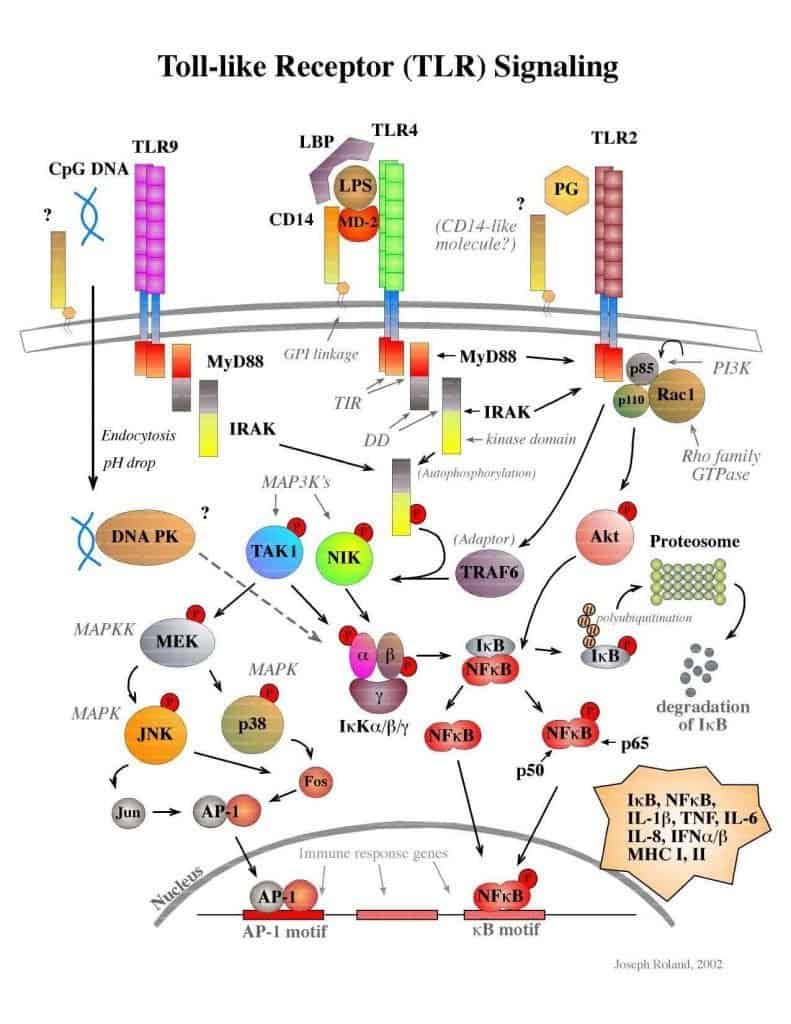
(Avec l’aimable autorisation de Joseph Roland.)