Hier findest du den Stoff, der im vorherigen Video erklärt wurde. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Rezeptortypen und Liganden
Es gibt im Wesentlichen zwei Arten von phagozytischen Rezeptoren (Abbildung 4.4):
- Endozytische Rezeptoren, deren Funktion darin besteht, die Phagozytose zu vermitteln.
- Signalrezeptoren, die Entzündungsreaktionen gegen den Erreger auslösen.
Die Antigenerkennung über endozytische Rezeptoren, die erste große Gruppe phagozytischer Rezeptoren, führt zur Internalisierung und zur Verschmelzung mit den Lysosomen, in denen die Erreger zerstört werden (Abbildung 4.4). Außerdem ist es in dendritischen Zellen und im Monozyten-Makrophagen-System, da sie antigenpräsentierende Zellen (APZ) sind, auch möglich, das Antigen über HLA-Proteine der Klasse II zu präsentieren (Abbildung 4.5).
Unter den endozytischen Rezeptoren lassen sich hervorheben:
Rezeptoren zur Erkennung molekularer Muster:
- MR erkennt Mannose, ein Kohlenhydrat, das in bakteriellen und viralen Glykoproteinen und Glykolipiden sehr häufig vorkommt.
- LPSR (CD14) erkennt zusammen mit einem TLR die Lipopolysaccharide gramnegativer Bakterien.
- SR erkennt Zelltrümmer grampositiver und gramnegativer Bakterien oder apoptotischer Zellen.
- MBL (Mannose-bindendes Lektin) bindet an Mannosen und Fucosen der bakteriellen Zellwände und leitet den Lektinweg der Komplementaktivierung ein.
- Rezeptoren für Adaptermoleküle (Opsonine): Die Rezeptoren zur Erkennung molekularer Muster sind nutzlos, wenn der Erreger in seiner Kapsel keine Polysaccharide besitzt. Daher können diese nur phagozytiert werden, wenn sie durch Adaptermoleküle (Immunglobuline und Komplementfragmente) opsoniert sind. Phagozyten können opsonierte Erreger über die folgenden Opsonine erkennen:
- Immunglobulin G, erkannt von den Rezeptoren FcγRI, RII und RIII der Phagozyten.
- Komplementfragment C3b: erkannt von den Rezeptoren CR1, CR3 und CR4 der phagozytierenden Zellen.
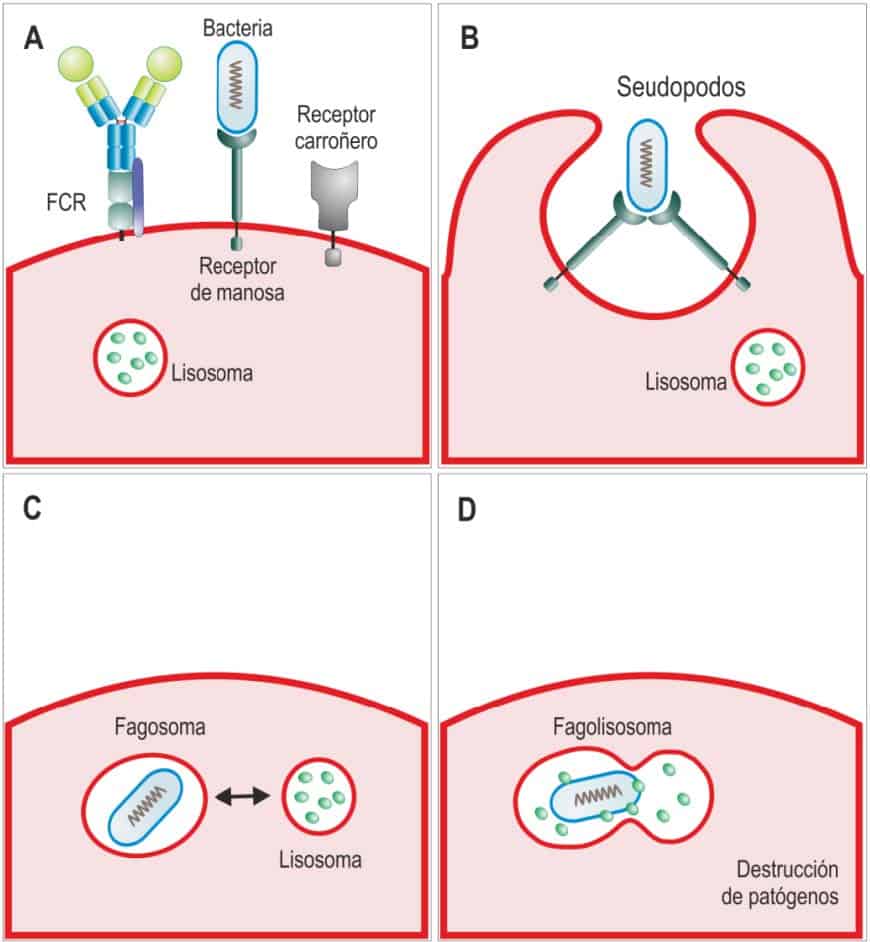
Die Erkennung der Mikroorganismen als fremd durch die Rezeptoren der Phagozyten führt zu ihrer Internalisierung in Phagosomen, die durch Verschmelzung mit den Lysosomen Phagolysosomen bilden, in deren Innerem die Mikroorganismen zerstört werden. (Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª
Ed.) Editorial Médica Panamericana, Madrid.)
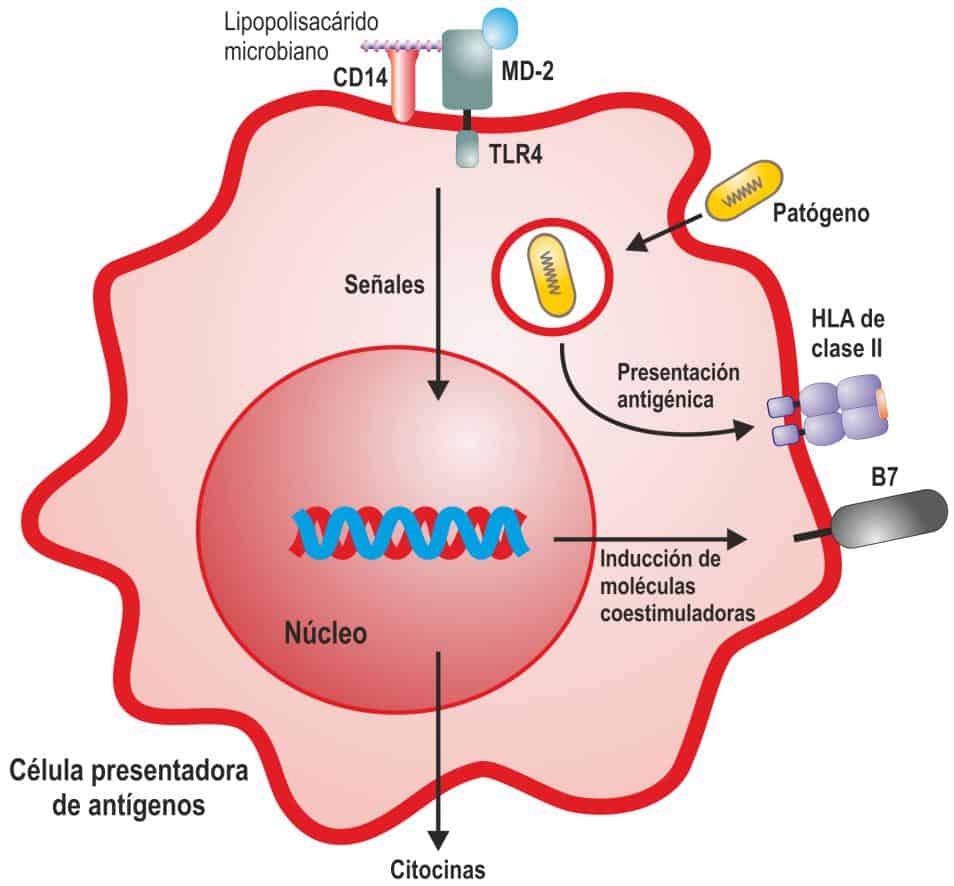
Makrophagen sind an der Entzündung und an der Aktivierung der T-Zellen beteiligt. Die Erkennung der Erreger durch die Signalrezeptoren (Toll-ähnliche Rezeptoren oder TLR) leitet eine Reihe von Signalen in den Zellkern weiter, was die Synthese und Sekretion von Zytokinen auslöst, die am Beginn der Entzündungsreaktion und der adaptiven Immunantwort beteiligt sind. Außerdem werden die phagozytierten Erreger prozessiert und in Form von Peptiden den T-Zellen durch die MHC- oder HLA-Moleküle präsentiert. Um aktiviert zu werden, müssen T-Zellen das fremde Peptid erkennen und ein zweites Signal von einer Reihe kostimulatorischer Moleküle erhalten, die auf der Oberfläche der Phagozyten exprimiert werden, wenn die Signalrezeptoren die Mikroorganismen erkennen. (Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología.
Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Die Signalrezeptoren, die die zweite große Gruppe phagozytischer Rezeptoren bilden, verteilen sich auf die Oberfläche, die Endosomen oder liegen sogar frei im Zytoplasma der Zelle. Sie erkennen pathogenassoziierte molekulare Muster (PAMP), und es gibt mehrere Familien dieser Rezeptoren, von denen die Toll-ähnlichen Rezeptoren (TLR) zu den wichtigsten gehören.
Toll-Like Receptors (TLR)
Die Toll-Like Receptors oder Toll-ähnlichen Rezeptoren besitzen eine extrazelluläre Domäne mit vielen Leucin-reichen Wiederholungen (LRR), eine Transmembrandomäne und eine innere Domäne, die TIR-Domäne (Abbildung 4.6). Die TIR-Domäne interagiert mit anderen Mitgliedern des Signaltransduktionswegs der TLR, wie MyD88 (Abbildung 4.7).
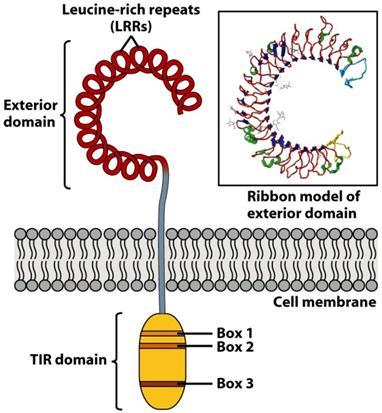
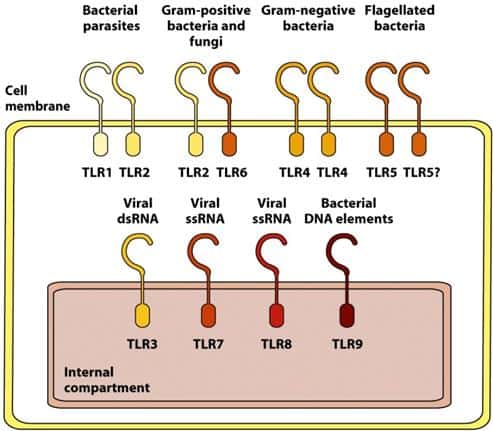
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
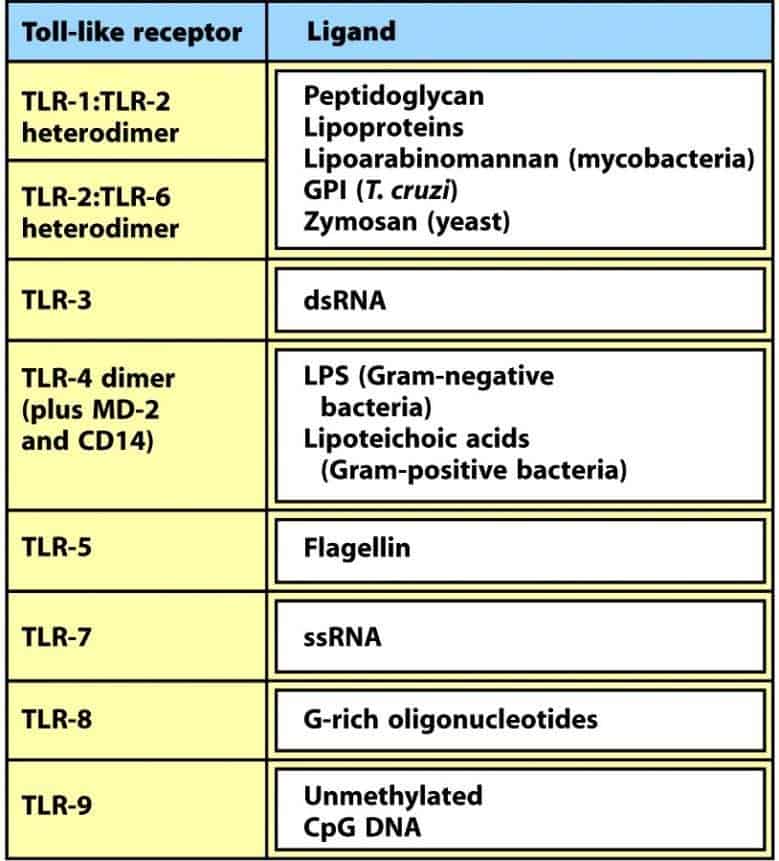
Beim Menschen sind 10 TLR bekannt, von denen jeder einen anderen Satz molekularer Muster von Erregern (PAMP) erkennen kann, die normalerweise bei Wirbeltieren nicht vorkommen. Da es nur 10 verschiedene Proteine gibt, ist ihre Spezifität begrenzt, aber sie können Moleküle sehr unterschiedlicher Erreger erkennen.
Einige TLR werden auf der Zelloberfläche exprimiert (diejenigen, die Proteine, Peptidoglykane, Lipoproteine oder LPS erkennen), andere dagegen in der Membran von Endosomen (Abbildung 4.7), wo sie Fragmente von Erregern nachweisen, die zuvor endozytiert wurden.
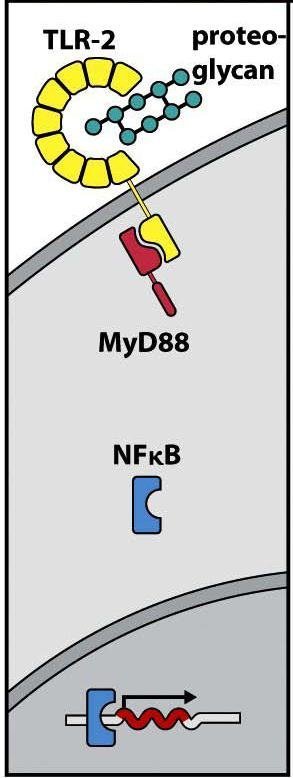
Erkennung von Proteoglykanen durch TLR 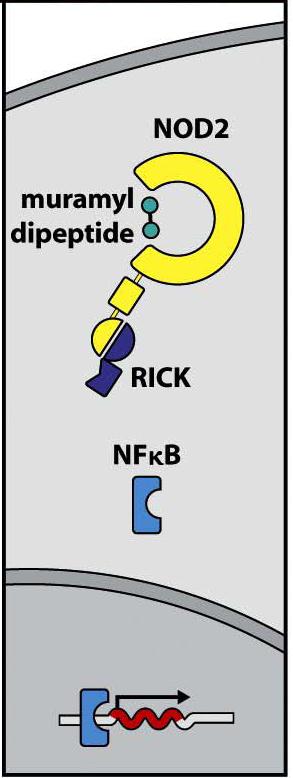
Erkennung von Proteoglykanen durch NOR
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Die endosomalen TLR erkennen im Wesentlichen verschiedene Formen von Nukleinsäuren der Mikroorganismen. Sie können als Heterodimere, Homodimere, Monomere oder, im Fall von TLR-4, durch Assoziation mit den Proteinen CD14 und MD-2 wirken, um LPS zu erkennen, das an ein LPS-bindendes Protein gebunden ist (Akutphase einer Infektion) (Abbildung 4.8).
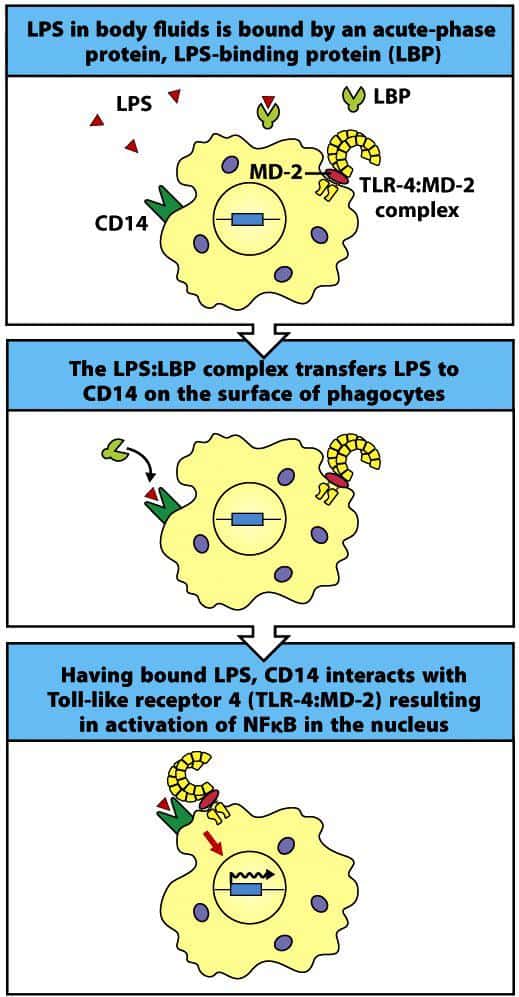
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, Nueva York.)
Eine weitere Familie von Rezeptoren, die den TLR ähneln, aber im Zytosol verteilt sind, sind die NOD-Rezeptoren (Nucleotide-binding Oligomerization Domain), die an bakterielle Produkte binden, die frei im Zytoplasma vorliegen (Abbildung 4.7). Die durch TLR und NOD ausgelöste Signalgebung hat teils unterschiedliche, teils gemeinsame Mediatoren. In beiden Fällen wird jedoch der nukleäre Transkriptionsfaktor NFκB aktiviert, der in den Zellkern transloziert und die Synthese von Zytokinen und anderen Proteinen des Entzündungsprozesses induziert (Abbildung 4.9).
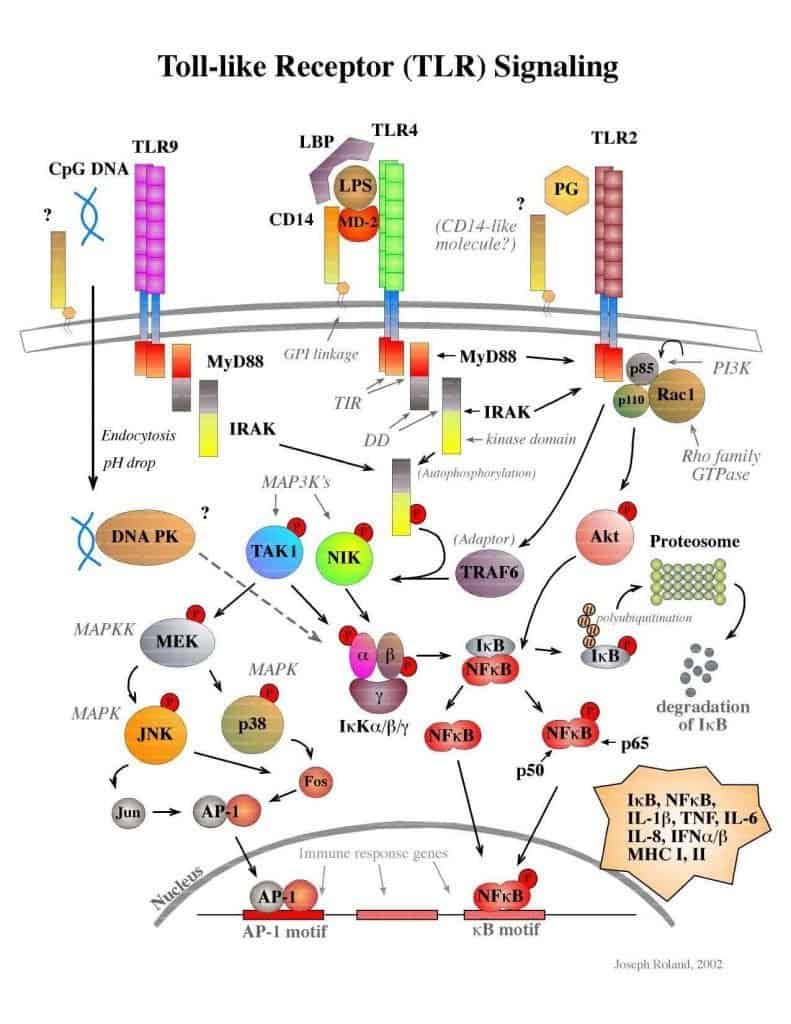
(Mit freundlicher Genehmigung von Joseph Roland.)