Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Prozessierung der Immunglobulin-Gene
Die Gensegmente, die für die variablen Regionen der Immunglobuline codieren, liegen im Genom aller Körperzellen weit voneinander getrennt vor, mit Ausnahme der Zellen der B-Linie.
Bei der beschriebenen Anordnung der Gene in Segmenten auf verschiedenen Chromosomen ist die Bildung von Immunglobulinen unmöglich, wenn nichts weiter geschieht. Die Annäherung dieser Gene erfolgt im Knochenmark während der Reifung der B-Zellen durch einen Rekombinationsvorgang zwischen den verschiedenen Gensegmenten, die sogenannte somatische Rekombination. Dieser Vorgang trägt nicht nur zur Entstehung der Diversität bei, sondern ist unerlässlich dafür, dass Immunglobuline überhaupt exprimiert werden; aus diesem Grund können nur B-Zellen sie bilden.
Prozessierung der schweren Ketten
Bei den schweren Ketten finden 2 somatische Rekombinationen statt. In einem ersten Rekombinationsschritt wird ein D-Gen erneut zufällig mit einem J-Gen kombiniert, sodass beide auf Chromosom 14 direkt aufeinanderfolgen. Danach wird, ebenfalls zufällig, ein V-Gen mit dem bereits gebildeten D-J-Fragment kombiniert (Abbildungen 8.2 und 8.4).
Bei beiden Rekombinationen gehen große DNA-Sequenzen verloren, und die 3 Segmente V, D und J, die anfangs getrennt lagen, liegen danach direkt hintereinander. Diese 3 Segmente (V-D-J) bilden ein Exon für die variable Domäne der schweren Kette. Die übrigen konstanten Domänen werden von einem C-Gen codiert (es gibt 9 C-Gene, eines für jede Immunglobulinklasse und -unterklasse).
Prozessierung der leichten Ketten
Bei der leichten Kette findet die somatische Rekombination einmal statt (zwischen einem V- und einem J-Segment) (Abbildungen 8.3 und 8.4). Bei der κ-Kette verbinden sich ein V-Gen und ein J-Gen (im Genom getrennt) zufällig und bilden ein Exon, das nach der Translation in Protein für die variable Domäne der leichten Kette codiert. Für die konstante Domäne gibt es kein Problem, da nur ein C-Gen existiert. Bei der λ-Kette läuft es genauso, nur wird das C-Gen exprimiert, das auf das zufällig gewählte J-Gen folgt. Dabei wird ein großes Stück ringförmiger DNA eliminiert.
Diese Genumlagerung findet während der Reifung der B-Zelle im Knochenmark statt. Die Rekombination ermöglicht die Synthese einer Boten-RNA mit den erforderlichen V-, J- und C-Segmenten, die durch Entfernung der Introns aneinandergefügt werden (beim Spleißen werden große RNA-Abschnitte herausgeschnitten).
Mechanismus der somatischen Rekombination
Damit die somatische Rekombination möglich ist, braucht es zwei unerlässliche Elemente: die Rekombinasen und die Rekombinationssignalsequenzen (RSS).
Die Rekombinasen (Abbildung 8.4) sind spezifische Enzyme, die Heterodimere bilden und als RAG-1 und RAG-2 bekannt sind. Im Beispiel von λ binden sie zum Beispiel an ein V-Gen (V3) und ein J-Gen (J2).
Die Rekombinationssignalsequenzen (RSS) (Abbildung 8.4) sind stark konservierte Nukleotidsequenzen, die die Gensegmente flankieren. Diese Signale bestehen aus einer Sequenz von 7 Basenpaaren (Heptamer) und einer von 9 (Nonamer), die durch nicht konservierte Spacer-DNA von 12 oder 23 bp getrennt sind.
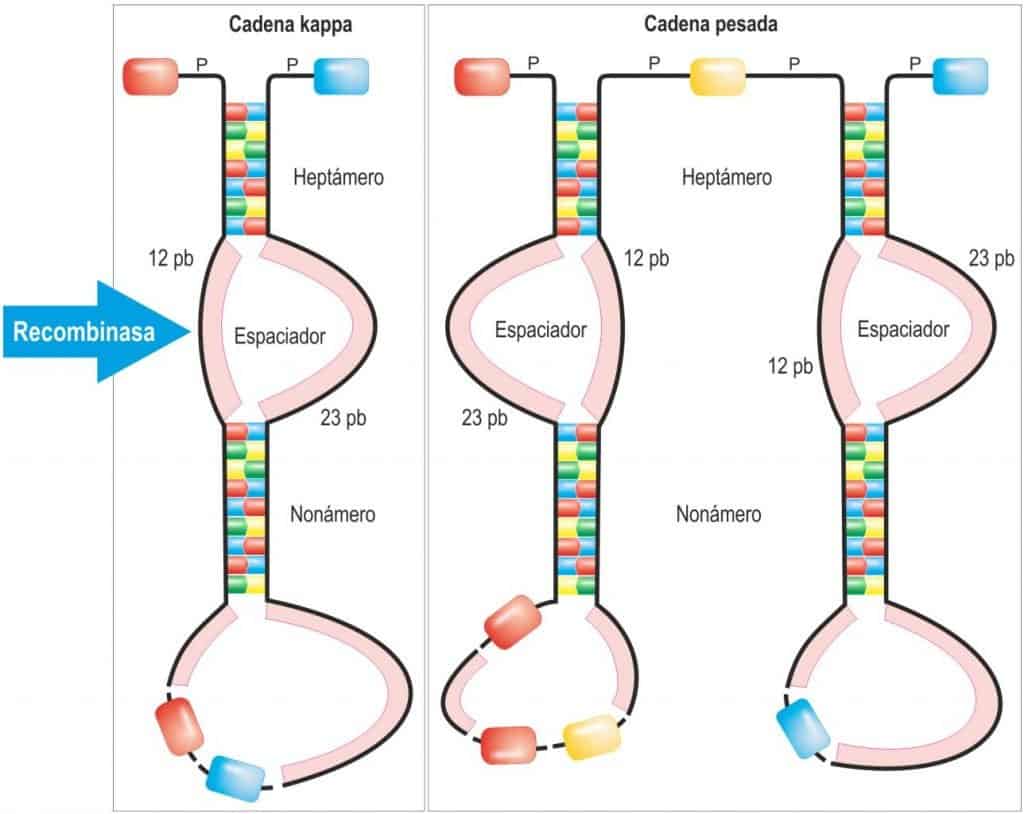
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
Hinter jedem V-Segment und vor jedem J-Segment liegt eine RSS. Die D-Segmente haben RSS davor und dahinter, da sie an 2 somatischen Rekombinationen beteiligt sind (die erste erfolgt an ihrem hinteren Ende bei der Kombination mit einem J-Segment, die zweite an ihrem vorderen Ende bei der Kombination mit einem V-Segment).
Die Sequenzen der Heptamere und Nonamere der RSS sind zueinander komplementär, sodass die Sequenzen hinter dem V-Segment zu denen vor dem D-Segment komplementär sind. Und die Sequenzen hinter dem D-Segment sind zu denen vor dem J-Segment komplementär (dies ermöglicht die Bildung von Palindromen).
Die Länge der Spacer-Regionen scheint eine wichtige Rolle dafür zu spielen, dass die somatische Rekombination geordnet (VDJ) abläuft, da sie nur zwischen einem Heptamer-Nonamer-Paar mit einem Abstand von 12 Basenpaaren (bp) und einem anderen Heptamer-Nonamer-Paar mit einem Abstand von 23 bp stattfindet. Diese Spacer-Sequenzen von 12 bp und 23 bp liegen an den verschiedenen Gensegmenten abwechselnd vor.
Deshalb kann bei den schweren Ketten keine VJ-Rekombination stattfinden, da beide Regionen von Spacern mit 23 bp flankiert werden. Sie können aber mit den D-Segmenten rekombinieren, da diese von Spacern mit 12 bp flankiert werden.
Die Rekombinationssignale werden von den spezialisierten Enzymen (Rekombinasen) RAG-1 und RAG-2 erkannt. Indem sich diese einander annähern, bringen sie die Segmente zufällig zusammen und bilden eine Schleife in der DNA, die durch die Palindrome zwischen den signalgebenden Heptameren und Nonameren stabilisiert wird. Anschließend lösen die Rekombinasen die Schleife auf, indem sie schneiden, die beiden Segmente verknüpfen und die überstehenden Enden herausschneiden (in Form ringförmiger DNA). Alles, was in der Schleife lag, geht verloren und ist nicht wiederherstellbar. Bei diesem Schneiden und Verbinden der Segmente, das ungenau ist, werden zufällig Nukleotide mitgeschleppt, und manchmal werden Nukleotide eingefügt. Das ist ein Mechanismus zur Steigerung der Ig-Vielfalt, wie wir später sehen werden, kann aber auch das Leseraster verändern und so zu vorzeitigen Stoppcodons oder zu funktionslosen (abortiven) Proteinen führen.
Da das Umlagerungssystem viele Ungenauigkeiten aufweist, können sowohl in B- als auch in T-Zellen beim Umlagern der Segmente Fehler auftreten, sodass zufällig abortive Proteine (Stoppcodon oder Leserasterverschiebung) ohne jeden Nutzen entstehen (nicht produktive Umlagerungen) (Abbildung 8.5). Deshalb können sowohl bei der Prozessierung der schweren als auch der leichten Ketten anfängliche nicht produktive Umlagerungen gerettet werden (sofern noch V-, D- und J-Segmente verfügbar sind), und die entsprechenden Chromosomen werden zufällig erneut umgelagert, bis produktive Umlagerungen entstehen; die Grenze setzt also die Zahl der verbleibenden Segmente. Sobald eine produktive Umlagerung erreicht ist, stoppt ein Signal den Vorgang.
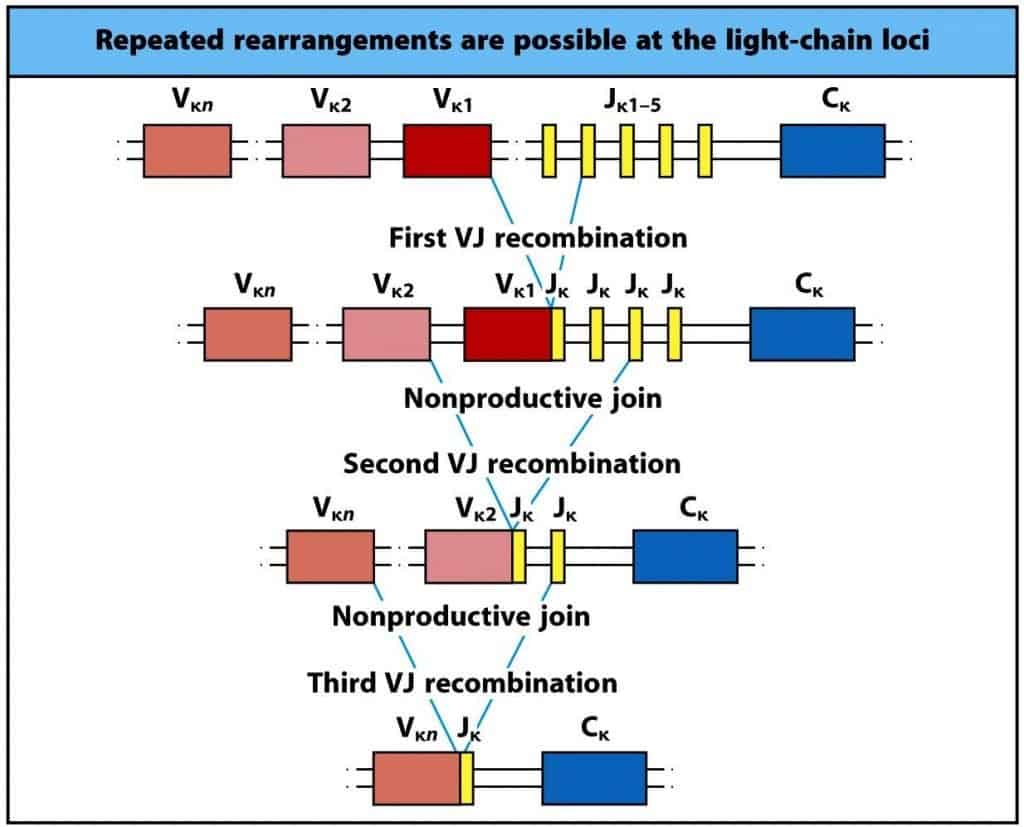
(Übernommen aus Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)