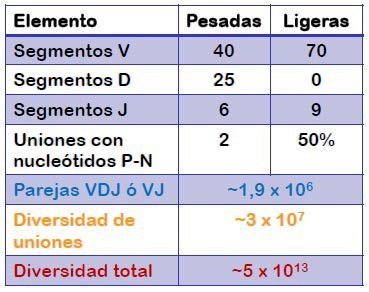
Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Mechanismen zur Erweiterung des Repertoires
Die Diversität der Immunglobuline ergibt sich einerseits aus der Variabilität der leichten und schweren Ketten und andererseits aus den vielfältigen Möglichkeiten, wie diese Ketten sich miteinander verbinden. Damit erhielten wir eine potenzielle Immunglobulindiversität von 4,5 Millionen. Man weiß jedoch, dass unser Lymphozytenrepertoire die Größenordnung von 1011 erreicht (Abbildung 8.10); deshalb gibt es zwei zusätzliche Mechanismen: die junktionale Diversität und die somatische Hypermutation.
Junktionale Diversität
Diese Mechanismen wirken zum Zeitpunkt der Genumlagerung während der Reifung der B-Zelle im Knochenmark. Sie entstehen, weil die somatische VDJ-Rekombination (bei schweren Ketten) bzw. VJ-Rekombination (bei leichten Ketten) kein hochpräziser Mechanismus ist. Das Schneiden und Verbinden der einzelnen Segmente verläuft daher nicht immer gleich, auch wenn dieselben Segmente beteiligt sind. Es handelt sich um einen Diversitätsmechanismus, und zwar aus mehreren Gründen:
- Die Flexibilität der Verbindungsstellen selbst (Abbildung 8.6): Die Schnittstelle der DNA in den 2 Segmenten kann variieren, sodass alternative Codons entstehen. Das heißt, die Rekombinase muss die Segmente nicht immer an derselben Stelle schneiden. Je nach Schnittstelle und je nachdem, zwischen welchen Nukleotiden die Verbindung entsteht, kann sich das Leseraster der DNA ändern und damit können andere Aminosäuren in das Protein gelangen; allerdings führen nicht alle Verbindungen zu produktiven VJ- oder VDJ-Umlagerungen, da vorzeitige Stoppcodons entstehen können (Abbildung 8.7).
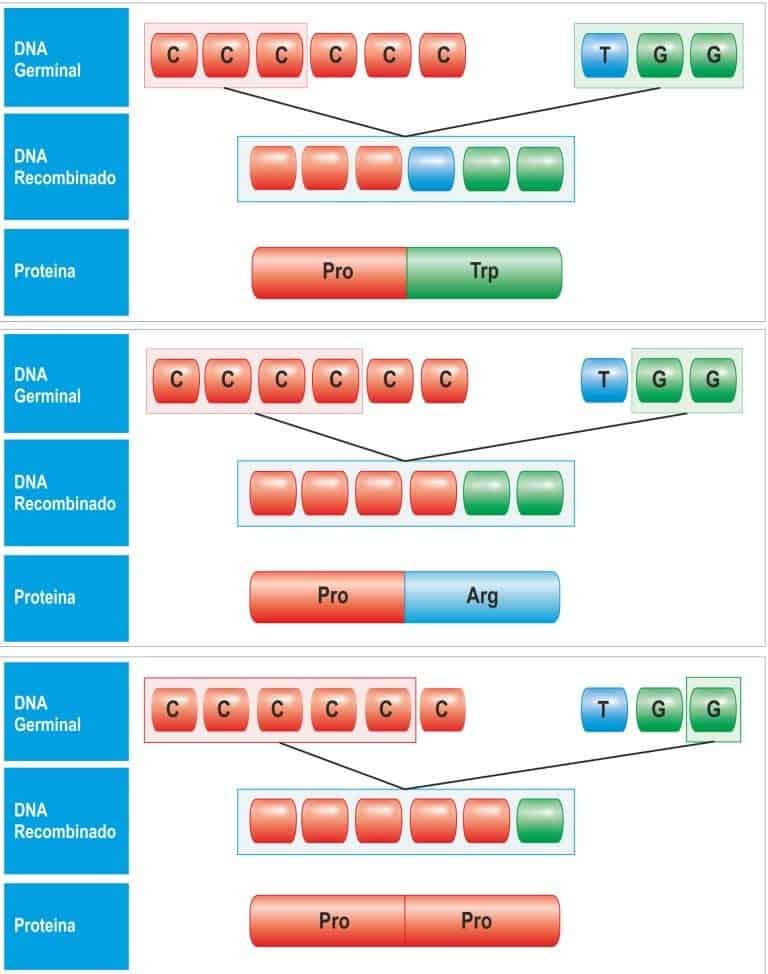
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
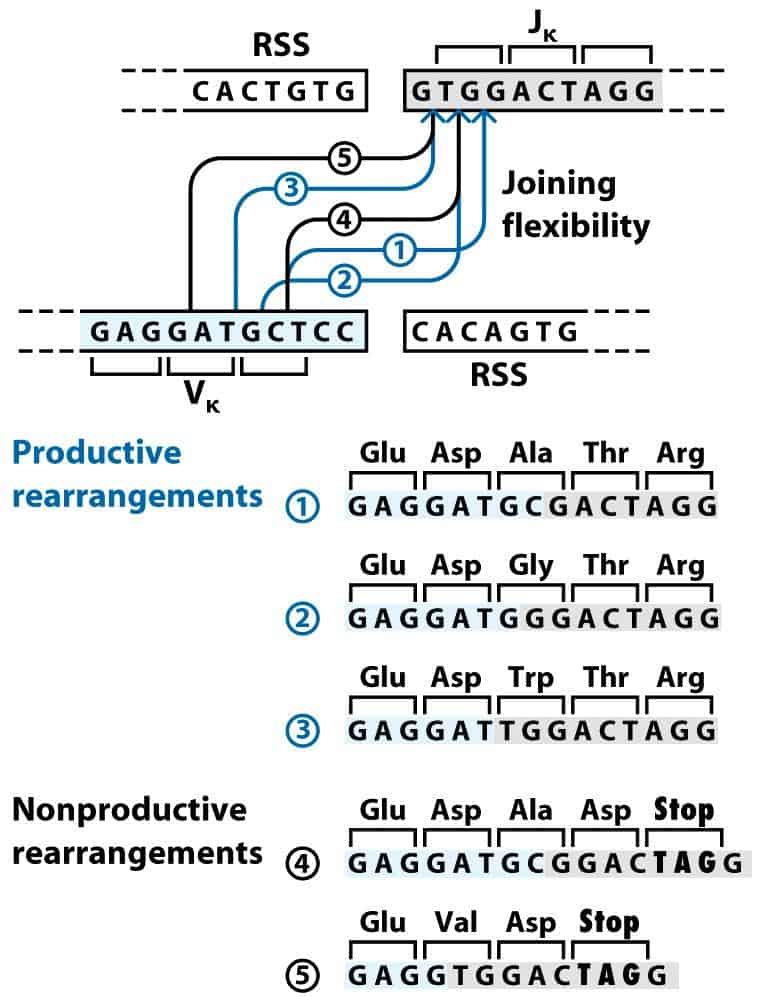
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6. Aufl.) McGraw-Hill Interamericana, Madrid.)
- Das Hinzufügen zusätzlicher Nukleotide, das in 2 verschiedenen Vorgängen erfolgt:
- Die bei den Umlagerungen mitgeschleppten Nukleotide, die nach der Spaltung der DNA-Einzelstränge am Ende überstehen, klappen zurück und bilden eine Haarnadelstruktur (Abbildung 8.8-A), die die DNA schützt. Wenn diese Haarnadel aufbricht, bleiben diese Nukleotide „überstehen“, und reparierende Enzyme fügen diesem Strang die komplementären Nukleotide hinzu, wodurch eine palindromische Sequenz entsteht; deshalb nennt man diese Nukleotide P-Nukleotide. Bei diesem Vorgang werden die P-Nukleotide sowohl bei den leichten als auch bei den schweren Ketten zufällig mitgeschleppt (sie sind für eine große Zunahme der Variabilität verantwortlich, aber auch für mögliche Leserasterverschiebungen, die zu abortiven Proteinen führen würden).
- Außerdem kann das Enzym terminale Desoxynukleotidyltransferase (TdT) an den Verbindungsstellen einige wenige Nukleotide (in variabler Zahl) zufällig und ohne Matrize anfügen (Abbildung 8.8-B). Ihr Einbau erzeugt eine beträchtliche Diversität. Diese Nukleotide nennt man N-Nukleotide. Dieses zufällige Anfügen von Nukleotiden durch die TdT findet bei den schweren Ketten immer und an 2 Stellen statt (zwischen den Segmenten D und J sowie zwischen V und D). Bei der leichten Kette geschieht es dagegen nur an einer Stelle (zwischen dem V- und dem J-Segment) und nur in 50 % der Fälle. Man hat beobachtet, dass die Länge der N-Nukleotide bis zu 15 betragen kann.
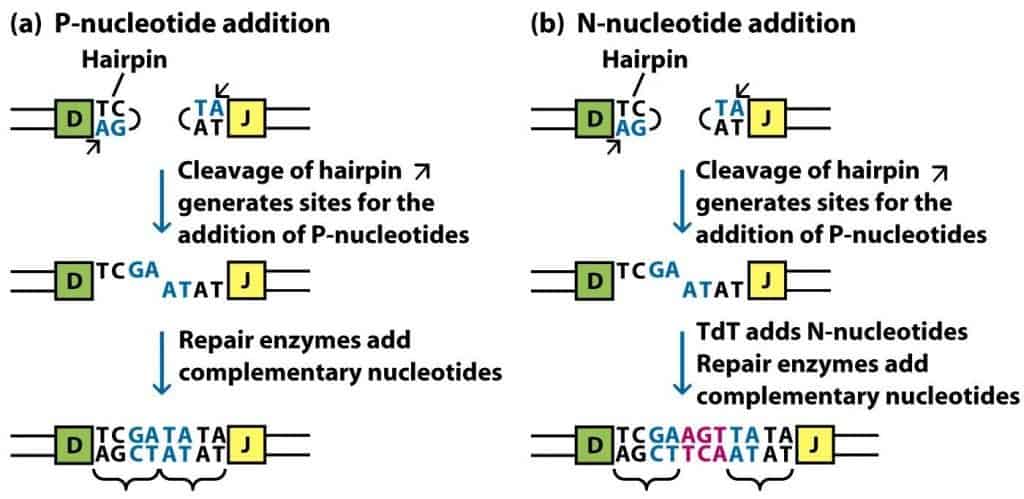
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6. Aufl.) McGraw-Hill Interamericana, Madrid.)
Somatische Hypermutation
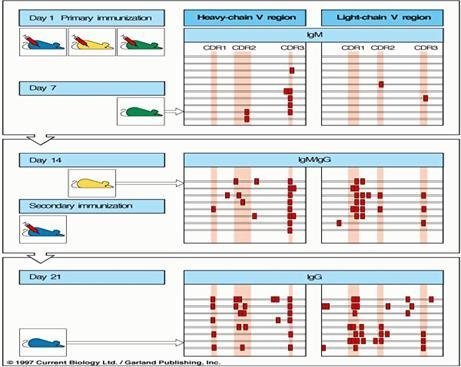
Dieser variabilitätssteigernde Mechanismus wirkt in den sekundären lymphatischen Organen, sobald eine reife B-Zelle als Reaktion auf ein Antigen aktiviert wurde. Im Experiment konnte man zeigen, dass nach der Gabe eines Antigens bei einer Maus nach einigen Tagen Mutationen in den variablen Regionen sowohl der schweren als auch der leichten Ketten auftreten (Abbildung 8.9). Kommt es danach zu einer Sekundärimmunisierung, beobachtet man noch deutlich mehr Mutationen in den variablen Regionen. Die dabei eingeführten Punktmutationen können die Aminosäuresequenz der variablen Region verändern oder auch nicht.
Die Veränderungen, die die Proteinsequenz modifizieren (produktive Mutationen), konzentrieren sich in den codierenden Bereichen der hypervariablen Regionen (CDR, Interaktion mit dem Antigen), während die Veränderungen, die die Sequenz nicht modifizieren (stille Mutationen), meist in den flankierenden Regionen auftreten. Dieser Vorgang läuft zufällig ab, und zwar in dem Moment, in dem die B-Zelle auf das Antigen antwortet.
Das Ergebnis kann verheerend sein: Es entstehen Stoppcodons, die verkürzte Proteine erzeugen, oder es werden Immunglobuline codiert, die das Antigen nicht erkennen. In diesen Fällen entwickeln sich die B-Zellen nicht weiter.
Es besteht jedoch auch die Möglichkeit, dass durch die Mutation Antikörper mit höherer Affinität entstehen, die das Antigen besser erkennen. Deshalb wird dieser Mechanismus auch als Affinitätsreifung bezeichnet. Diese Klone werden selektiert, was eine Verfeinerung der Immunantwort ermöglicht.
Dieses System der Repertoireerweiterung ist in der Berechnung der verschiedenen Rezeptoren, die entstehen können, nicht enthalten, ist aber ein weiterer Mechanismus zur Erzeugung von Diversität.
(Übernommen aus Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)