Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Expression der Immunglobuline im BCR
Allelausschluss
Als Allelausschluss bezeichnet man das Phänomen, bei dem nach der Synthese eines funktionellen bzw. produktiven Ig die Umlagerung beendet wird (die Rekombinasen stoppen, und es entstehen keine weiteren Schleifen). So hat jede B-Zelle nur einen Antikörpertyp auf ihrer Oberfläche oder sezerniert nur einen. Diese Spezifität bleibt während des gesamten Lebens der B-Zelle erhalten (sie könnte sich nur in ihrer Affinität verändern, durch Mechanismen der somatischen Hypermutation). Der Allelausschluss ist also für die Monospezifität der Antigenerkennung durch die B-Zelle verantwortlich.
Die reife B-Zelle (die die Genumlagerung ihrer Ketten bereits abgeschlossen hat) kann in Primärantworten nur IgM oder IgD bilden. Das hat physikalische Gründe (die Länge der mRNA reicht bis zu den Genen Cμ und Cδ, die in der Sequenz auf Chromosom 14 als Erste liegen). Ob dieses Immunglobulin membrangebunden oder löslich ist, hängt davon ab, ob bei der RNA-Prozessierung die Exons eingeschlossen werden, die für den Transmembran- und zytoplasmatischen Anteil des Proteins codieren, oder (alternativ) der sekretorische Anteil (Abbildung 8.11).
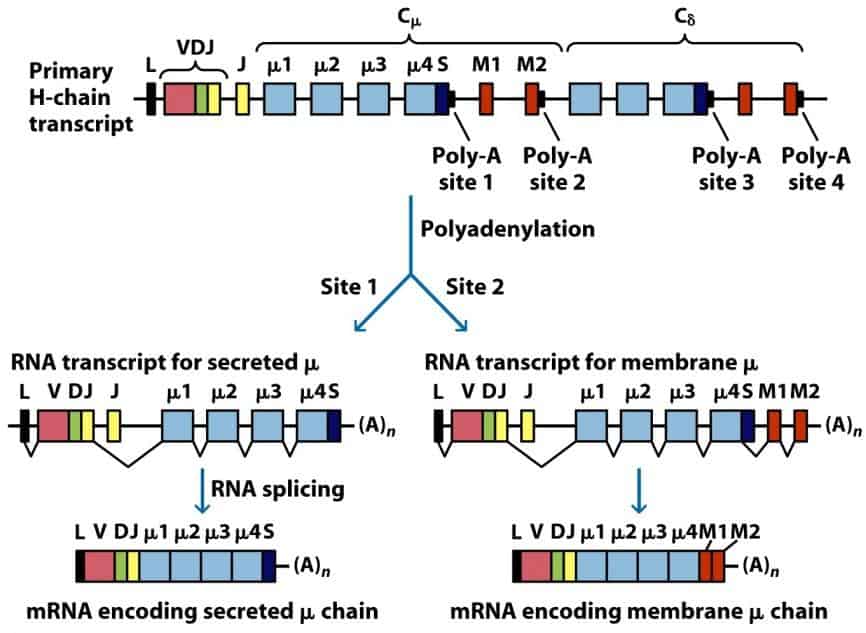
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6. Aufl.) McGraw-Hill Interamericana, Madrid.)
Ob das Immunglobulin IgM oder IgD ist, hängt ebenfalls von dieser RNA-Prozessierung ab (Abbildung 8.12). Die übrigen Isotypen können anfangs nicht gebildet werden, da sie zusätzliche Veränderungen in der DNA erfordern. Die Immunglobuline, die eine reife B-Zelle anfangs bilden kann, sind daher: mIgM, sIgM, mIgD, sIgD (wobei s und m für löslich (soluble) bzw. Membran stehen).
Isotypwechsel
Um andere Isotypen zu synthetisieren, muss der sogenannte Isotypwechsel stattfinden. Der Isotypwechsel erfolgt innerhalb einer klonalen Linie mehrmals und betrifft nicht die variablen Regionen (deren Umlagerung im Knochenmark immer erhalten bleibt, zum Beispiel V1D3J9), sondern die Gene der konstanten Regionen (Abbildung 8.13). Er ist bei B-Zellen im Knochenmark sehr häufig.
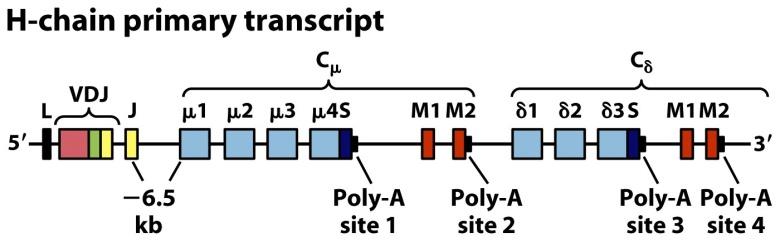
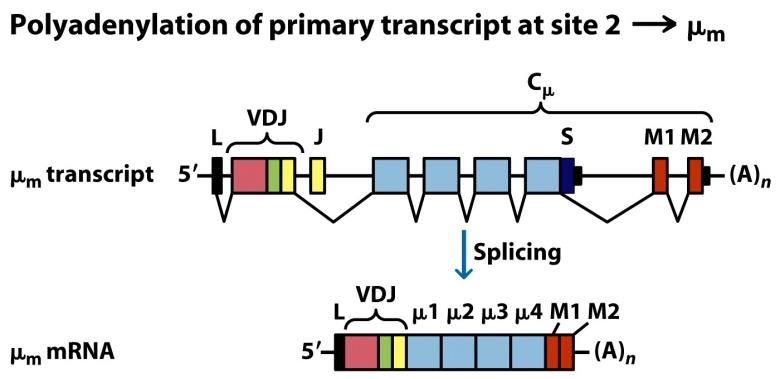
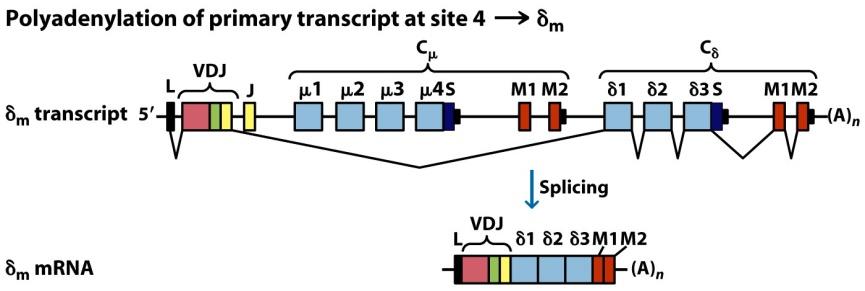
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6. Aufl.) McGraw-Hill Interamericana, Madrid.)
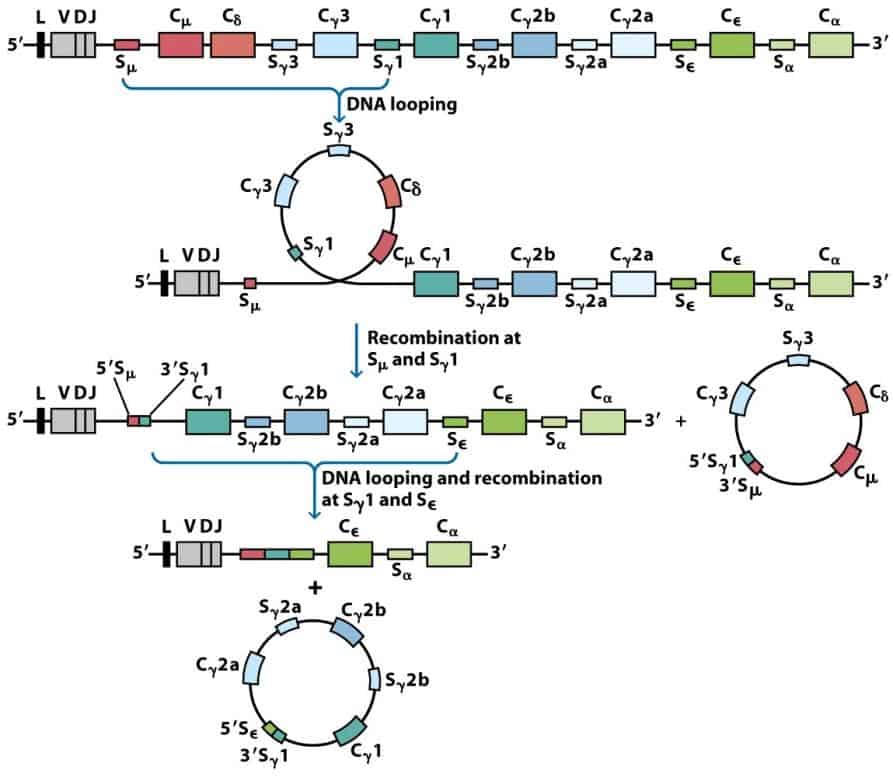
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6. Aufl.) McGraw-Hill Interamericana, Madrid.)
Der Isotypwechsel ist ein weiterer Umlagerungsvorgang der DNA, und damit er stattfinden kann, sind zwei unerlässliche Voraussetzungen nötig:
- die Beteiligung von Rekombinationsenzymen.
- das Vorhandensein repetitiver Nukleotidsequenzen, die als „Klassenwechsel-Signale“ (Switch-Signale) bezeichnet werden. Diese Sequenzen liegen vor allen Genen, die für die konstanten Segmente codieren, mit Ausnahme von IgD, und „leiten“ den Wechsel, indem sie anzeigen, wo die Rekombination stattfinden muss, bei der konstante Gene der verschiedenen schweren Ketten verloren gehen.
Der Isotypwechsel kann im Leben eines Klons mehrfach stattfinden, ist aber irreversibel (wenn von IgM zu IgE gewechselt wurde, wird diese Zelle nie wieder IgM bilden). Die Grenze ist beim Wechsel zum Isotyp IgA2 erreicht (da das Gen Cα2 das letzte konstante Gen auf Chromosom 14 ist).
Der Isotypwechsel wird während der Kooperation zwischen B- und T-Lymphozyten induziert; die T-Zellen signalisieren den B-Zellen, ihre DNA zu neuen konstanten Segmenten umzulagern, die den VDJ-Segmenten benachbart sind. Diese Zellen und ihre Nachkommen wechseln von der Sekretion von IgM zu anderen Isotypen. Dafür ist ein direkter Zell-Zell-Kontakt zwischen T- und B-Zelle nötig, der durch CD40L bzw. CD40 vermittelt wird. Außerdem muss die Th-Zelle zwei aufeinanderfolgende Aktivierungssignale erhalten: das 1. entsteht, wenn die Th-Zelle den Komplex aus Ag und HLA-Klasse II erkennt (dank ihres Rezeptors und ihres Korezeptors CD4), das 2. ist die Bindung von CD28 an seinen Liganden, der auf der B-Zelle CD80 und CD86 ist.
Nachdem die Th-Zelle diese beiden Signale erhalten hat, sendet sie zwei weitere Signale für den Isotypwechsel der B-Zelle:
- Erstes Signal: Expression des CD40-Liganden an der Oberfläche, der an CD40 auf der Oberfläche der B-Zelle bindet.
- Zweites Signal: Freisetzung von Zytokinen, die an ihre Rezeptoren auf der B-Zelle binden.
Je nach freigesetztem Zytokin wird der Wechsel zu verschiedenen Isotypen induziert (Abbildung 8.14):
- Interleukin-4: induziert den Wechsel zu IgE.
- Interferon-γ: induziert den Wechsel zu IgG.
- TGF-β (transformierender Wachstumsfaktor β): induziert den Wechsel zu IgA.
- IL-4+IL-13: KEIN Klassenwechsel.
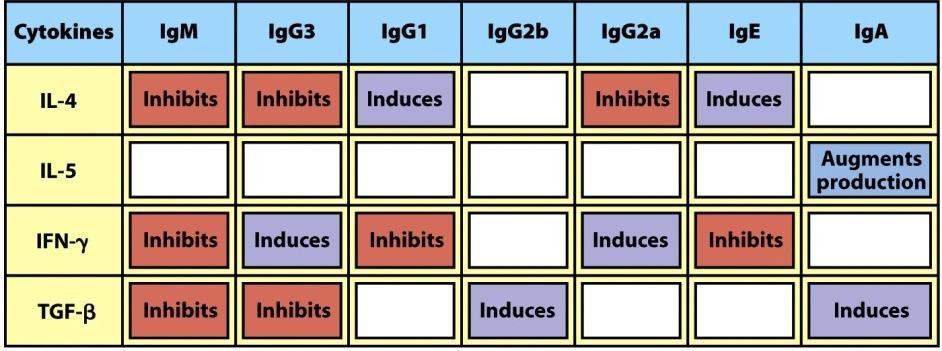
(Übernommen aus Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)