Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Präferenzen bei der Bindung von Peptiden an MHC-Moleküle
MHC-Klasse-I-Moleküle
MHC-Klasse-I-Moleküle besitzen eine Peptidbindungsgrube, deren Boden aus antiparallelen β-Faltblättern besteht, auf denen zwei α-Helices ruhen (Abbildung 10.4-AB). Da diese Grube von den Domänen α1 und α2 der α-Kette von MHC-Klasse-I gebildet wird, also von einem einzigen Protein, ist sie eine sehr starre Stelle für die Peptidbindung.
Neben dieser Einschränkung müssen die Peptide weitere Merkmale erfüllen, um an MHC-Klasse-I binden zu können:
- Länge: Die Länge der Peptide, die an MHC-Klasse-I binden, liegt zwischen 8 und 11 Aminosäuren; bevorzugt werden Peptide mit 9 Aminosäuren.
- Enden: Die Peptide binden über ihr amino- und ihr carboxyterminales Ende an die MHC-Klasse-I-Moleküle.
- Kritische Ankerreste: In den MHC-Klasse-I-Molekülen gibt es Subtaschen, die bestimmen, welche Art von Aminosäuren an sie binden kann (aromatische, hydrophobe, unpolare, …). Auf diese Weise legen die MHC-Klasse-I-Moleküle fest, welche Peptide binden können (Abbildung 10.4-CD, Abbildung 10.5, Abbildung 10.6-CDE).
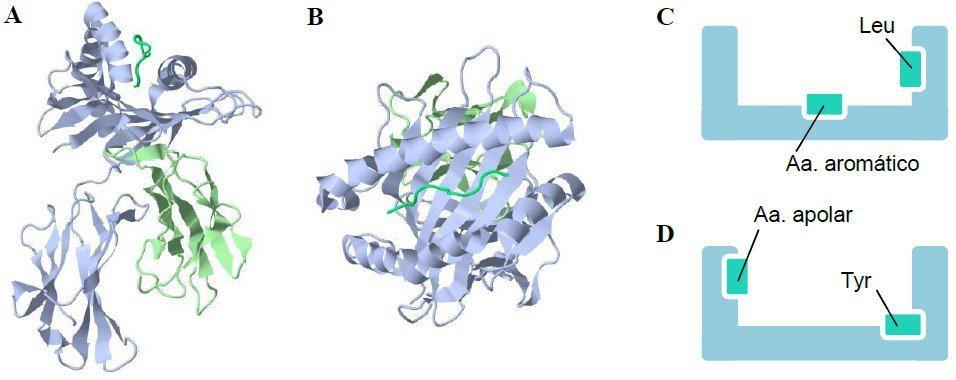
(A) (B) Bändermodell von MHC-Klasse-I in Seitenansicht (A) und Aufsicht (B). In beiden Fällen ist ein antigenes Peptid in der Peptidbindungsgrube zu erkennen. (C) (D) Schema der Peptidbindungsgrube der MHC-Klasse-I-Moleküle, in dem die kritischen Ankerreste der antigenen Peptide dargestellt sind. (C) stellt das Molekül aus Abbildung 10.5-A dar. (D) stellt das Molekül aus Abbildung 10.5-B dar. (Mit freundlicher Genehmigung von David Pérez Torres, Universidad de Valladolid.)
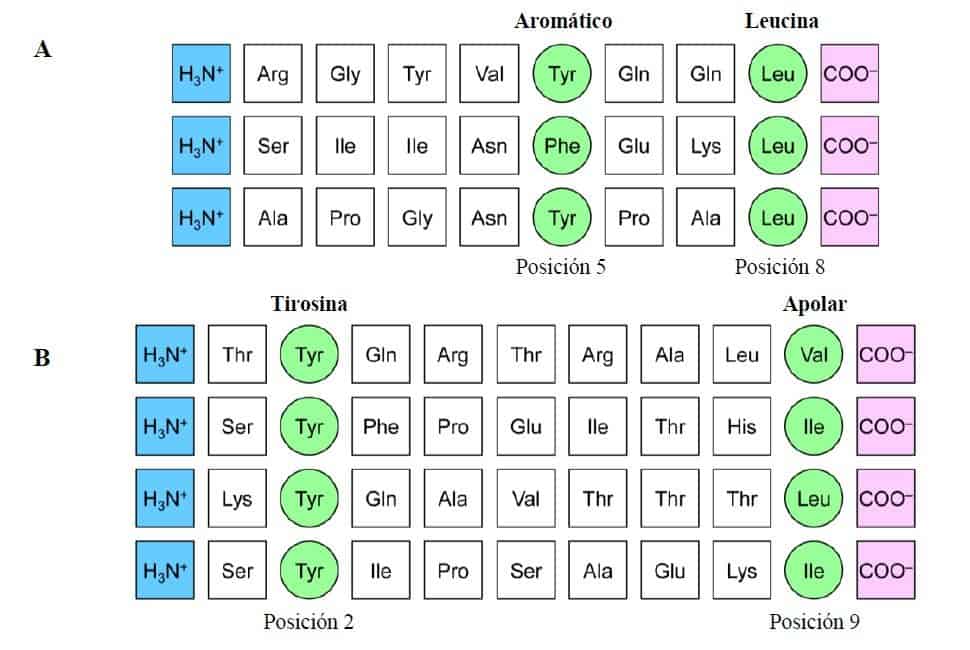
Die Abbildung zeigt die Aminosäuresequenzen von Peptiden, die aus zwei verschiedenen MHC-Klasse-I-Molekülen gewonnen wurden. Die Ankerreste (grün dargestellt) unterscheiden sich bei Peptiden, die an verschiedene Allele der MHC-Klasse-I-Moleküle binden, sind aber bei allen Peptiden, die am selben Molekül verankert werden, ähnlich. Die Peptide binden außerdem an das aminoterminale (blau dargestellt) und das carboxyterminale Ende (rosa dargestellt) der MHC-Klasse-I-Moleküle. (A) Die Peptide, die an dieses MHC-Klasse-I-Molekül binden, tun dies über Ankerreste, die nicht identisch sein müssen, aber verwandt sind: An Position 5 stehen immer aromatische Aminosäuren und an Position 8 immer Leucin. (B) Bei diesem anderen MHC-Klasse-I-Molekül muss das gebundene Peptid an Position 2 Tyrosin und an Position 9 eine unpolare Aminosäure enthalten.
(Umgezeichnet und verändert nach Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
MHC-Klasse-II-Moleküle
Die Peptidbindungsgrube der MHC-Klasse-II-Moleküle besteht aus zwei verschiedenen, nicht kovalent verbundenen Molekülen, den α- und β-Ketten, wodurch sie eine flexiblere Grube ist als die der MHC-Klasse-I-Moleküle (Abbildung 10.6-AB). Dadurch können die gebundenen Peptide bis zu mehr als 20 Aminosäuren lang sein und ragen deshalb häufig auf beiden Seiten aus der Grube heraus. Normalerweise bindet das Peptid mit 9 Aminosäureresten an MHC-Klasse-II. Wie bei MHC-Klasse-I gibt es kritische Ankerreste (Abbildung 10.6-CD
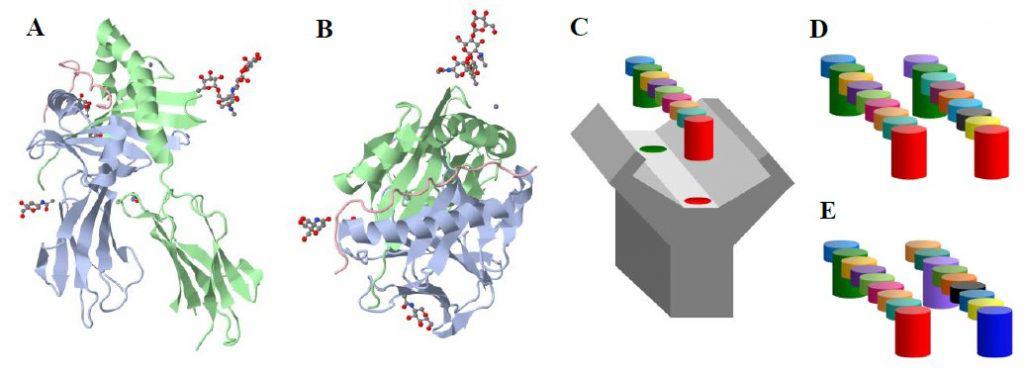
(A) (B) Bändermodell von MHC-Klasse-II in Seitenansicht (A) und Aufsicht (B). In beiden Fällen sind ein antigenes Peptid in der Peptidbindungsgrube und die Verankerungsposition anderer Moleküle zu erkennen. (C) Schematische Darstellung der Bindung eines Nonapeptids an ein MHC-Klasse-I- oder -II-Molekül. Beachte, dass die kritischen Ankerreste (grün und rot dargestellt) bei jedem MHC-Molekül unterschiedlich sind. (D) Schematische Darstellung eines Peptids mit denselben Ankerresten wie das Peptid in Abbildung 10.6-C. (E) Schematische Darstellung eines Peptids mit anderen Ankerresten als das Peptid in Abbildung 10.6-C, das deshalb nicht an das MHC-Molekül dieser Abbildung binden kann.
(Mit freundlicher Genehmigung von David Pérez Torres, Universidad de Valladolid.)
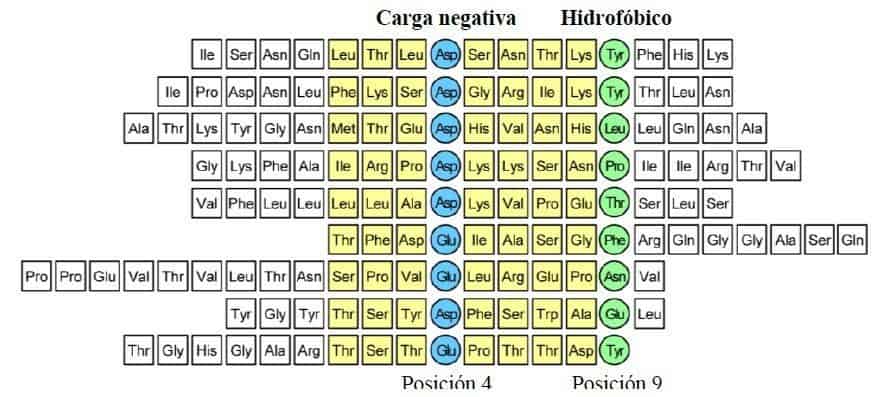
Sequenz von Peptiden, die an das Allel HLA-DR3 von humanem MHC-Klasse-II binden. Die Länge der Peptide ist variabel, und per Konvention wird der erste Ankerrest mit der Nummer 1 bezeichnet. Die Kontaktzone zwischen Peptid und MHC-Klasse-II umfasst 9 Aminosäuren. Alle Peptide haben an Position 4 eine negativ geladene Aminosäure (Asparaginsäure oder Glutaminsäure) (blau dargestellt) und weisen tendenziell an Position 9 einen hydrophoben Rest auf (grün dargestellt). (Umgezeichnet und verändert nach Murphy K et al. (2008) Janeway’s Immuno-
biology (7th Ed.) Garland Science, New York.)
Superantigene
Konventionelle Antigene werden von antigenpräsentierenden Zellen prozessiert und den T-Zellen auf MHC-Klasse-II-Molekülen präsentiert (Abbildung 10.8-A). In diesem Fall werden die TH-Zellen aktiviert, deren Rezeptoren das Antigen erkennen können, und beginnen Zytokine zu produzieren. Die aktivierten TH-Zellen stimulieren ausschließlich die B-Zellen, die mit dem Antigen reagieren, gegen das die Immunantwort gerichtet ist, sodass das Immunsystem nur Antikörper gegen das Antigen bildet, das ihm auf dem MHC-Klasse-II-Molekül präsentiert wurde.
Superantigene (SAg), wie das Enterotoxin B von Staphylococcus (SEB), das beim Menschen eine Lebensmittelvergiftung verursacht, können von antigenpräsentierenden Zellen nicht prozessiert werden. Stattdessen binden sie direkt an konstante Bereiche der MHC-Klasse-II-Moleküle der antigenpräsentierenden Zellen und an konstante Bereiche des TCR der TH-Zellen und bilden so eine Brücke zwischen beiden molekularen Strukturen.
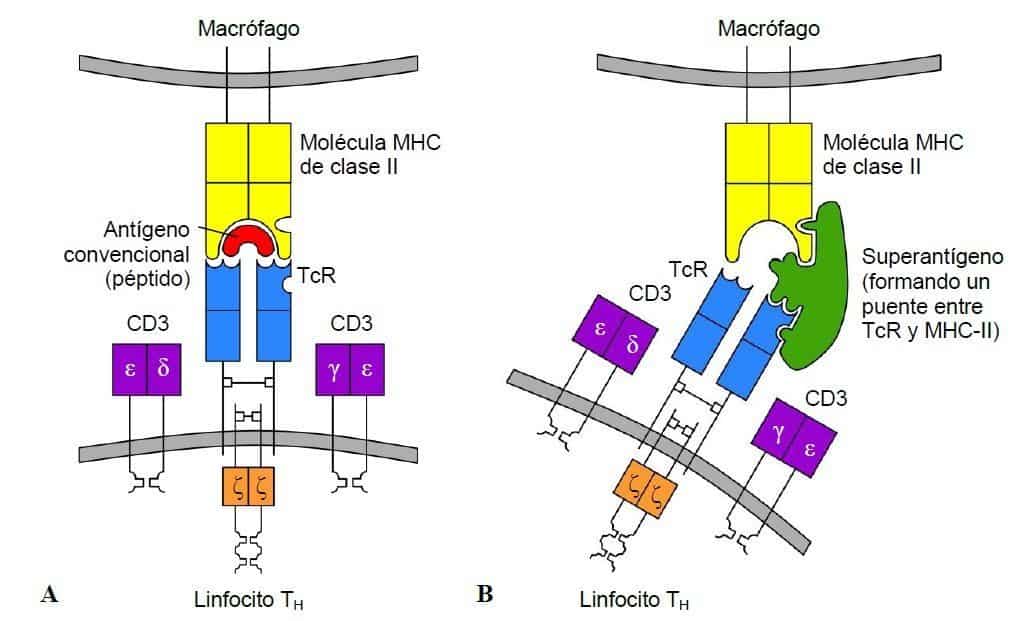
(A) Konventionelle Antigene werden den T-Zellen auf MHC-Klasse-
II-Molekülen präsentiert. Die Erkennung zwischen MHC, Peptid und TCR aktiviert die erforderliche Anzahl antigenspezifischer TH-Zellen. (B) Superantigene können Brücken zwischen den konstanten Regionen der MHC-Klasse-II-Moleküle und des TCR bilden. Es findet keine spezifische Erkennung zwischen Superantigen, MHC und TCR statt, wodurch eine übermäßige Zahl von TH-Zellen aktiviert wird, was in eine für den Organismus gefährliche Reaktion mündet. (Umgezeichnet und verändert nach Regueiro JR et al. (2003) Inmunología. Biología y Patología del Sistema Inmune. (3. Aufl.) Editorial Médica Panamericana, Madrid.)
Konventionelle Antigene, die auf MHC-Klasse-II-Molekülen präsentiert werden, binden ausschließlich an die TH-Zellen, die sie spezifisch erkennen; diese machen einen weit geringeren Anteil als 0,01 % des gesamten T-Zell-Repertoires des Individuums aus. Superantigene hingegen können unspezifisch an eine Vielzahl von MHC-Klasse-II-Molekülen und TCR binden, was zur Aktivierung einer übermäßigen Zahl von TH-Zellen führt, die in diesem Fall zwischen 2 % und 25 % des gesamten T-Zell-Repertoires des Individuums ausmachen.
Die Aktivierung der TH-Zellen führt zur Produktion von Zytokinen, unter denen Interleukin 2 (IL-2) besonders hervorzuheben ist. Bei konventionellen Antigenen ist die Zytokinproduktion ein lokales Ereignis und ermöglicht die angemessene Beseitigung des Antigens. Bei Superantigenen kann die Überproduktion von Zytokinen durch die übermäßige Zahl aktivierter TH-Zellen nicht lokal eingedämmt werden und gelangt in den Blutkreislauf (Abbildung 10.9). Der Eintritt der Zytokine in die Zirkulation verursacht beim Betroffenen unerwünschte Wirkungen wie Fieber, Übelkeit, Erbrechen und Durchfall. In schwereren Fällen kann es zu Schock, Multiorganversagen, Kreislaufversagen und sogar zum Tod kommen.
Die Fähigkeit der T-Zell-SAg, unspezifisch an große Mengen von MHC-Klasse-II-Molekülen zu binden, ermöglicht es ihnen, lebensbedrohliche Vorgänge auszulösen, weshalb sie eine völlig unerwünschte Gruppe von Molekülen darstellen.
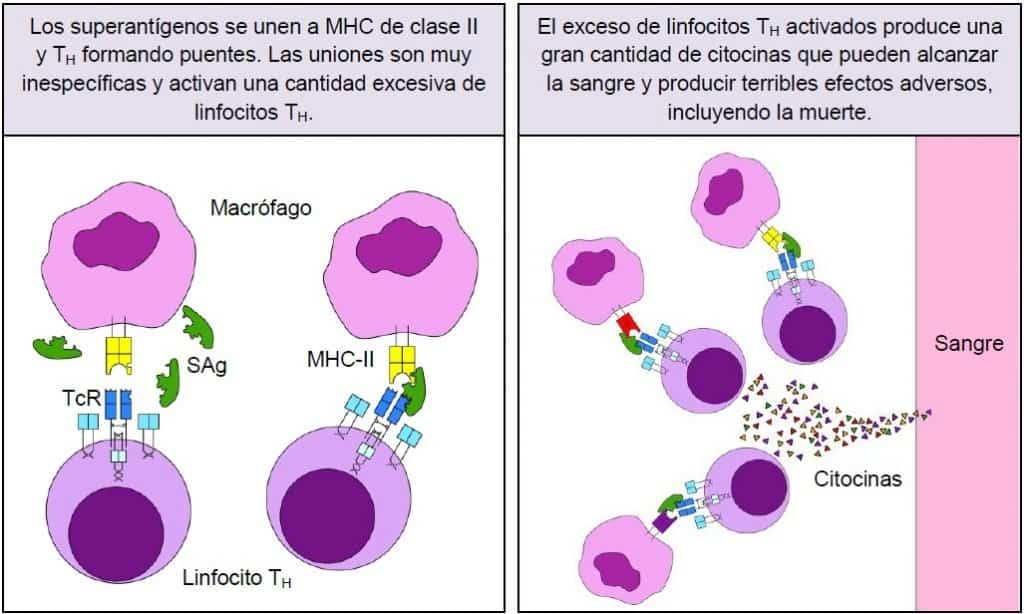
Superantigene binden an MHC-Klasse-II und an den TCR und bilden eine Brücke zwischen beiden Strukturen. Durch die Unspezifität der Bindung können Superantigene bis zu 25 % der TH-Zellen des Individuums aktivieren. Die große Menge an Zytokinen, die von den aktivierten TH-Zellen produziert wird, kann nicht lokal eingedämmt werden und gelangt in den Blutkreislauf, wo sie unerwünschte Wirkungen hervorruft.
(Mit freundlicher Genehmigung von David Pérez Torres, Universidad de Valladolid.)
Kürzlich wurde eine neue Klasse von Superantigenen beschrieben, die gezielt B-Zellen aktiviert und deren Apoptose auslöst; sie werden deshalb als B-Zell-Superantigene bezeichnet. B-Zell-Superantigene binden außerhalb der komplementaritätsbestimmenden Regionen an die FAB-Regionen der Immunglobuline. Das Protein A von Staphylococcus (SpA), das am besten untersuchte SAg dieser Klasse, reagiert mit den FAB-Regionen der meisten VH3+-Immunglobuline, die auf 30–60 % der peripheren B-Zellen des Menschen exprimiert werden. Weitere B-Zell-SAg sind gp120 des humanen Immundefizienzvirus (HIV), das Protein Fv (ein humanes Lebersialoprotein) oder das Enterotoxin D von Staphylococcus (SED).
Die Fähigkeit der B-Zell-SAg, an große Mengen von Serumimmunglobulin zu binden, verleiht ihnen potenziell gefährliche biologische Eigenschaften.
Präsentation nicht proteinartiger Antigene: das CD1-System
Es gibt zahlreiche Mechanismen, die dem Immunsystem die Fähigkeit verleihen, eine große Vielfalt von T-Zellen zu erzeugen. So kann es ein breites Spektrum von Antigenen erkennen und eine angemessene adaptive Antwort gegen Erreger mit sehr unterschiedlichen Eigenschaften organisieren. Der größte Teil des T-Zell-Repertoires erkennt antigene Peptide, die von den hochpolymorphen MHC-Molekülen präsentiert werden. Es gibt jedoch eine bedeutende Population von T-Zellen, die nicht auf von MHC präsentierte Antigene reagieren. Stattdessen bindet diese Gruppe von T-Zellen an die Moleküle einer antigenpräsentierenden Familie namens CD1.
CD1-Moleküle sind Glykoproteine vom MHC-Klasse-I-Typ, also MHC-Klasse-I-ähnlich (MHC class I-like), die auf die Bindung von Lipiden und Glykolipiden spezialisiert sind, um diese anschließend den T-Zellen zu präsentieren. Es gibt fünf CD1-Gene auf Chromosom 1, die als CD1A, CD1B, CD1C, CD1D und CD1E bezeichnet werden. Trotz des begrenzten allelischen Polymorphismus des CD1-Systems können diese Moleküle ein breites Spektrum von Lipidstrukturen binden und präsentieren, die von Erregern und sogar von fremdem Transplantatgewebe stammen.
CD1 (Abbildung 10.10) ist das erste Glykoprotein, das Thymozyten bei der Thymusdifferenzierung exprimieren. Strukturell ist es ein Heterodimer aus einer α-Kette, die drei Domänen enthält (α1, α2 und α3), an die nicht kovalent ein lösliches Protein namens β2-Mikroglobulin gebunden ist. Zwischen den Domänen α1 und α2 entsteht eine physische Grube, die die Bindung von Lipiden ermöglicht und als antigene Bindungsgrube bezeichnet wird (in Analogie zur Peptidbindungsgrube des MHC-Systems)
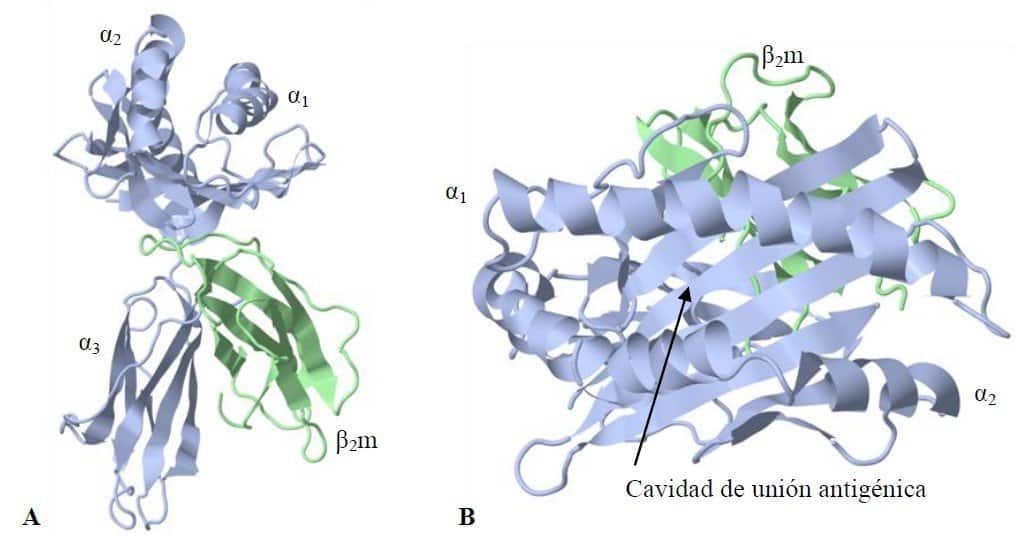
CD1 stellt eine dritte Linie antigenpräsentierender Moleküle dar, doch im Unterschied zu den MHC-Molekülen ist das präsentierte Antigen lipidartig. Die Kristallstruktur von CD1d1 der Maus, dem Gegenstück zum humanen CD1d, hat eine Konformation, die der von MHC-Klasse-I sehr ähnlich ist. (A) Beachte die strukturellen Ähnlichkeiten zwischen MHC-Klasse-I und CD1. CD1 besteht aus einer α-Kette mit drei Domänen und einem assoziierten β2-Mikroglobulin-Molekül. Wie bei den MHC-Klasse-I-Molekülen bilden die Domänen α1 und α2 die Bindungsstelle für die Antigene. (B) Dargestellt ist die antigene Bindungsgrube von CD1, die deutlich schmaler
ist als die Peptidbindungsgrube der MHC-Moleküle, aber viel tiefer und mit zwei hydrophoben Taschen. (RCSB PDB ID 1CD1)
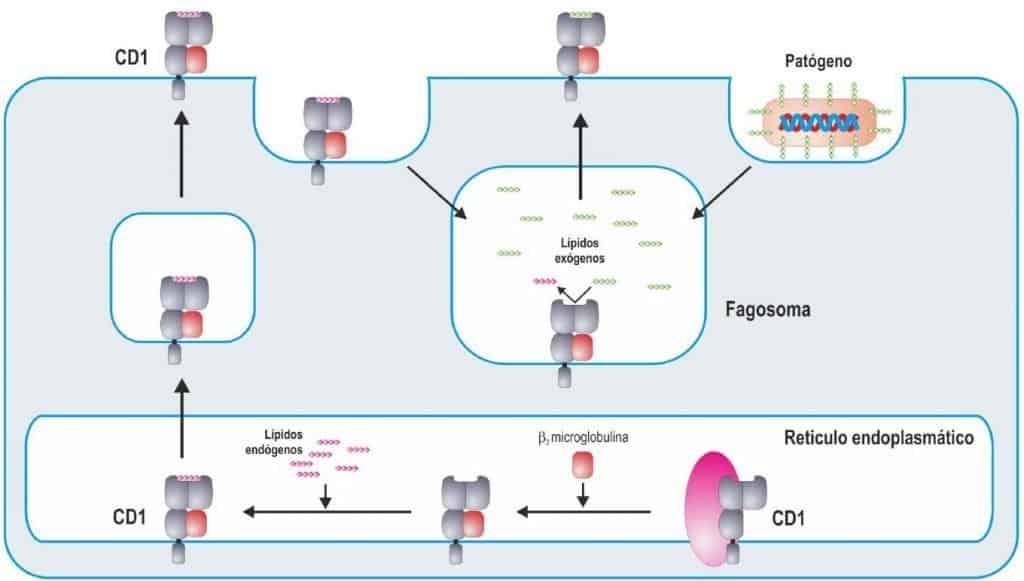
CD1-Moleküle werden im rauen endoplasmatischen Retikulum synthetisiert und durchlaufen anschließend einen Reifungsprozess, der dem der MHC-Klasse-I-Moleküle ähnelt (Abbildung 10.11). Die α-Ketten werden von Glykosidasen des endoplasmatischen Retikulums glykosyliert, und ihre Faltung wird von Chaperonen wie Calnexin, Calreticulin und ERp57 vermittelt. Die anschließende Bindung des β2-Mikroglobulins stabilisiert den Komplex und ist bei den meisten Molekülen der Familie eine unverzichtbare Voraussetzung dafür, dass CD1 an der Zelloberfläche exprimiert wird.
(A) Konventionelle Antigene werden den T-Zellen auf MHC-Klasse-
II-Molekülen präsentiert. Die Erkennung zwischen MHC, Peptid und TCR aktiviert die erforderliche Anzahl antigenspezifischer TH-Zellen. (B) Superantigene können Brücken zwischen den konstanten Regionen der MHC-Klasse-II-Moleküle und des TCR bilden. Es findet keine spezifische Erkennung zwischen Superantigen, MHC und TCR statt, wodurch eine übermäßige Zahl von TH-Zellen aktiviert wird, was in eine für den Organismus gefährliche Reaktion mündet. (Übernommen aus Regueiro J.R.,
López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
CD1-Moleküle werden ausschließlich auf professionellen antigenpräsentierenden Zellen exprimiert, insbesondere auf dendritischen Zellen und Makrophagen. CD1-Moleküle präsentieren Glykolipidantigene den T-Zellen, allerdings nicht den konventionellen, sondern den doppelt negativen (CD4– CD8–). CD1d, das zusätzlich im Darmepithel exprimiert wird, präsentiert seine Antigene einem besonderen Zelltyp, den sogenannten NKT-Zellen; diese tragen die charakteristischen Marker der NK-Zellen, sind aber ein spezialisierter Typ von T-Zellen mit zytotoxischer Funktion und der Fähigkeit, Zytokine zu synthetisieren.
Man nimmt an, dass das CD1-System das HLA-System ergänzt: Während die HLA-Moleküle eine Auswahl der Peptide aus dem Zellinneren präsentieren, präsentieren die CD1-Moleküle Lipide. Eine gesunde Zelle präsentiert so nur körpereigene Lipide, eine infizierte Zelle kann dagegen mikrobielle Lipide präsentieren, die dann von T-Zellen erkannt werden können.
Die Lipidvielfalt der Lebewesen ist viel geringer als die der Proteine oder Peptide; deshalb sind die CD1-Moleküle nicht polymorph, da sie darauf ausgelegt sind, eine begrenzte und klar definierte Zahl von Lipiden aufzunehmen.