Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Der Weg der MHC-Klasse-II-Moleküle
MHC-Klasse-II-Moleküle sind Heterodimere aus einer α-Kette und einer β-Kette, die nicht kovalent miteinander verbunden sind. Beide Ketten werden unabhängig voneinander im endoplasmatischen Retikulum synthetisiert. Zusammen mit ihnen wird ein Protein der invarianten Kette (I) synthetisiert, auch CD74 genannt, das das Heterodimer stabilisiert und die Peptidbindungsgrube verschließt.
Auf diesem Präsentationsweg wird der Erreger von einer professionellen antigenpräsentierenden Zelle durch Phagozytose aufgenommen und in ein Endosom (Phagosom) internalisiert. Das Phagosom, in das der Erreger eingeschlossen wurde, verschmilzt mit einem primären Lysosom, das mit hydrolytischen Enzymen und Proteasen (Cathepsinen) beladen ist. Aus der Verschmelzung beider entsteht ein sekundäres Lysosom oder Phagolysosom, in dem nach dem Abbau des Erregers antigene Peptide unterschiedlicher Länge und Sequenz auftreten. Die Phagolysosomen entleeren ihren Inhalt in ein Endosom, das nur in professionellen antigenpräsentierenden Zellen vorkommt und als Peptidbeladungskompartiment bezeichnet wird (Abbildung 10.3, rote Pfeile).
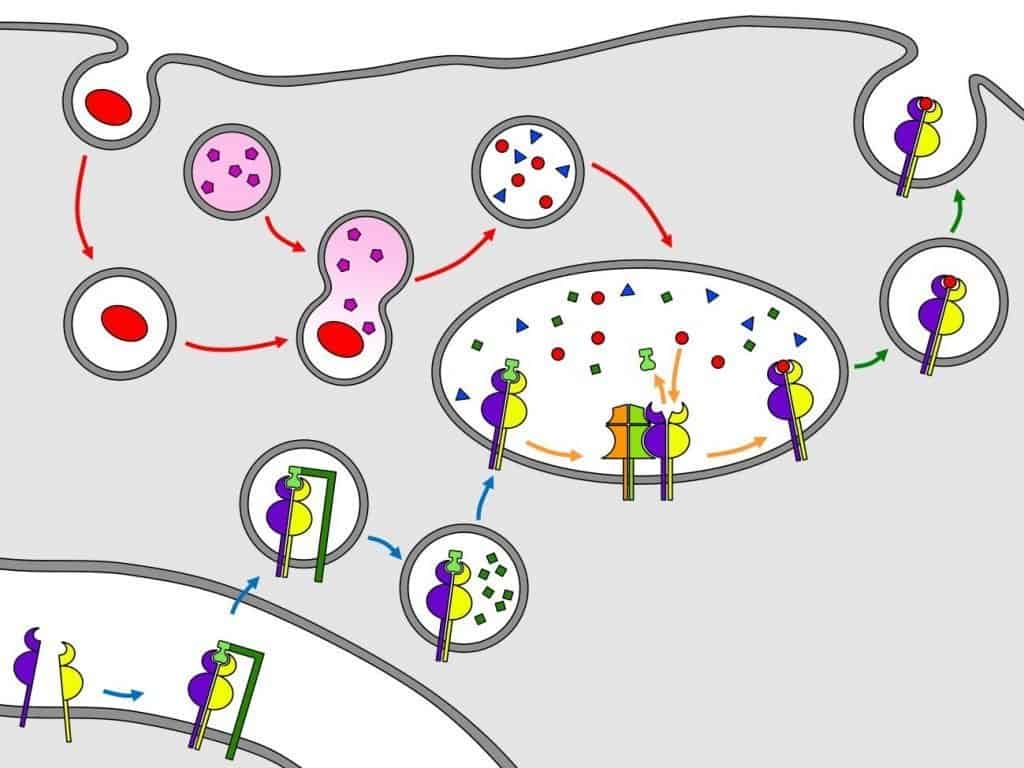
Extrazelluläre Antigene werden in einem Phagolysosom abgebaut und in das Peptidbeladungskompartiment geschickt. Die im endoplasmatischen Retikulum synthetisierten MHC-Klasse-II-Moleküle sind sehr instabil und binden deshalb an CD74. An CD74 gebundenes MHC-Klasse-II gelangt in das Peptidbeladungskompartiment; auf dem Weg dorthin wird CD74 bis auf einen als CLIP bezeichneten Abschnitt hydrolysiert, der die Peptidbindungsgrube verschließt. Im Peptidbeladungskompartiment ermöglicht HLA-DM den Austritt von CLIP und den Eintritt eines der antigenen Peptide in das MHC-Klasse-II-Molekül. Das MHC-Klasse-II-Molekül mit seinem Peptid wird zum Golgi-Apparat geschickt, wo es glykosyliert wird. Schließlich wird das MHC-Klasse-II-Molekül mit seinem Peptid zur Oberfläche der professionellen antigenpräsentierenden Zelle transportiert. (Mit freundlicher Genehmigung von David Pérez
Torres, Universidad de Valladolid.)
Die von CD74 verschlossenen MHC-Klasse-II-Moleküle wandern vom endoplasmatischen Retikulum in das Peptidbeladungskompartiment, ein Organell, das nur in professionellen antigenpräsentierenden Zellen vorkommt. Während der Wanderung wird CD74 bis auf den Abschnitt hydrolysiert, der die Peptidbindungsgrube verschließt und als CLIP bezeichnet wird (Abbildung 10.3, blaue Pfeile).
Im Peptidbeladungskompartiment finden sich antigene Peptide aus den Phagolysosomen sowie MHC-Klasse-II-Moleküle, die von CLIP verschlossen sind. Damit sich Antigen-MHC-Klasse-II-Komplexe bilden können, ist HLA-DM erforderlich, ein Molekül, das als Peptidaustauscher wirkt: Es entfernt CLIP und legt die Peptidbindungsgrube des MHC-Klasse-II-Moleküls frei, sodass die antigenen Peptide binden können. HLA-DM-Moleküle unterscheiden sich von den MHC-Klasse-II-Molekülen dadurch, dass sie nicht polymorph sind, sich nicht mit der invarianten Kette (I) (CD74) verbinden und nicht an der Zelloberfläche exprimiert werden (Abbildung 10.3, orangefarbene Pfeile).
Wenn eines der antigenen Peptide an die Peptidbindungsgrube bindet, für die es spezifisch ist, schließt MHC-Klasse-II seine Faltung ab und wandert zum Golgi-Apparat, wo es glykosyliert wird. Nach den notwendigen Modifikationen wird es in einem Exozytosevesikel zur Membran der professionellen antigenpräsentierenden Zelle transportiert (Abbildung 10.3, grüne Pfeile). Das in der Peptidbindungsgrube des MHC-Proteins liegende Peptid wird einem T-Zell-Rezeptor präsentiert, der das Peptid und die MHC-Ketten gleichzeitig erkennt. Werden nicht beide Strukturen gleichzeitig erkannt, kommt es nicht zur Aktivierung der T-Zelle.