Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Die Präsentation des Antigens an T-Zellen: Grundlagen
Damit Antigene von den TCR der T-Zellen erkannt werden können, sind zwei aufeinanderfolgende Phasen erforderlich:
- Antigenprozessierung: Dabei wird das Proteinantigen durch intrazelluläre Verdauungsmechanismen zu Peptiden abgebaut.
- Präsentation des prozessierten Antigens: Dabei werden einige der zuvor entstandenen Peptide an die Peptidbindungsgrube von Molekülen gebunden, die von Genen des Haupthistokompatibilitätskomplexes (MHC) kodiert werden.
Die Erreger können intrazellulär oder extrazellulär vorkommen (Abbildung 10.1). Im ersten Fall wird das Antigen über den zytosolischen Weg präsentiert, an dem TC-Zellen und MHC-Klasse-I-Moleküle beteiligt sind; im zweiten Fall wird es über den endozytischen Weg präsentiert, für den die Phagozytose des Antigens sowie TH-Zellen und MHC-Klasse-II-Moleküle erforderlich sind (Tabelle 10.1).
Die meisten Antigene können über die beiden genannten Wege an T-Zellen präsentiert werden; einige entgehen jedoch diesen Wegen, etwa die Lipidantigene.
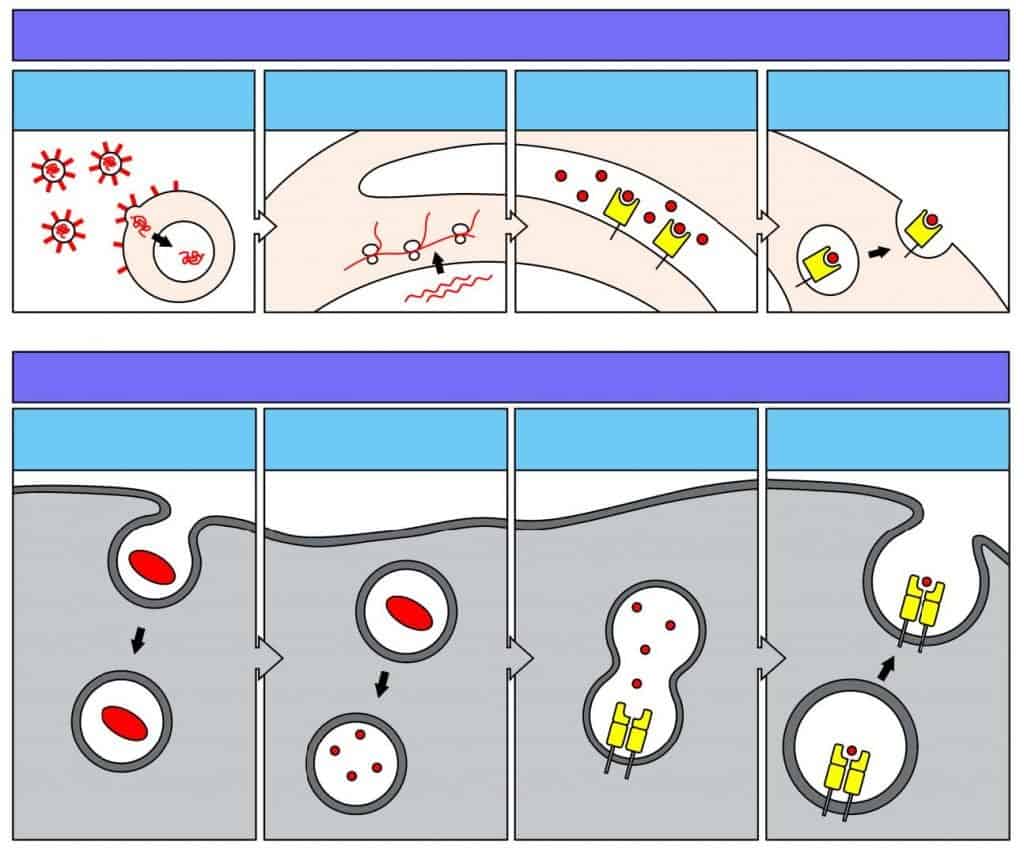
Je nach Herkunft können Antigene über zwei Wege präsentiert werden. Intrazelluläre Antigene, etwa das Erbgut eines Virus, werden über den zytosolischen Weg auf MHC-Klasse-I-Molekülen an der Oberfläche präsentiert. Extrazelluläre Antigene, etwa ein Bakterium oder seine Überreste, werden über den endozytischen Weg auf MHC-Klasse-II-Molekülen an der Oberfläche präsentiert. (Umgezeichnet nach Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland
Science, New York.)
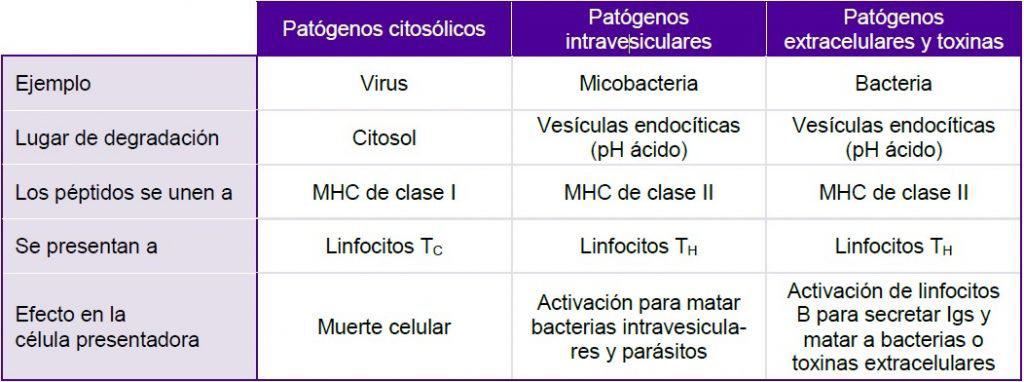
Die Tabelle fasst die Merkmale der Prozessierung und Präsentation verschiedener Erreger zusammen.
(Verändert nach Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Der Weg der MHC-Klasse-I-Moleküle
MHC-Klasse-I-Moleküle bestehen aus einer α-Kette, an die ein lösliches Protein namens β2-Mikroglobulin gebunden ist; beide werden unabhängig voneinander im endoplasmatischen Retikulum synthetisiert. Das MHC-Klasse-I-Protein ist während seiner Faltung im endoplasmatischen Retikulum sehr instabil und bindet deshalb an Chaperone.
Zu Beginn der Faltung bindet die α-Kette an ein Chaperon namens Calnexin. Für die anschließende Bindung des β2-Mikroglobulins an die α-Kette muss das Calnexin durch Calreticulin ersetzt werden. Dieser Komplex lagert sich an Tapasin an und nähert sich einem Heterodimer aus TAP-1 und TAP-2. Die Aufgabe des TAP-Komplexes ist es, Peptide unter ATP-Verbrauch aus dem Zytosol in das Lumen des endoplasmatischen Retikulums zu transportieren.
Virale Proteine werden im Zytosol vom Proteasom zu Peptiden unterschiedlicher Länge und Sequenz abgebaut. Das Proteasom ist ein Multienzymkomplex aus vier gestapelten Ringen, in dessen Inneren sich Untereinheiten mit proteolytischer Aktivität befinden, die als LMP bezeichnet werden. Diese Untereinheiten werden zusammen mit TAP-1 und TAP-2 von Genen kodiert, die in der Klasse-II-Region des MHC liegen.
Sobald sich die Peptide im Lumen des Retikulums befinden, werden sie zufällig in die Peptidbindungsgrube der MHC-Klasse-I-Moleküle eingepasst, bis sie die passende Bindungsstelle gefunden haben. Dann schließt das MHC-Klasse-I-Molekül seine Faltung ab und wird zum Golgi-Apparat transportiert, wo es glykosyliert wird.
Nach den entsprechenden Modifikationen im Golgi-Apparat wird der Peptid-MHC-Komplex in einem Exozytosevesikel an die Zelloberfläche abgegeben und dort verankert, bis er vom TCR einer TC-Zelle erkannt wird (Abbildung 10.2).
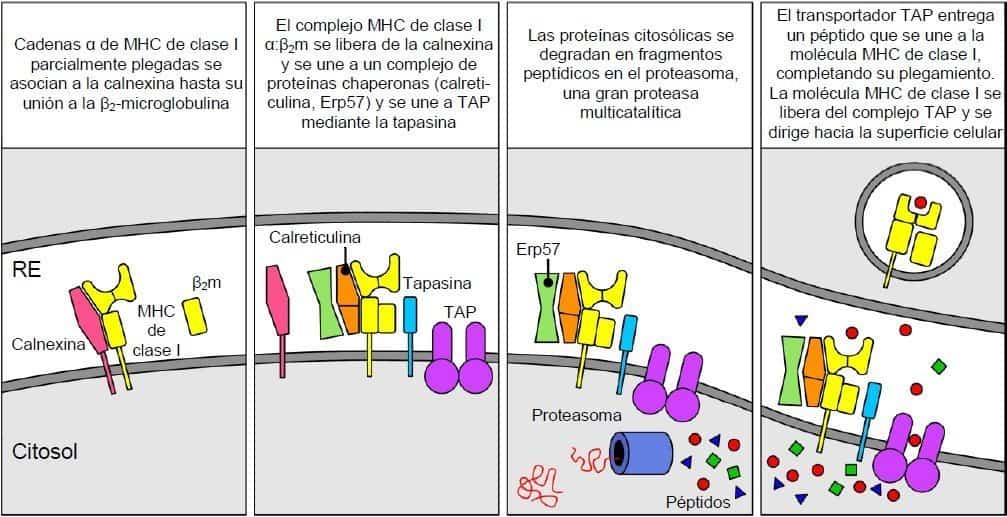
Beachte, dass MHC-Klasse-I-Moleküle das endoplasmatische Retikulum (ER) erst verlassen, wenn sie ein Peptid gebunden haben. Sobald das Peptid an das MHC-Molekül gebunden ist, verlässt der Peptid-MHC-Komplex das Retikulum und wird zum Golgi-Apparat geschickt, wo er weiter modifiziert werden kann. Anschließend wird der Komplex zur Zelloberfläche transportiert. (Umgezeichnet und verändert nach Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)