Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
HLA-Antigene der Klasse I
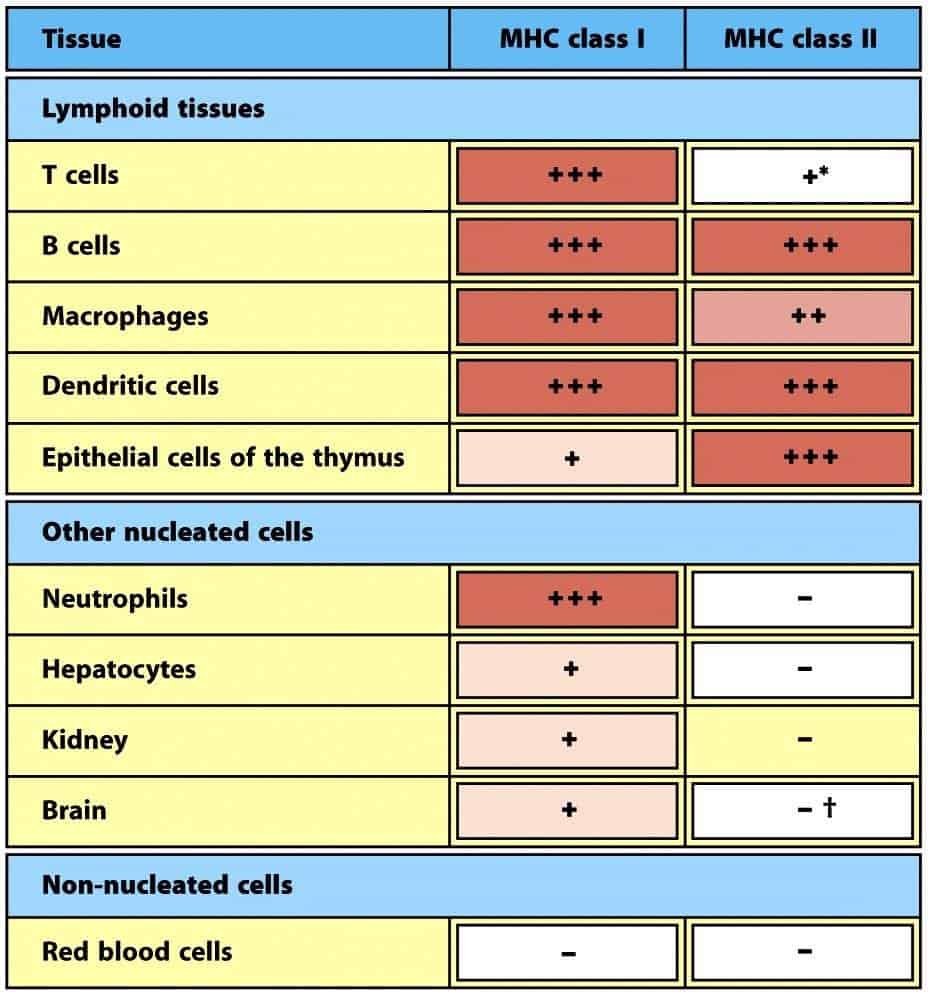
Auf dem menschlichen Chromosom 6 liegen mehrere, sehr polymorphe Gene, die für die klassischen HLA-Antigene der Klasse I codieren: HLA-A, -B und -C. Die Funktion dieser drei Proteine ist die Präsentation von Peptiden an Tc-Zellen, und ihre Struktur ist sehr ähnlich. HLA-Antigene der Klasse I werden auf allen Zellen des Organismus exprimiert, mit Ausnahme der Erythrozyten (Abbildung 9.7). Die HLA-I-Proteine sind Heterodimere, die aus Folgendem bestehen (Abbildung 9.3):
- Eine schwere Kette oder α-Kette, ein Transmembran-Glykoprotein von etwa 45 kD und 300 Aminosäuren. Die α-Kette hat 3 Domänen. Die Domänen α1 und α2 am N-terminalen Ende bilden durch ihre besondere Faltung eine Tasche oder Höhlung (einen physischen Hohlraum) zur Peptidbindung. Die Domäne α3 ist vom Immunglobulin-Typ und verankert das HLA-Antigen der Klasse I in der Plasmamembran.
- Ein assoziiertes, nicht kovalent gebundenes lösliches Protein, das β2-Mikroglobulin genannt wird, mit einer einzigen Domäne (vom Immunglobulin-Typ) und außerhalb des HLA-Systems codiert.
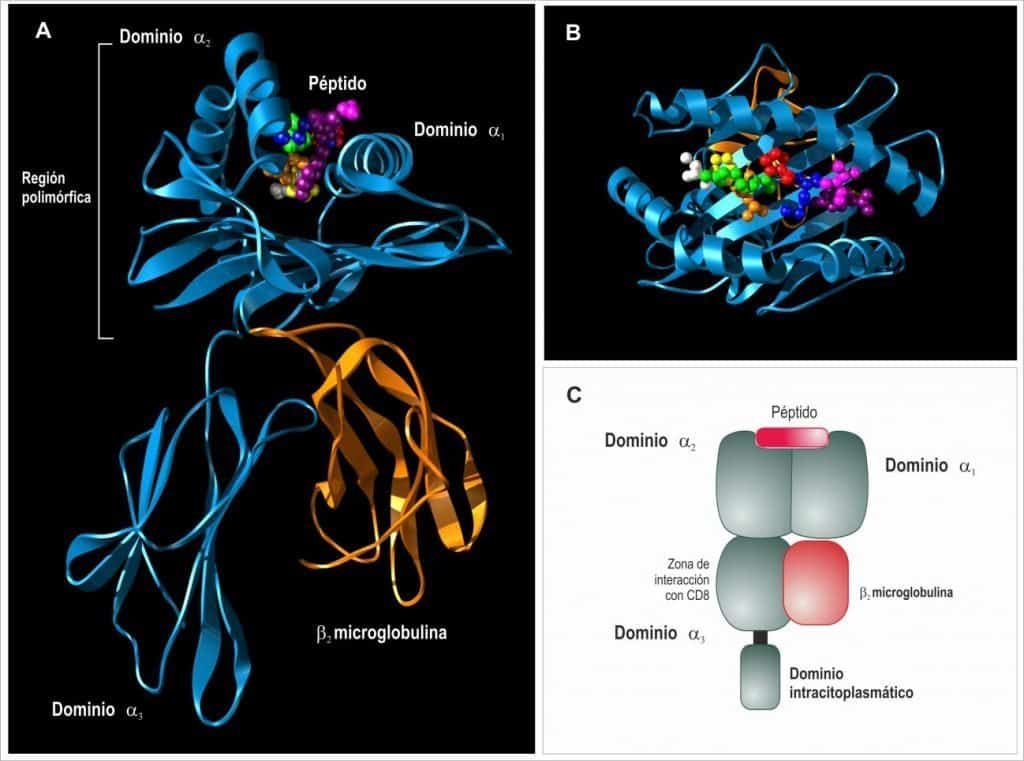
(A) Die Klasse-I-Moleküle bestehen aus einer Transmembrankette, der α-Kette, die in ihrem extrazellulären Anteil nicht kovalent an ein kleines Protein, das β2-Mikroglobulin, gebunden ist. (B) Die Domänen α1 und α2 bilden eine peptidbindende Region, die Peptidbindungsfurche, die mit dem TCRαβ interagiert. (C) Die Domäne α3 interagiert an der angegebenen Stelle mit dem Korezeptor CD8. (Übernommen aus Regueiro J.R., López C., González S. & Martínez E.
(2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
Peptidbindungstasche
Die Peptidbindungstasche wird von den Domänen α1 und α2 gebildet, die sich zu antiparallelen β-Faltblättern falten und so eine flache Basis bilden, auf der zwei α-Helix-Strukturen ruhen.
Damit ein HLA-Protein der Klasse I an der Zelloberfläche exprimiert werden kann, muss die Peptidbindungstasche von einem antigenen Peptid besetzt sein. Ist diese Tasche nicht besetzt, kann das Protein nicht exprimiert werden. Als man begann, diese Proteine zu untersuchen und sie isolierte, reinigte und kristallisierte, um ihre Struktur zu analysieren, hielt man die Kristalle für unbrauchbar, weil sie immer durch ein Peptid „verunreinigt“ waren. Später erkannte man, dass es sich nicht um eine Verunreinigung handelte, sondern dass das Peptid Teil der vollständigen Proteinstruktur ist.
HLA-Restriktion
Die Antigenerkennung durch T-Zellen unterliegt der Restriktion durch das HLA-System. Der spezifische Antigenrezeptor der T-Zellen (TCR, T-cell receptor) erkennt den Komplex aus HLA und antigenem Peptid. Damit sich T-Zelle und infizierte Zelle verbinden, muss der TCR daher sowohl das präsentierende HLA-Protein als auch das Peptid erkennen, das dieses
in seiner Tasche trägt; sind diese beiden Bedingungen nicht erfüllt, kommt die Bindung nicht zustande. Diese kombinierte Erkennung von Peptid und HLA-Molekül nennt man HLA-Restriktion, weil die Fähigkeit der T-Zelle, das Antigen zu erkennen, dadurch eingeschränkt wird. Das erklärt die außerordentlich hohe Spezifität der T-Zellen.
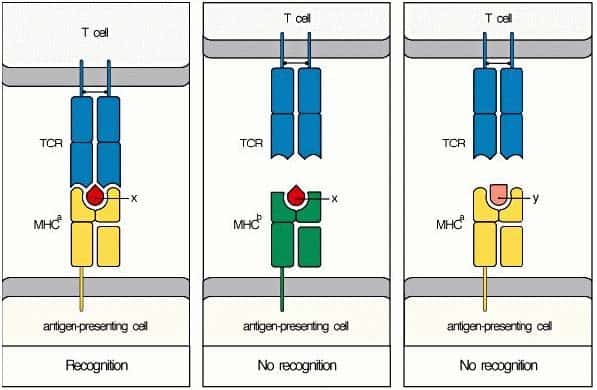
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
HLA-Antigene der Klasse II
Die HLA-Antigene der Klasse II sind Heterodimere aus zwei Glykoproteinen, die von Genen der Klasse-II-Region des MHC codiert werden, die auf dem kurzen Arm von Chromosom 6 liegt. Die schwere α-Kette (34 kD) wird von den A-Genen codiert und die leichte β-Kette (29 kD) von den B-Genen (Abbildung 9.5). Beide Ketten sind Transmembranproteine und verbinden sich nach ihrer unabhängigen Synthese im rauen endoplasmatischen Retikulum über nicht kovalente Bindungen.
Für jedes der verschiedenen HLA-Antigene der Klasse II (HLA-DP, HLA-DQ und HLA-DR) gibt es ein A-Gen und ein B-Gen. Eine Ausnahme von dieser Regel bilden die HLA-DR-Proteine, deren System komplexer ist, da auf den verschiedenen Chromosomen 6 mindestens 3 HLA-DRB-Gene vorhanden sind. So werden mehrere Loci der Klasse II exprimiert (beim Menschen bis zu 8) (Abbildung 9.6):
- DPA1, DPB1
- DQA1, DQB1
- DRA, DRB1, DRB2, DRB4
Die HLA-Antigene der Klasse II werden konstitutiv auf professionellen antigenpräsentierenden Zellen (APZ) und auf Stromazellen des Thymus exprimiert (Abbildung 9.7).
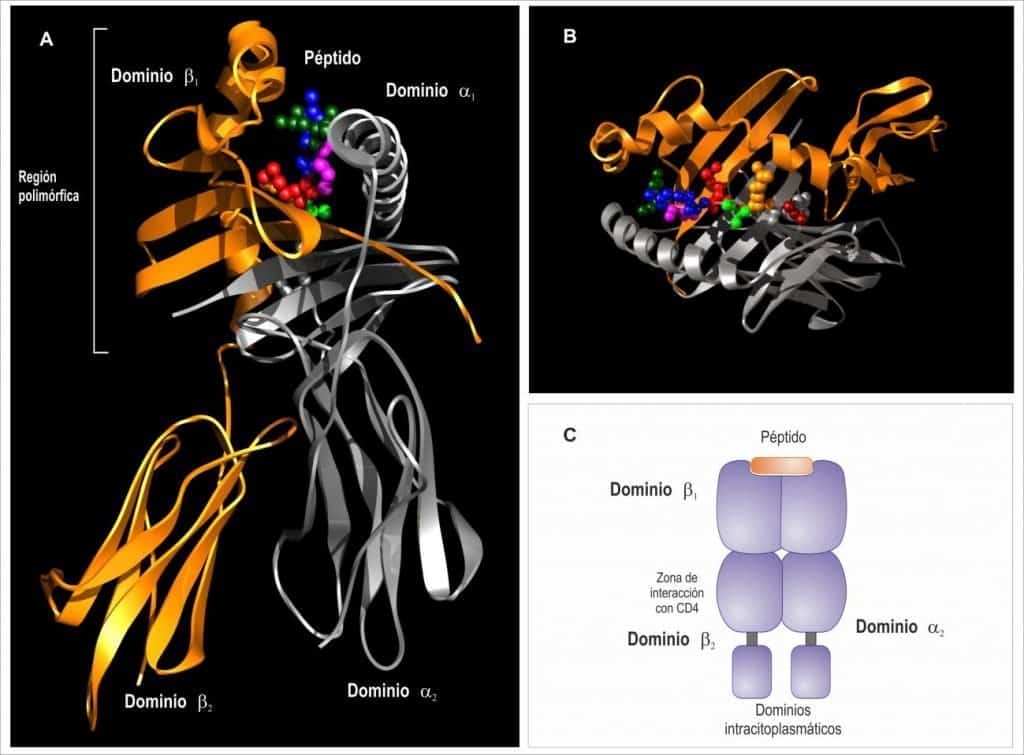
(A) Die Klasse-II-Moleküle bestehen aus zwei sehr ähnlichen Transmembranketten, der α- und der β-Kette. (B) Die Domänen α1 und β1 bilden eine peptidbindende Region, die Peptidbindungsfurche, die mit dem TCRαβ interagiert. (C) Die Domäne β2 interagiert an der angegebenen Stelle mit dem Korezeptor CD4. (Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial
Médica Panamericana, Madrid.)
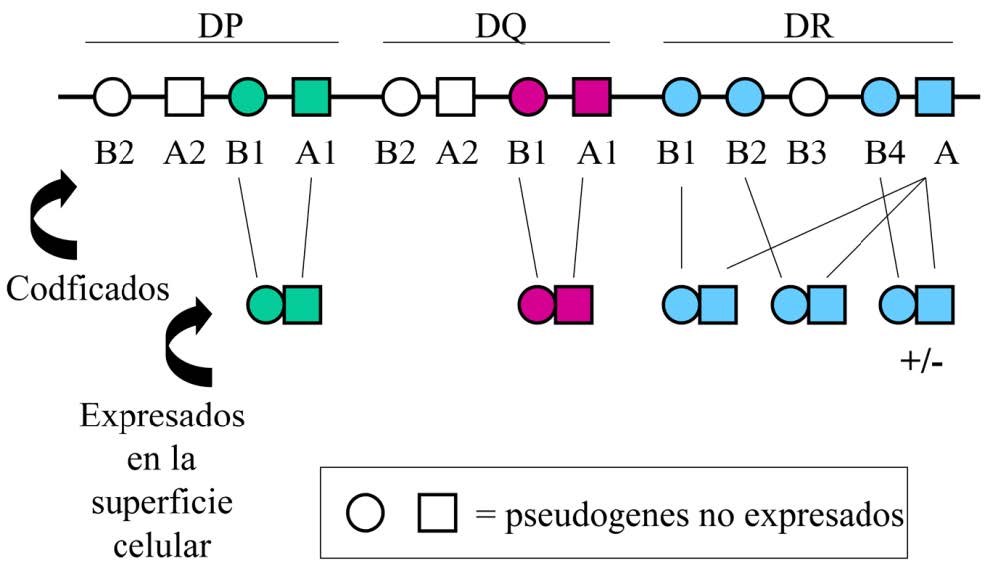
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Außerdem können sie auf anderen Zelltypen wie dem Gefäßendothel oder Fibroblasten unter dem Einfluss bestimmter Signale wie IFN-γ induzierbar exprimiert werden (Abbildung 9.7). Ihre Expression ist daher viel stärker eingeschränkt als die der HLA-I-Antigene. Ihre Funktion besteht darin, exogene Antigene, die den endozytischen Weg durchlaufen haben, den T-Helferzellen zu zeigen und diese zu aktivieren. Diese Zellen bilden Zytokine, die auf verschiedene Zielzellen wirken.
Wie die HLA-Antigene der Klasse I sind auch die HLA-Antigene der Klasse II sehr polymorph. Das HLA-System ist daher ein komplexes Gensystem mit mehreren Loci und jeweils vielen verschiedenen Allelen. Alle Gene sind hochgradig polymorph, mit Ausnahme von HLA-DRA, das nur ein einziges Allel hat. Das folgende Bild zeigt die verschiedenen Gene für HLA-Antigene der Klasse II. Beachte, dass die Gene in manchen Fällen nicht funktionsfähig sind (Pseudogene) (Abbildung 9.6). Diese Eigenschaften (Polygenie und hoher Polymorphismus) ermöglichen es den APZ, auf ihrer Oberfläche eine große Vielfalt an HLA-Molekülen der Klasse II zu exprimieren, wodurch sie den T-Helferzellen eine große Zahl verschiedener Peptide präsentieren können.
Jede der Ketten der Klasse-II-Antigene besteht aus zwei Domänen (Abbildung 9.5):
- Die membrannahen Domänen (α2 und β2) haben eine charakteristische Faltung und gehören zur Immunglobulin-Superfamilie.
- Die membranfernen Domänen (α1 und β1) bilden durch ihre Faltung einen physischen Hohlraum zur Peptidbindung.
Das Banddiagramm zeigt, dass die Domänen α1 und β1 eine Peptidbindungshöhle bzw. -tasche auf dieselbe Weise bilden wie bei den HLA-I-Molekülen, nur dass diese Struktur hier aus 2 verschiedenen, nicht kovalent verbundenen Proteinen besteht. Dazu falten sich die Domänen α1 und β1 zu einem flachen Bereich aus antiparallelen β-Faltblättern, auf denen zwei α-Helices ruhen (je eine von jedem Protein). Wie bei den Klasse-I-Molekülen können die HLA-Proteine der Klasse II nicht an der Oberfläche exprimiert werden, wenn diese Tasche bzw. dieser physische Hohlraum nicht mit einem antigenen Peptid besetzt ist. Der wichtigste Unterschied zu den HLA-Antigenen der Klasse I besteht darin, dass die Tasche bei den HLA-Molekülen der Klasse II flexibler ist, da sie aus zwei Proteinen besteht; bei den Ag der Klasse I ist sie eine starrere Struktur, da sie aus nur einem Protein besteht. Das bestimmt, welche Art von Peptid an jedes der beiden Moleküle binden kann.