Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Nomenklatur des HLA-Systems
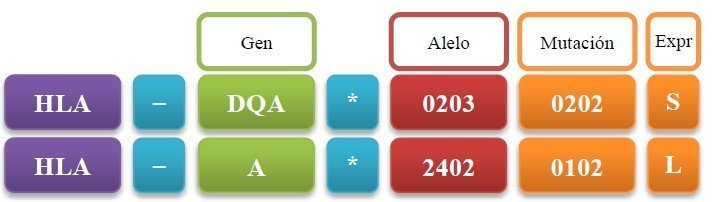
Die Nomenklatur der Antigene des HLA-Systems ist standardisiert. Der Name beginnt mit dem Kürzel HLA gefolgt von einem Bindestrich. Anschließend wird das Gen, auf das man sich bezieht, durch den Buchstaben angegeben, der es als Gen der Klasse I (A, B, C, D, E, F, G) oder der Klasse II (DP, DQ, DR) kennzeichnet. Bei der Klasse II muss angegeben werden, ob es sich um ein Gen handelt, das für die α-Kette (A) oder die β-Kette (B) codiert. Gibt es für diese Kette mehrere Gene, wie bei DRB, muss die Nummer des Gens angegeben werden. Nach der Angabe des Gens folgt ein Sternchen und danach das Allel dieses Gens, das auf dem Chromosom der Person vorhanden ist (Abbildung 9.8).
Das Allel wird mit einem System aus mindestens vier Ziffern genau bezeichnet. Die erste und zweite Ziffer geben die Allelgruppe an. Die dritte und vierte Ziffer geben das konkrete Allel innerhalb dieser Gruppe an. Das System kann durch Ziffern ergänzt werden, die weitere Informationen liefern: Die fünfte und sechste Ziffer zeigen Mutationen in Exons an, die siebte und achte Ziffer Mutationen in Introns. Schließlich kann ein Großbuchstabe (L, N, Q, S) angehängt werden, der das Expressionsniveau des Proteins angibt.
Zum Beispiel bezeichnet das Gen HLA-DRB3*0202 das Gen, das für die β-Kette vom Typ drei eines HLA-Antigens der Klasse II vom Typ DR codiert; genauer das zweite Allel der zweiten Gruppe dieses Gens.
Mechanismen der Variabilität
Eine Reihe von Variabilitätsmechanismen sorgt dafür, dass es äußerst schwierig ist, in der Bevölkerung zwei Personen zu finden, deren Zellen dieselbe Zusammenstellung von HLA-Antigenen exprimieren. Diese Mechanismen sind die Polygenie, die Kodominanz, der Polymorphismus und die Komplementation.
Alle diese Mechanismen machen die Kombination der Antigene jedes Einzelnen zu einem sehr zuverlässigen Identifikationsmerkmal, wobei die Fehlerwahrscheinlichkeit in der Größenordnung von 1/106 liegt. Unsere Zellen tragen so viele und so verschiedene HLA-Antigene auf ihrer Oberfläche, damit eine möglichst große Zahl verschiedener antigener Peptide präsentiert werden kann und sichergestellt ist, dass wir T-Zellen mit einem passenden TCR haben. Außerdem ist zu berücksichtigen, dass alle diese Gene sehr nah beieinander liegen, in einer Region von 1 cM auf dem kurzen Arm von Chromosom 6. Dadurch ist die Rekombinationsrate sehr niedrig, und folglich werden diese Gene tendenziell im Block vererbt und bilden den sogenannten HLA-Haplotyp. Zusammen mit der bereits erklärten großen Variabilität macht das die Analyse der HLA-Antigene für verschiedene Identifikationstests, etwa Vaterschaftstests, sehr nützlich.
Polygenie
Die Polygenie, also das Vorhandensein mehrerer verschiedener Gene mit denselben Funktionen, sorgt dafür, dass jeder Mensch eine große Vielfalt an HLA-Molekülen bildet. Zum Beispiel haben die Moleküle HLA-A, B und C dieselbe Funktion, und dennoch werden sie alle in jeder unserer kernhaltigen Zellen synthetisiert (Abbildung 9.9).
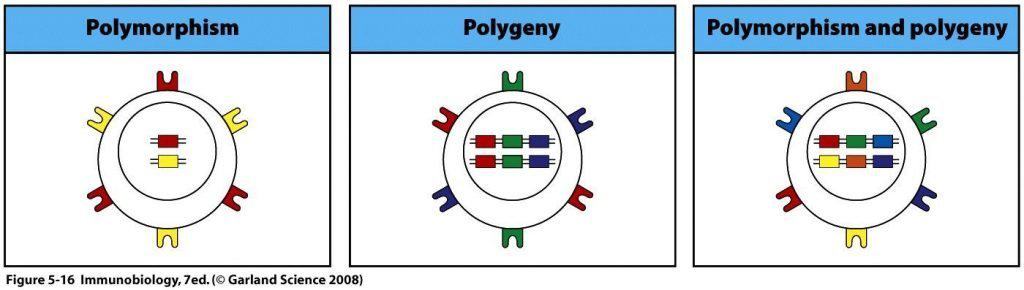
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Kodominanz
Die Gene beider Chromosomen werden exprimiert. Daher finden sich in der Zellmembran sowohl die von der Mutter als auch die vom Vater geerbten HLA-Antigene (Abbildung 9.10). Polygenie und Kodominanz führen dazu, dass jede kernhaltige Zelle des Organismus bis zu sechs verschiedene HLA-Antigene der Klasse I präsentieren kann: A, B und C vom Vater geerbt und A, B und C von der Mutter geerbt.
Polymorphismus
Die Gene, die für die HLA-Antigene codieren, haben eine große Zahl verschiedener Allele. Es gibt also für jedes der Gene viele verschiedene Formen (viele Formen von A, viele Formen von B und viele Formen von C bei den HLA der Klasse I), und jeder von uns exprimiert in seinen Zellen zwei dieser Formen, eine mütterlicher und eine väterlicher Herkunft.
Die Gene des HLA-Systems lassen sich nach ihrem Polymorphiegrad ordnen (Abbildung 9.11):
- HLA der Klasse I: HLA-B > HLA-A > HLA-C.
- HLA der Klasse II: HLA-DRB > HLA-DP > HLA-DQ. Innerhalb der HLA-DRB ist HLA-DRB1 das polymorphste.
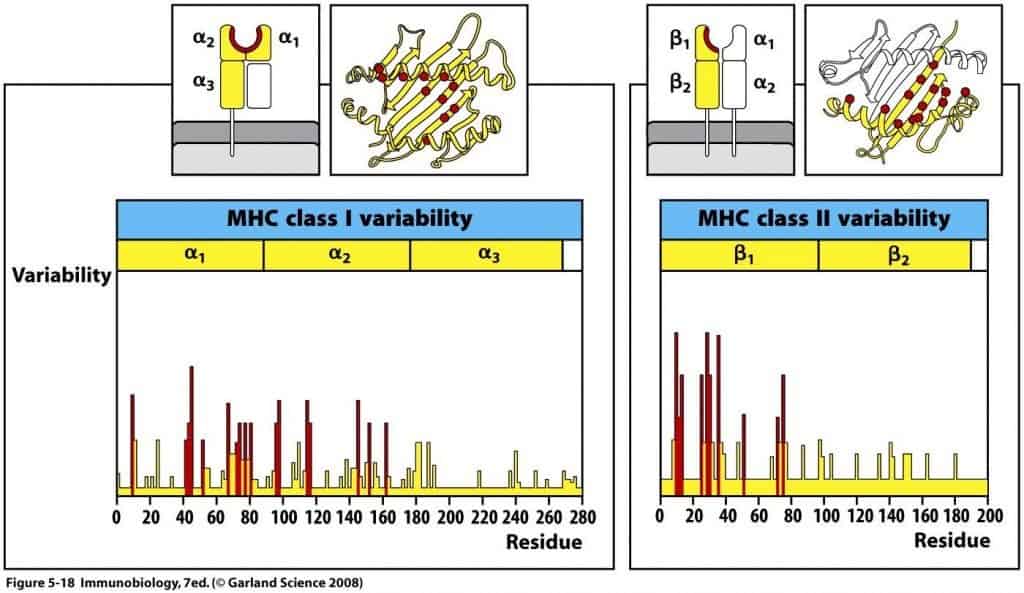
Diese Variabilität ist nicht gleichmäßig über das ganze Gen verteilt, sondern konzentriert sich auf hypervariable Regionen, die mit den Aminosäuren der Peptidbindungstasche übereinstimmen (Abbildung 9.12).
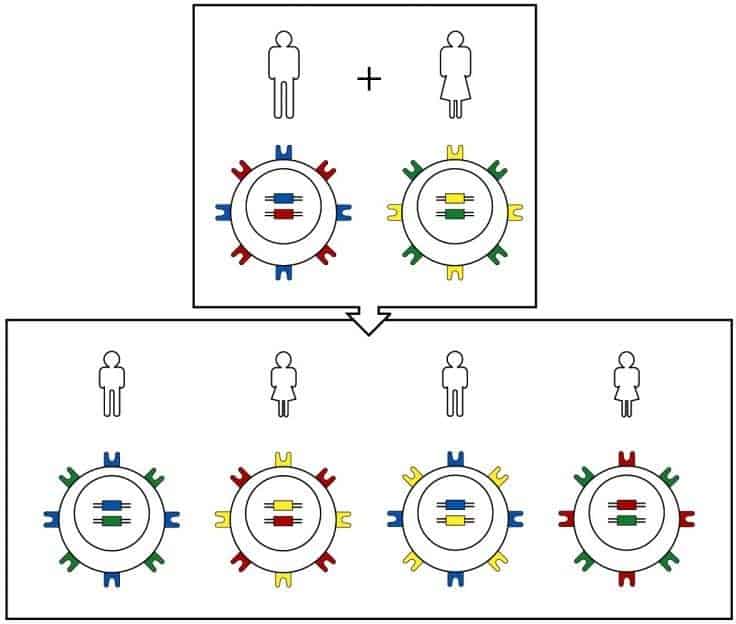
Der MHC ist so polymorph, dass fast alle Individuen für jeden Locus wahrscheinlich heterozygot sind. Bei einem Individuum werden die Allele beider MHC-Haplotypen exprimiert, und ihre Expression zeigt sich im Vorhandensein ihrer Produkte an der Zelloberfläche. (Übernommen aus Murphy
K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
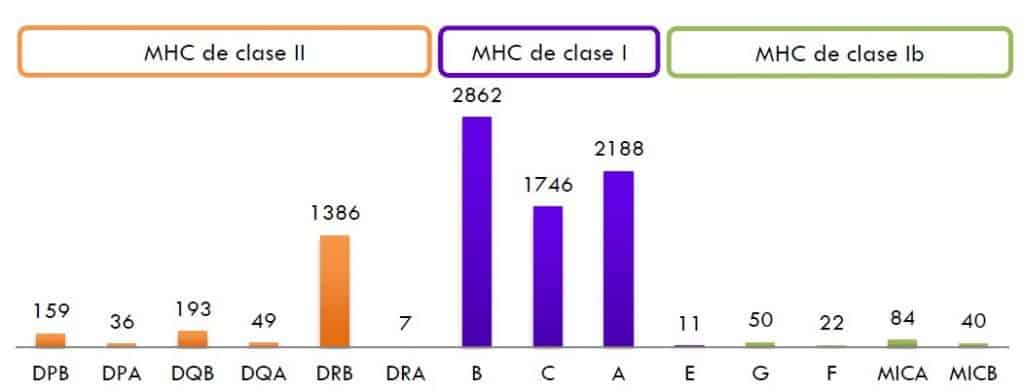
Die Grafik zeigt die Zahl der bekannten Allele für jeden HLA-Locus. Die polymorphsten Loci sind HLA-B und HLA-DRB. Die angegebenen Zahlen sind lediglich Richtwerte, da ständig neue Allele entdeckt werden. Die Höhe der Balken entspricht der Zahl der Allele des HLA-Systems, die vom WHO Nomenclature Committee for Factors of the HLA System vergeben wurden (Stand: Januar 2013).
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Komplementation
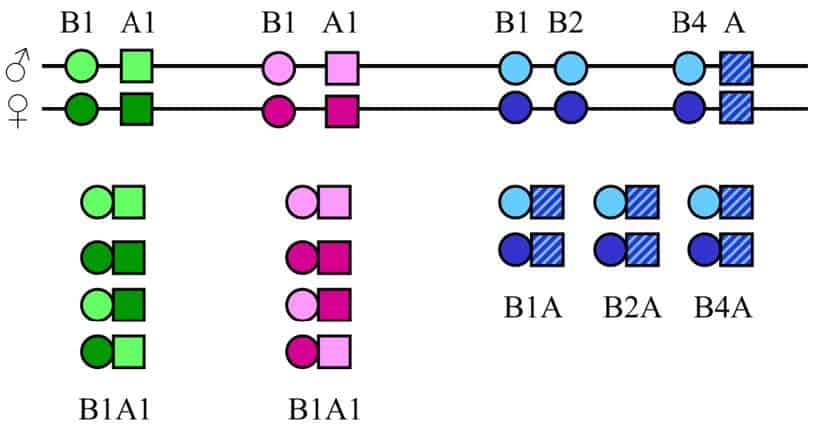
Es gibt einen letzten Variabilitätsmechanismus, der nur bei den HLA-Antigenen der Klasse II vorkommt und Komplementation genannt wird (Abbildung 9.13). Die HLA-Moleküle der Klasse II bestehen aus einer schweren β-Kette und einer schweren α-Kette, die unabhängig voneinander im endoplasmatischen Retikulum synthetisiert werden. Dadurch erfolgt die Verbindung einer α-Kette mit einer β-Kette zufällig, mit zwei möglichen Ergebnissen:
- Komplementation in cis: Eine mütterliche α-Kette verbindet sich mit einer mütterlichen β-Kette, oder eine väterliche α-Kette verbindet sich mit einer mütterlichen β-Kette.
- Komplementation in trans: Eine mütterliche α-Kette verbindet sich mit einer väterlichen β-Kette, oder eine väterliche α-Kette verbindet sich mit einer mütterlichen β-Kette.
Physiologie des HLA-Systems
Die physiologische Funktion der HLA-Moleküle der Klasse I und der Klasse II besteht darin, antigene Peptide zu präsentieren, nachdem das Antigen prozessiert wurde, und zwar den Tc- bzw. den Th-Zellen, da die TCR im Gegensatz zu den BCR das Antigen in seinem nativen Zustand nicht erkennen können.
HLA-Moleküle haben auch unter nicht physiologischen Bedingungen eine wichtige Bedeutung, etwa bei der Organtransplantation, zur Identifizierung von Personen in der Rechtsmedizin, und sie verleihen auch eine Anfälligkeit für bestimmte Autoimmunerkrankungen. HLA-Moleküle werden nur dann an der Zelloberfläche exprimiert, wenn sie an das Peptid gebunden sind; man bezeichnet sie dann als Antigenkomplex.
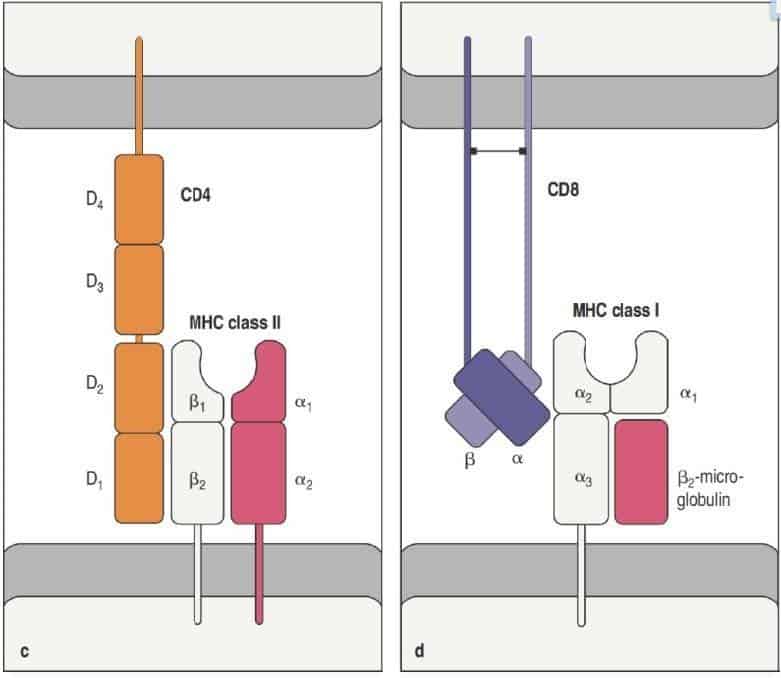
Wenn ein Molekül HLA der Klasse I auf der Oberfläche einer beliebigen kernhaltigen Zelle an seinen passenden TCR bindet, enthält seine Peptidbindungstasche bereits das Antigenpeptid. Der Korezeptor der Tc-Zelle, CD8, assoziiert mit der Domäne α3 des HLA-Moleküls der Klasse I (Abbildung 9.14).
Wenn ein Molekül HLA der Klasse II auf der Oberfläche einer antigenpräsentierenden Zelle exprimiert wird, das Peptid bereits in seiner Peptidbindungstasche gebunden ist und es an den TCR der Th-Zelle bindet, bindet der Korezeptor CD4 an seinen natürlichen Liganden, die Domäne β2 des HLA-Moleküls der Klasse II (Abbildung 9.14).
(Übernommen aus Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
Die Korezeptoren CD4 und CD8 sind Glykoproteine, die die Bindung zwischen den Zellen erleichtern und außerdem die Signalweiterleitung ins Zellinnere verstärken. Sobald der Antigenkomplex vom TCR erkannt wird, beginnen die T-Zellen, Zytokine zu bilden, die als chemische Signale wirken. Die Zytokine locken weitere T-Zellen an und induzieren die Proliferation von B-Zellen, damit diese Antikörper bilden. Die Antikörper werden in den Blutkreislauf abgegeben, um weitere Antigene zu finden und zu binden, sodass sich die Krankheitserreger nicht vermehren und keine Erkrankungen verursachen können.
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
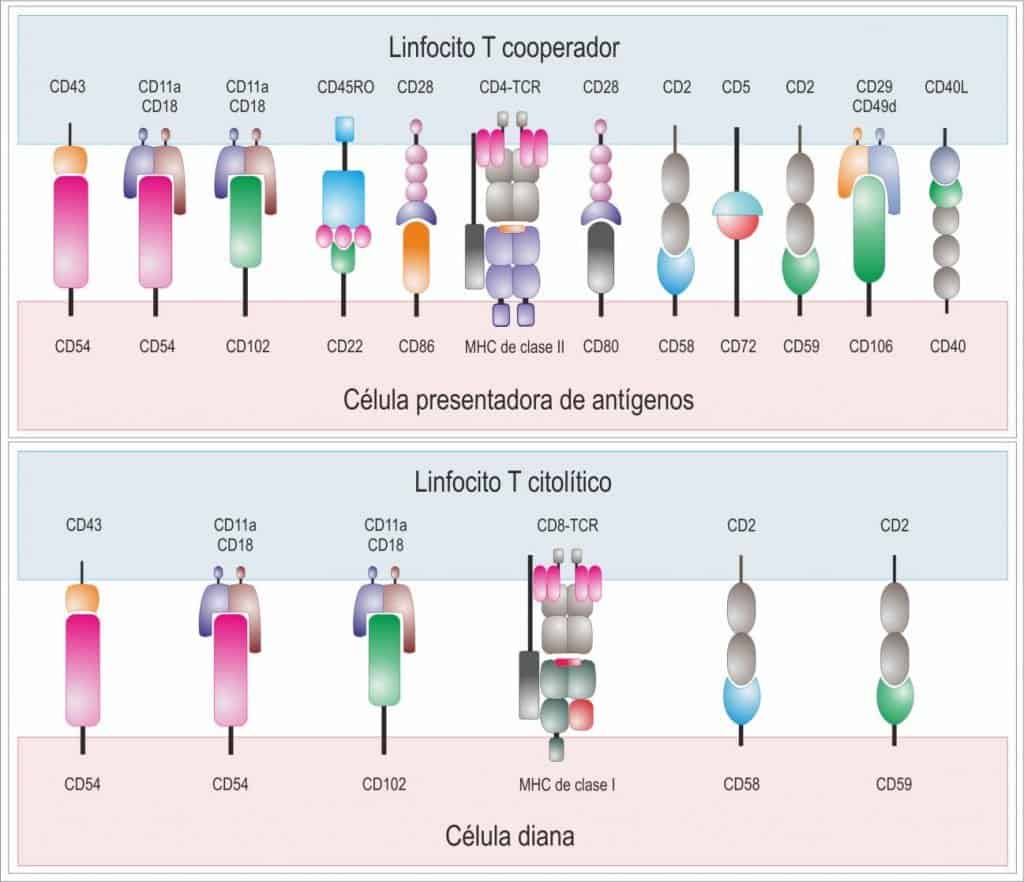
In vielen Fällen reicht die Bindung des Antigenkomplexes an den TCR nicht aus, um eine wirksame Antwort auszulösen; es braucht die Beteiligung einer Reihe akzessorischer Moleküle, die dazu beitragen, eine effektive Immunantwort zu entwickeln, indem sie die Interaktion zwischen den verschiedenen Zellen erleichtern. So entsteht eine immunologische Synapse zwischen T-Zellen und der antigenpräsentierenden Zelle, die zwischen T-Helferzellen und antigenpräsentierenden Zellen intensiver ist als die zwischen zytotoxischen T-Zellen und ihren Zielzellen (Abbildung 9.15).
An der immunologischen Synapse sind sehr unterschiedliche Moleküle beteiligt, darunter vor allem:
- Spezifische Antigenrezeptoren: BCR und TCR.
- Korezeptoren CD4 und CD8.
- Antigenpräsentierende Moleküle: HLA der Klasse I und der Klasse II.
- Rezeptoren für Adaptermoleküle (Opsonine): Rezeptoren für Komplementproteine (CD21) und Rezeptoren für den Fc-Teil der Immunglobuline (CD16).
- Zytokinrezeptoren: für IL-1 (IL-1R oder CD121a) und für IL-2 (CD25).
- Kostimulatorische Moleküle, die an Aktivierung und Differenzierung beteiligt sind: CD28 (T-Zellen) und CD80 oder CD86 (auf der APZ), CD19, CD20 (B-Zellen), CD2 (T- und NK-Zellen), CD45 (Pan-Leukozyten-Marker); CD40 (auf der APZ oder B-Zelle) und CD40L (auf der T-Zelle).
- Nach der Aktivierung induzierte Moleküle: CD25, CD38 und CD69.
- Zelladhäsionsmoleküle: CD2, CD11(a,b,c), CD18.
- Marker des Differenzierungszustands der Zelle: CD45R0 (Gedächtniszellen) oder CD45RA (naive Zellen).