Hier findest du den Lehrstoff, der im vorherigen Video erklärt wurde. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Proteinstruktur des TCR
Der T-Zell-Rezeptor (TCR) besteht aus einer Gruppe von Membranproteinen, von denen die einen an der Antigenerkennung beteiligt sind (variable Proteine) und andere eine Struktur- oder Signalübertragungsfunktion in das Zellinnere haben (konstante Proteine).
Variable Proteine
Wie bereits beschrieben, gibt es hinsichtlich der Zusammensetzung der variablen Ketten zwei mögliche T-Zell-Rezeptoren: α-β (T2-Zellen) und γ-δ (T1-Zellen).
Struktur des α-β-T-Zell-Rezeptors
Der überwiegende Antigenrezeptor sowohl der T-Helferzellen (CD4+) als auch der zytotoxischen T-Lymphozyten (CD8+) ist ein Heterodimer aus zwei Transmembran-Polypeptidketten, die α und β heißen und kovalent durch eine Disulfidbrücke miteinander verbunden sind (Abbildung 7.2). Diese heterodimere Struktur ist „äquivalent“ zu einem Fab-Fragment des Immunglobulins. Jede Kette besteht aus zwei Domänen: einer N-terminalen variablen Domäne (V), die die Antigene erkennt, und einer konstanten Domäne (C), die an der Signalübertragung beteiligt ist. Der TCR ist daher ein weiteres Mitglied der Immunglobulin-Superfamilie.
Die V-Regionen der α- und β-Ketten besitzen kurze Sequenzabschnitte, in denen sich die Variabilität zwischen den verschiedenen TCR konzentriert und die die hypervariablen bzw. komplementaritätsbestimmenden Regionen (CDR) bilden. In der α-Kette finden wir 3 CDR, die neben den CDR der β-Kette liegen und Teil des TCR sind, der das MHC-Molekül erkennt.
Auf die C-Domänen folgt die Gelenkregion, kurz und mit Cysteinresten, die zu einer Disulfidbrücke zwischen beiden Ketten beitragen. Danach kommt die hydrophobe Transmembranzone, und schließlich enden die α- und β-Ketten in kurzen carboxyterminalen zytoplasmatischen Schwänzen.
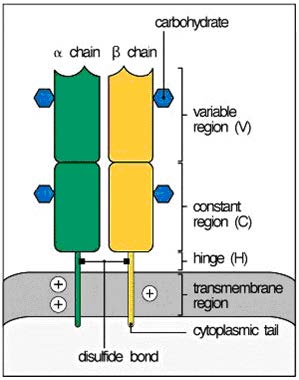
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Struktur des γ-δ-T-Zell-Rezeptors
Es ist ein zweiter Typ von Heterodimer, der durch eine Disulfidbrücke verbunden ist und in einer kleinen Subpopulation von T-Zellen exprimiert wird, die weniger als 5 % aller T-Zellen ausmacht (im peripheren Blut, wobei sie in sekundären lymphatischen Geweben, vor allem den Schleimhäuten, in größerem Anteil vorkommen können). Er besteht aus extrazellulären V- und C-Regionen vom Immunglobulintyp, einer Gelenkregion, hydrophoben Transmembransegmenten und kurzen zytoplasmatischen Schwänzen, ähnlich denen der α-β-Ketten. Die Gelenkregion enthält Cysteinreste, die an Disulfidbrücken zwischen den Ketten beteiligt sind. Die Funktion dieses Rezeptortyps ist noch nicht klar, aber er ist weniger weit entwickelt, und man weiß, dass er von Bakterien stammende nichtpeptidische Moleküle sowie kleine phosphorylierte Moleküle (von CD1 präsentierte Phospholipide) erkennt.
Die Lymphozyten mit α-β-Rezeptoren können den Korezeptor CD4 (Th) oder CD8 (Tc) exprimieren, aber nie beide gleichzeitig. Die T-Lymphozyten mit γ-δ-Rezeptor exprimieren normalerweise keinen Korezeptor und, falls doch, ist es immer CD8.
Konstante Proteine
Die CD3-Proteine und das δ-δ-Dimer assoziieren nicht kovalent mit den α-β- oder γ-δ-Heterodimeren, und wenn der TCR das Antigen erkennt, übertragen diese assoziierten Proteine die Signale, die zur Aktivierung der T-Zelle führen.
CD3-Proteine
Der Proteinkomplex CD3 besteht aus 3 Proteintypen: CD3-γ, CD3-δ und CD3-ε. Diese 3 Proteine ordnen sich zusammen mit dem TCR zu zwei Heterodimeren an: CD3-ε/CD3-γ und CD3-ε/CD3-δ (Abbildung 7.3). Die Gene dieser drei Proteine liegen benachbart auf Chromosom 11, weshalb ein gemeinsamer evolutionärer Ursprung vermutet wird. Die extrazellulären N-terminalen Regionen der Ketten CD3-γ, -δ und -ε enthalten eine einzelne Domäne vom Immunglobulintyp, und deshalb gehören alle drei zur Immunglobulin-Superfamilie. Die zytoplasmatischen Domänen von CD3-γ, -δ und -ε enthalten Motive mit Signalfunktion, die ITAM heißen (Immunrezeptor-Tyrosin-basierte Aktivierungsmotive).
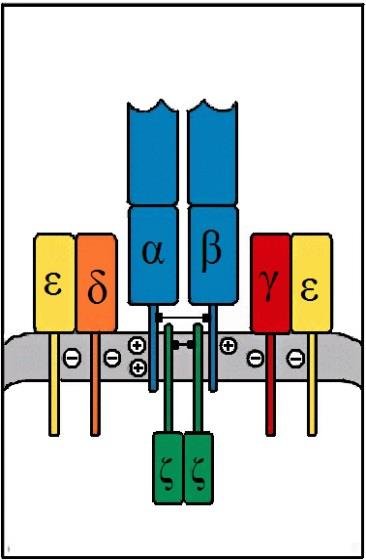
(Übernommen aus Murphy K et al. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
δ-δ-Dimer
Die TCR-Komplexe enthalten außerdem ein Homodimer der δ-Kette, das durch eine Disulfidbrücke verbunden ist. Diese δ-Kette ist zwar ebenfalls transmembranär, hat aber den größten Teil des Proteins im Zytoplasma der Zelle. Die CD3-Proteine und die δ-Kette sind in allen T-Zellen unabhängig von ihrer Spezifität identisch, was bestätigt, dass sie an der Signalübertragung und nicht an der Antigenerkennung beteiligt sind.
Die δ-Kette hat eine kurze extrazelluläre Region, eine Transmembranregion und eine lange zytoplasmatische Region, die drei ITAM enthält. Diese Kette gehört zur Immunglobulin-Superfamilie.