Hier findest du den Lehrstoff, der im vorherigen Video erklärt wurde. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Eigenschaften der Antikörper
Die kleinste Struktur eines Antigens, die von einem Antikörper erkannt wird und eine Immunantwort auslösen kann, heißt Epitop.
Sie können aus der Abfolge von Aminosäuren in der Primärstruktur (lineare Epitope) oder aus der Faltung des Proteins (Konformationsepitope) hervorgehen. Die Epitope treten in engen Kontakt mit den Paratopen der Immunglobuline.
Die drei grundlegenden Eigenschaften eines Antikörpers sind Affinität, Avidität und Spezifität (bestimmt durch die Aminosäuresequenz seiner variablen Domänen).
Die Affinität bestimmt, wie schnell sich der Antikörper (Ak) an das Ag bindet, und hängt von der Stärke der Bindungen zwischen beiden Molekülen ab. Diese Bindung ist nie kovalent und befindet sich je nach Affinität in einem Gleichgewicht, das mehr zur einen oder zur anderen Seite verschoben ist. Diese Bindungsstärke und damit die Affinität hängt von der Zahl und Art der chemischen Bindungen zwischen Paratop und Epitop ab.
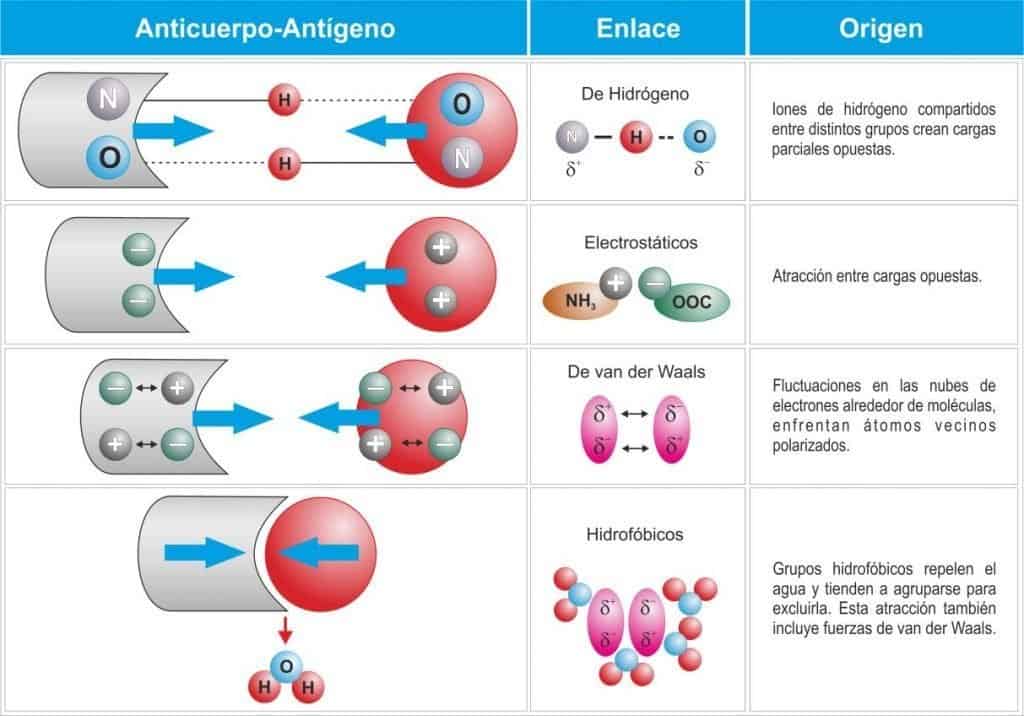
Diese Bindungen können von mehreren Arten sein (Abbildung 6.9):
- Wasserstoffbrücken: Von Atomen des Ag und des Ak gemeinsam genutzte H-Ionen erzeugen entgegengesetzte Partialladungen.
- Elektrostatische Bindungen: Zwischen Ak und Ag treten Ladungen entgegengesetzter Polarität auf.
- Van-der-Waals-Kräfte: Schwankungen in den Elektronenwolken um Moleküle lassen benachbarte polarisierte Atome einander gegenüberstehen.
- Hydrophobe Bindungen: Hydrophobe Gruppen des Ak und des Ag verbinden sich unter Ausschluss von Wassermolekülen.
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Je nach Art und Zahl der Bindungen besteht eine höhere oder geringere Affinität eines Antikörpers für sein Antigen. Die Avidität ergibt sich aus der Zahl der Bindungsstellen. Sie ist die Kraft, mit der ein multivalenter Antikörper an ein multivalentes Antigen bindet. Es gibt Antigene mit sich wiederholenden Sequenzen in ihrer Struktur. Diese Antigene verhalten sich multivalent, und die Ag-Ak-Bindungskraft ist größer als die bloße Summe der Affinitäten jeder einzelnen Bindungsstelle des Antikörpers am Antigen. Je mehr Bindungsstellen, desto höher also die Avidität.
Zum Beispiel ist das pentamere IgM meist am aviditätsstärksten für ein Antigen, da es 10 Bindungsstellen aufweist. Unter physiologischen Bedingungen ist die Avidität wahrscheinlich wichtiger als die Affinität, weil die Antikörper überwiegend divalent sind und die Antigene in aller Regel multivalent. Spezifität, Avidität und Affinität werden durch die Fab-Region des Antikörpers bestimmt. Die Funktion wird durch das Fc-Fragment bestimmt.
Funktionen der Antikörper
Antikörper sind gute Beispiele dafür, wie eng Struktur und Funktion zusammenhängen. Es sind Y-förmige Moleküle, bei denen die kurzen Arme (Fab) mit dem Antigen interagieren und der Stiel (Fc) die Effektorfunktion vermittelt. Als Folge der Ak-Ag-Reaktion kommen verschiedene Funktionen zustande:
- Agglutination – Neutralisierung des Antigens. Die Antikörper sind bivalent, d. h. sie besitzen zwei Antigenerkennungsstellen. Das ermöglicht die Agglutination des Antigens, damit es besser beseitigt werden kann. Wird außerdem die gesamte Oberfläche des Erregers mit Antikörpermolekülen bedeckt, tritt ein Phänomen auf, das als Neutralisierung bezeichnet wird. So gibt es zum Beispiel Toxine, die Nervenendigungen angreifen, doch wenn sich Antikörper an sie binden, neutralisieren sie diese.
- Opsonierung – Phagozytose. Die Bedeckung der Erregeroberfläche mit Antikörpern kann Folgen haben. So können Makrophagen, die Rezeptoren für den kristallisierbaren Anteil des Antikörpers (Fc) besitzen, die als FcR bezeichnet werden, Erreger phagozytieren, die mit Antikörpern bedeckt wurden. In diesem Fall wird die Bedeckung als Opsonierung bezeichnet.
- Immobilisierung des Erregers. Bindet der Antikörper an den beweglichen Teil des Erregers (Zilien, Geißeln), bewirkt er dessen Immobilisierung und verringert so seine Pathogenität.
- Aktivierung des Komplements. Wenn sich ein Antikörper an ein Antigen bindet, kommt es zu einer Konformationsänderung in der Fc-Region des Antikörpers, die die Aktivierung des Komplementsystems auslöst. Nur IgM und IgG können dies, und sie spielen eine wichtige Rolle in der adaptiven Immunität gegen Infektionen. Die Erkennungseinheit des Komplementsystems, die gebundene Antikörper erkennt, ist das Protein C1q des Faktors C1.
- Ausstoßung. Sind die Antikörper vom Typ IgE und die Antigene Parasiten, fördert die IgE-Antigen-Bindung die Freisetzung vasoaktiver Amine, die die glatte Muskulatur erschlaffen lassen und im Darm Durchfall hervorrufen, um den Parasiten auszustoßen.
- Antikörpervermittelte Zytolyse (ADCC). Eine weitere Funktion, die durch Rezeptoren für den Fc-Anteil des Antikörpers vermittelt wird, ist die sogenannte antikörpervermittelte Zytotoxizität (ADCC). Die Effektorzellen sind überwiegend NK-Zellen, die beim Erkennen des an der Erregeroberfläche gebundenen Antikörpers zytotoxische Substanzen freisetzen, die den Erreger angreifen. Der ADCC-Mechanismus ist vom Komplementsystem unabhängig und setzt voraus, dass die NK-Zelle FcR-Membranrezeptoren für den distalen Anteil der IgG-Antikörper (CD16) exprimiert.
- Immunität bei Fetus und Neugeborenem: Während der Schwangerschaft und in den ersten Lebensmonaten sind die mütterlichen Immunglobuline der einzige spezifische Abwehrmechanismus des Neugeborenen. Sein Immunsystem ist noch nicht ausgereift, und es kann zunächst keine eigenen Immunglobuline herstellen. Diese müssen über die Plazenta oder über das Darmepithel des Neugeborenen aus der Muttermilch transportiert werden.
Konzentration und Funktion der einzelnen Isotypen
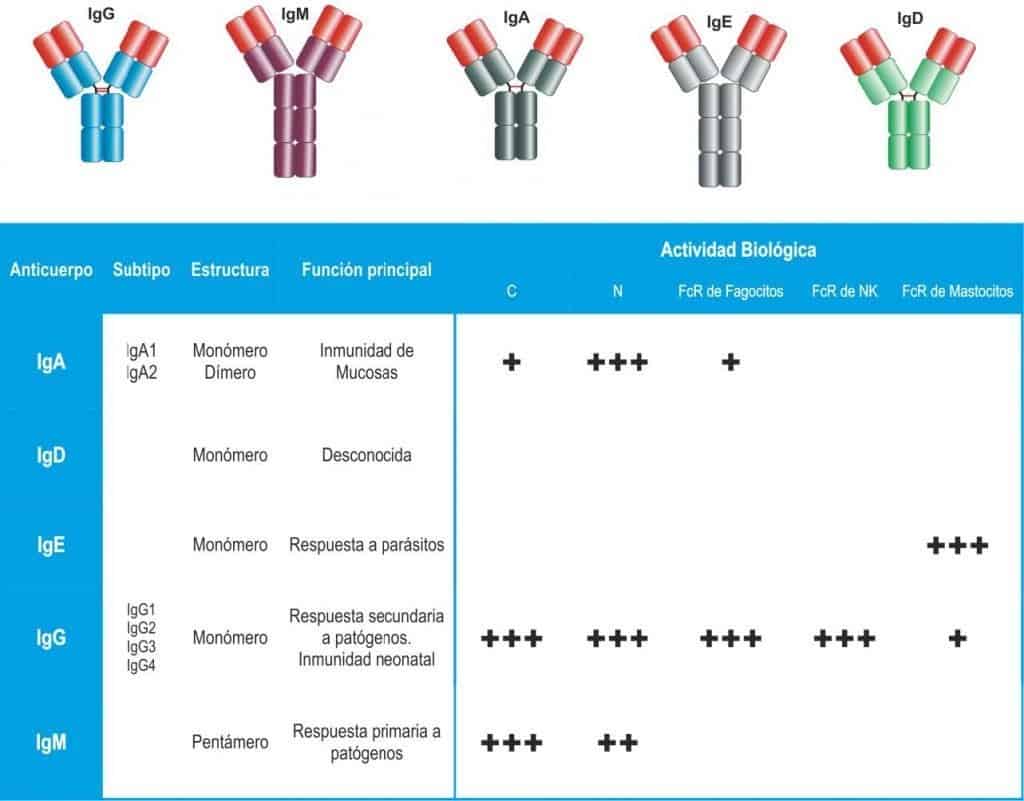
Jeder Antikörperisotyp übt manche dieser Effektorfunktionen besonders wirksam aus (Abbildung 6.10). So sind bei gleicher variabler Region verschiedene konstante Regionen mit Unterschieden in der Effektorfunktion des Antikörpers verbunden:
- IgA: Es gibt zwei Unterklassen, IgA1 (80-90 % des gesamten IgA im Serum) und IgA2 (30-50 % des gesamten IgA in Sekreten wie der Milch). Die beiden Unterklassen scheinen unabhängig voneinander reguliert zu werden. Die Serumspiegel verändern sich mit dem Alter und sind bei Frauen während der Stillzeit sowie bei chronischen Infektionen, Lebererkrankungen und Myelom erhöht. Ein niedriger IgA-Spiegel weist auf einen generalisierten Proteinmangel oder einen spezifischen IgA-Immundefekt hin. Dieses Ig ist in seromukösen Sekreten wie Speichel, Milch oder Kolostrum am häufigsten. Es ist Teil des Abwehrsystems der äußeren Körperoberfläche. In Sekreten liegt es als Dimer vor, verbunden mit einer J-Kette, die die beiden IgA-Monomere verknüpft, und mit der Sekretkomponente, während es im Blut als Monomer vorliegt (bestehend aus zwei schweren Alpha-Ketten und zwei leichten Ketten). Seine Hauptfunktion ist die Neutralisierung, wobei es in geringerem Maß auch das Komplement aktivieren kann.
- IgD: Es kommt hauptsächlich im Plasma vor (weniger als 1 % der gesamten Immunglobuline im Plasma und bei gesunden Personen nicht nachweisbar) und stets als Monomer. Seine Funktion ist unbekannt, doch es ist auf der Oberfläche von B-Lymphozyten reichlich vorhanden, und man nimmt an, dass es an der antigeninduzierten Differenzierung dieser Zellen beteiligt ist. B-Lymphozyten mit IgD verwandeln sich in eine anergische Zelle (die sich nie aktivieren wird, nutzlos). Man nimmt auch an, dass es ein evolutionärer Überrest sein könnte, der verschwinden wird.
- IgE: Seine Plasmakonzentration (in monomerer Form) ist gering, und es ist bei gesunden Personen nicht nachweisbar. Es bindet (über Fc-Rezeptoren) an die Oberfläche von basophilen Granulozyten und Mastzellen, und seine Funktion ist die Abwehr großer Parasiten; in der Industriegesellschaft wird es jedoch mit Überempfindlichkeitsreaktionen vom Soforttyp wie Asthma oder Heuschnupfen in Verbindung gebracht (Hygienehypothese).
- IgG: Im Plasma oder Serum normaler Erwachsener macht IgG 75 % der gesamten zirkulierenden Immunglobuline aus. Die IgG-Serumspiegel variieren in der Regel mit dem Alter, sogar mit der Ethnie. Ein erhöhter IgG-Spiegel wird mit chronischen Lebererkrankungen und Myelom in Verbindung gebracht; erniedrigte Spiegel können mit Malignität und schweren Proteinmangelzuständen sowie mit Immundefizienz einhergehen. Es gibt vier Unterklassen, alle in monomerer Form. IgG1 ist im Plasma am häufigsten, IgG4 am seltensten. Es besitzt eine große funktionelle Vielseitigkeit: Es ist wichtig für die fetale Immunität, da es die Plazenta passiert und in das fetale Plasma gelangt (einziger Antikörper der Neugeborenenphase und mütterlichen Ursprungs), für die Sekundärantwort und für die Komplementaktivierung und verstärkt außerdem Phagozytose, Zytotoxizität und Neutralisierung.
- IgM: Es kommt im Blut und in infizierten Geweben in pentamerer Form vor (verbunden durch J-Ketten). Jede Einheit besteht aus zwei schweren µ-Ketten und zwei leichten Ketten. Es ist der wichtigste Isotyp bei der Primärantwort. Es zeigt eine hohe Effizienz gegenüber pluripotenten Antigenen wie Bakterien und Viren und wirkt bei der Komplementaktivierung mit. Es ist ein guter neutralisierender Antikörper, wenn auch nicht so gut wie IgG und IgM. Erhöhte IgM-Spiegel werden mit Hepatitis, Myelom, Waldenström-Makroglobulinämie, Infektionen und Hyper-IgM-Syndrom (angeborene Immundefizienz) in Verbindung gebracht. Erniedrigte IgM-Spiegel werden bei einigen Antikörpermangelsyndromen beobachtet.
Im Serum finden wir daher in absteigender Häufigkeit: IgG, IgA, IgM; die Mengen von IgD und IgE sind bei einer gesunden Person nicht nachweisbar (weniger als 1 % der Gesamtmenge).
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Übertritt von IgA auf die Schleimhäute
Immunglobulin A ist der grundlegende Isotyp in den Sekreten, besonders in den Epithelien des Verdauungs- und des Atemtrakts. Die IgA-produzierenden Plasmazellen (Endstadium der Differenzierung der B-Lymphozyten) befinden sich überwiegend im Bindegewebe (Lamina propria), das unmittelbar unter vielen Epitheloberflächen liegt.
Das in der Lamina propria synthetisierte IgA wird als dimeres IgA sezerniert, assoziiert mit einer J-Kette (Abbildung 6.11). Diese polymere Form des IgA bindet selektiv an einen Poly-Immunglobulin-Rezeptor (Poly-Ig-R), der auf den basolateralen Oberflächen der Epithelzellen vorhanden ist. Sobald das dimere IgA an diesen Rezeptor gebunden hat, wird der Komplex in die Zelle aufgenommen und in Transportvesikeln durch das Zytoplasma der Epithelzelle bis zum apikalen Pol der Zelle transportiert. Dieser Vorgang heißt Transzytose.
Sobald der Rezeptor im apikalen Bereich der Epithelzelle angelangt ist, wird der Poly-Ig-Rezeptor durch eine Endoprotease gespalten (begünstigt durch den sauren pH-Wert des Darmlumens), wobei der äußerste Teil des Rezeptors freigesetzt wird, der noch mit dem dimeren IgA verbunden ist. Dieses zusammen mit dem IgA freigesetzte Rezeptorfragment heißt Sekretkomponente und schützt das dimere IgA offenbar vor möglichem enzymatischem Abbau; das andere Fragment bleibt an der Oberfläche der Epithelzelle gebunden.
Die Gewebe mit der stärksten IgA-Synthese sind der Darm, das Atemwegsepithel, die Brustdrüse (in der Stillzeit) und andere exokrine Drüsen wie die Speichel- und Tränendrüsen. Man nimmt an, dass die Hauptfunktion der IgA-Antikörper darin besteht, die Epitheloberfläche vor Infektionserregern zu schützen, indem sie diese neutralisieren.
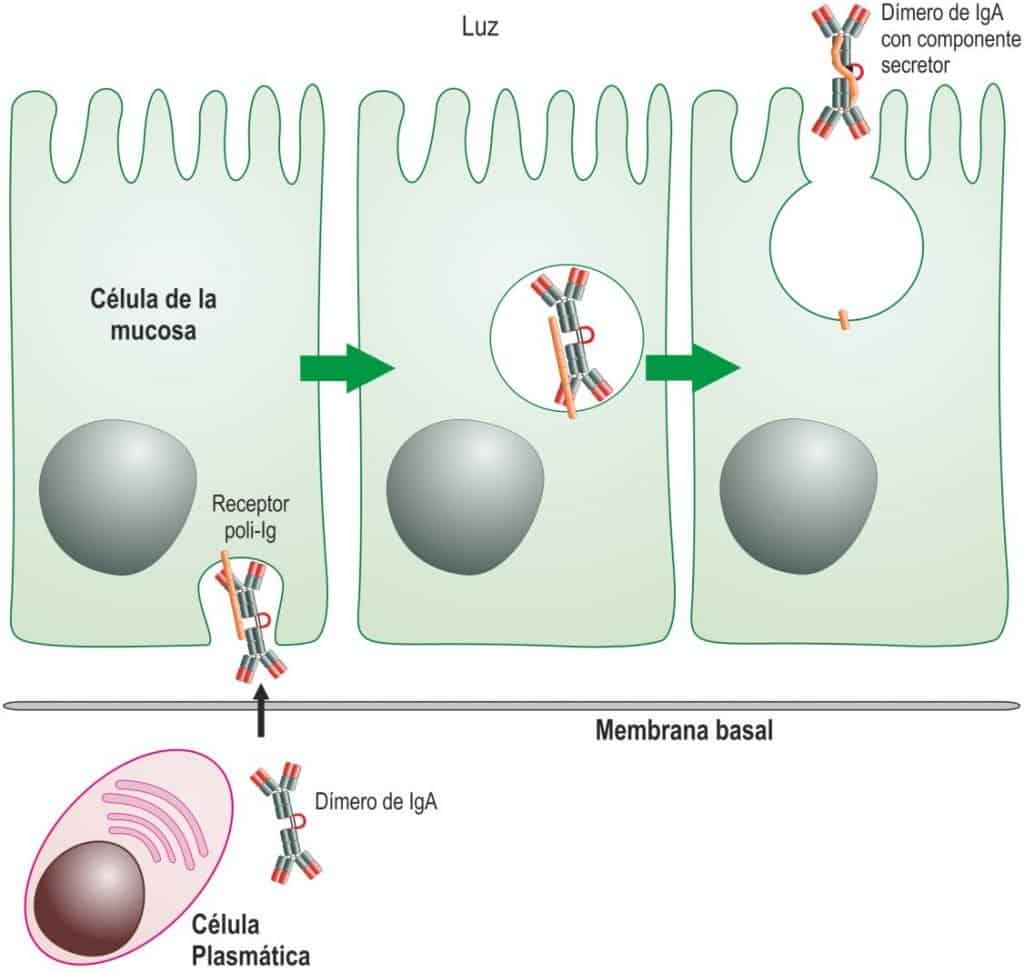
Abbildung 6.11 Übertritt von IgA auf die Schleimhäute
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)