Hier findest du den Lehrstoff, der im vorherigen Video erklärt wurde. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Isotypen der Immunglobuline
Kleine Variationen in der Aminosäuresequenz der konstanten Regionen der leichten und schweren Ketten (die Größe, Ladung und Löslichkeit des Proteins beeinflussen) definieren verschiedene Subtypen der Ketten (Isotypen):
- Man kennt 5 Typen schwerer Ketten: μ, δ, γ, α und ε. Sie unterscheiden sich strukturell und funktionell voneinander.
- Außerdem gibt es 2 Typen leichter Ketten: κ und λ. Sie sind strukturell und funktionell gleichwertig.
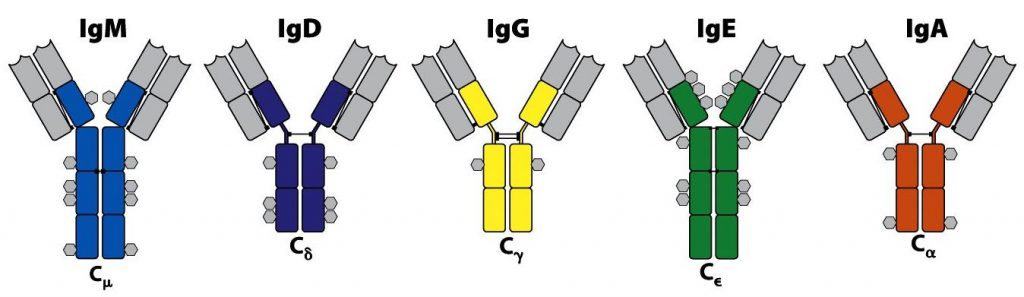
Die Ig tragen den Namen ihrer schweren Kette, unabhängig davon, welchen Typ leichter Kette sie besitzen. So gibt es: IgM, IgD, IgG, IgA bzw. IgE (Abbildung 6.5).
Darüber hinaus erlauben kleine Variationen innerhalb der Moleküle der Isotypen IgG und IgA, vier Unterklassen von IgG (IgG1, IgG2, IgG3 und IgG4; mit den schweren Ketten γ1, γ2, γ3 bzw. γ4) und zwei Unterklassen von IgA (IgA1 und IgA2; Ketten α1 und α2) zu unterscheiden. Insgesamt gibt es daher neun Ig-Isotypen, die κ- oder λ-Leichtketten enthalten können.

(Übernommen aus Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Unterschiede zwischen den Ig-Klassen (Abbildung 6.5):
- Die Moleküle IgE und IgM haben eine stark verkürzte Gelenkregion und eine vierte konstante Domäne (CH4).
- Außerdem hat jedes Ig Glykosylierungsstellen, die durch Sechsecke dargestellt werden. IgA und IgD sind am stärksten glykosyliert; IgE und IgM weisen eine mittlere Glykosylierung auf, und am wenigsten glykosyliert ist IgG (Abbildung 6.5).
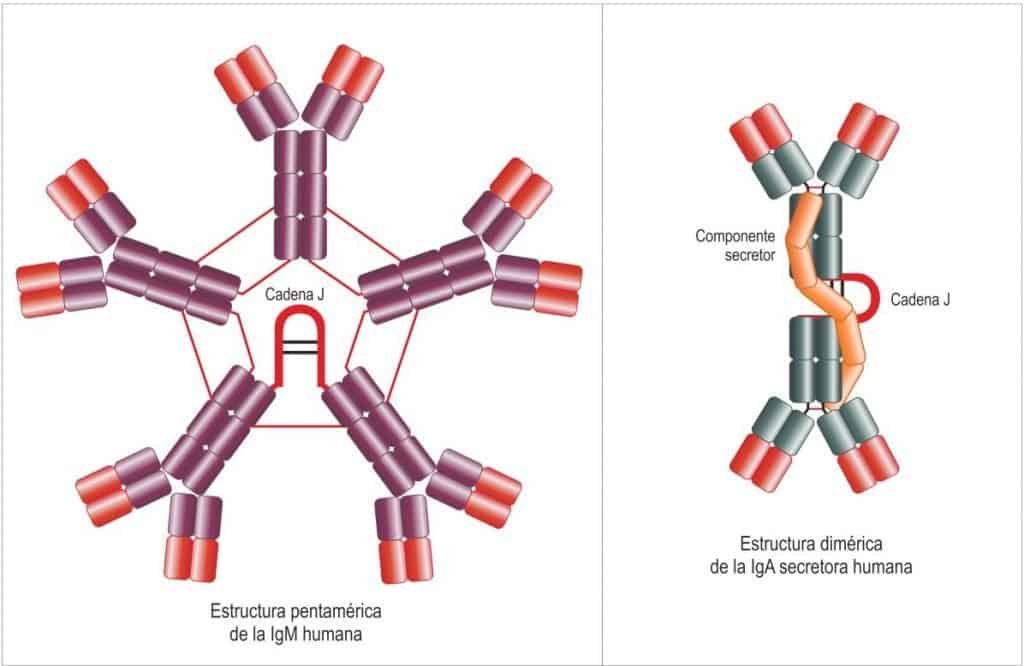
- Zwei Klassen können in multimerer Form auftreten (Abbildung 6.6) und bilden dann zusätzliche Strukturen. So liegt IgM (im Serum) üblicherweise als Pentamer vor (5 strukturelle Grundeinheiten), die zusammen 10 schwere und 10 leichte Ketten ergeben. Die fünf Ig sind über ihre Fc-Anteile durch eine J-Kette (join = Verbindung) verbunden, wobei die Antigenbindungsstellen frei bleiben. Insgesamt kann es zehn identische, voneinander unabhängige Ag erkennen. IgA liegt üblicherweise als Dimer vor, das durch eine J-Kette verbunden ist, die sich von der des IgM unterscheidet. Zudem kann IgA mit einem weiteren assoziierten Peptid (Sekretkomponente, die ihm Säureresistenz verleiht) auftreten und bildet dann das sekretorische IgA (sIg), das auf den Schleimhäuten eine wichtige Rolle spielt. Insgesamt erkennt es vier identische, voneinander unabhängige Ag auf der Oberfläche der Erreger.
Außerdem können Ig verschiedene Allotypen aufweisen (geringfügige polymorphe oder allelische Variationen der Aminosäuresequenzen in den konstanten Regionen der schweren und leichten Ketten, die nach den Mendel-Regeln vererbt werden).
Variabilität der Immunglobuline
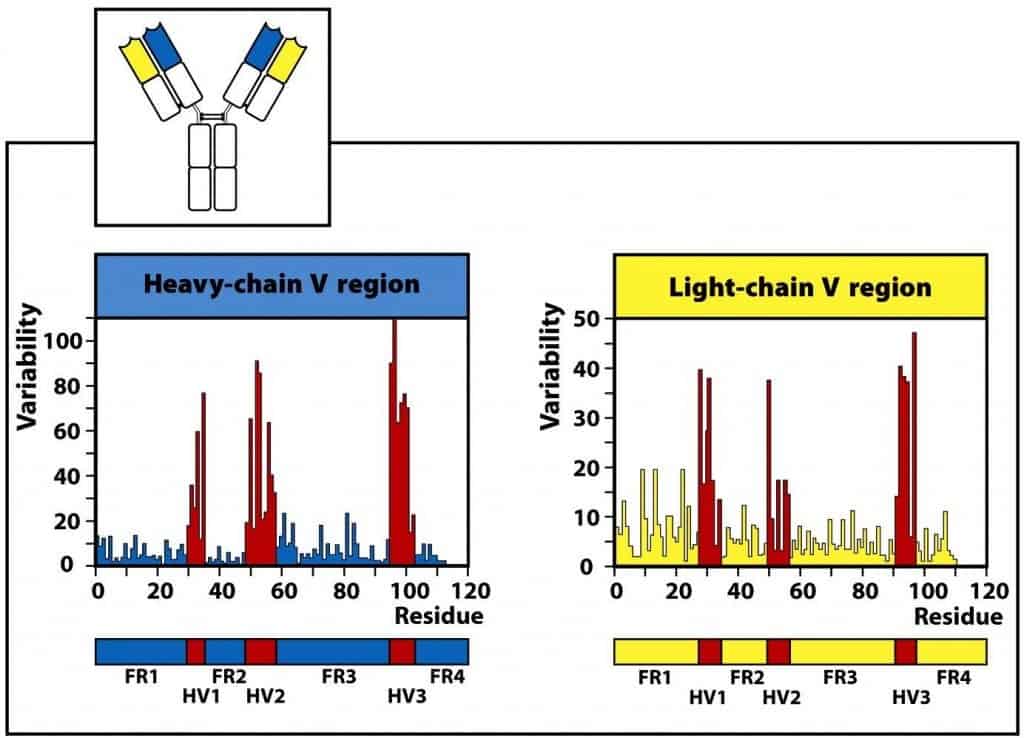
Die variablen Domänen erkennen das Antigen spezifisch. In jeder variablen Domäne faltet sich das Protein so, dass drei Kontaktstellen mit dem Antigen entstehen. Diese Stellen heißen hypervariable Regionen (HV) oder auch CDR (Complementarity Determining Regions, komplementaritätsbestimmende Regionen). Die weniger variablen Regionen, die diese flankieren, heißen Gerüstregionen (Framework-Regionen, FR) (Abbildung 6.7).
(Übernommen aus Murphy K., Travers P. & Walport M. (2008) Janeway’s Immunobiology (7th Ed.) Garland Science, New York.)
Manche Aminosäuren der hypervariablen Regionen CDR1, CDR2 und CDR3 können von Ig zu Ig eine Variabilität von 100 % aufweisen. Die Zone des engen Kontakts mit dem Antigen (Zusammenspiel der CDR-Anteile der schweren und leichten Ketten) heißt Paratop, das mit dem Epitop eines bestimmten Antigens zusammenpasst. Jedes dieser CDR-Segmente ist 5-10 aa lang. Die extreme Variabilität der V-Regionen der Immunglobuline spiegelt die Notwendigkeit wider, eine große Zahl antigener Strukturen zu erkennen. Die Mehrzahl der Kontaktstellen entfällt auf die dritte hypervariable Region (CDR3), in der sich die größte Variabilität konzentriert.
Genetische Organisation der Immunglobuline
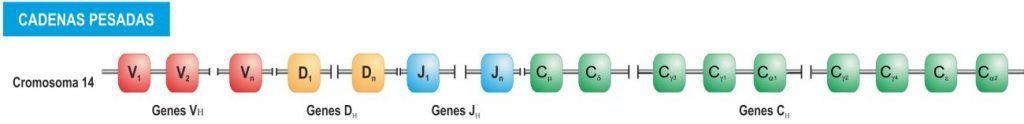
Jede Ig-Kette (schwer oder leicht) wird von einer Gruppe von Genen kodiert. Die variable Domäne wird von den Genen V, D und J (bei den schweren Ketten) bzw. nur V und J (bei den leichten Ketten) kodiert. Die konstanten Domänen werden von einem einzigen Gen (C) kodiert. Für jeden Isotyp der schweren Kette gibt es ein C-Gen (Abbildung 6.8); jedes wird mit einem „C“ bezeichnet, gefolgt vom griechischen Äquivalent der Klasse:
- IgM – Cμ, für diese Kette gibt es nur 1 Gen.
- IgD – Cδ, für diese Kette gibt es 1 Gen.
- IgG – Cγ, es gibt 4 Gene: γ1, γ2, γ3 und γ4.
- IgE – Cε, für diese Kette gibt es 1 Gen.
- IgA – Cα, es gibt 2 Gene: α1 und α2.
Ruhende B-Zellen transkribieren RNA, die die beiden ersten konstanten Gene (Cμ und Cδ) umfasst. Durch alternatives RNA-Spleißen können die Zellen gleichzeitig RNAs für IgM und IgD prozessieren, beide mit derselben Antigenspezifität, da sie dieselbe VDJ-Umlagerung enthalten.
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)