Hier findest du den Lehrstoff, der im Video oben erklärt wird. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Regulation des Komplementsystems
Angesichts der verheerenden zerstörerischen Wirkungen, die das Komplementsystem entfaltet, und der Art, wie seine Aktivierung rasch ausgelöst und verstärkt wird, überrascht es nicht, dass es zahlreiche Mechanismen gibt, die seine unkontrollierte Aktivierung verhindern.
Ein passiver Mechanismus zur Regulation des Komplementsystems ist die Labilität einiger seiner Komponenten, die eine spontane Inaktivierung ermöglicht, wenn sie nicht in einer Reaktion mit anderen Komponenten stabilisiert werden. So hat zum Beispiel die C3-Konvertase des alternativen Wegs eine aktive Halbwertszeit von etwa 5 Minuten, sofern sie nicht durch Properdin stabilisiert wird.
Zu den aktiven Mechanismen der Regulation des Komplementsystems gehört eine Reihe von Regulatorproteinen, die verschiedene Komplementbestandteile inaktivieren. Die Komplement-Regulatorproteine können in löslicher Form oder membranverankert vorliegen, wie in Abbildung 12.8 dargestellt.
Man muss zwischen den Komplementrezeptoren und den Komplement-Regulatorproteinen unterscheiden, die die Zellmembranen bedecken. In beiden Fällen sind ihre Liganden Komplementbestandteile, aber die biologischen Funktionen unterscheiden sich: Erstere dienen den Zellen des Immunsystems dazu, die Beseitigung von Krankheitserregern zu verbessern, Letztere hemmen die unkontrollierte Komplementaktivierung auf gesundem Gewebe. Es gibt eine Ausnahme: CR1 erfüllt beide Aufgaben.
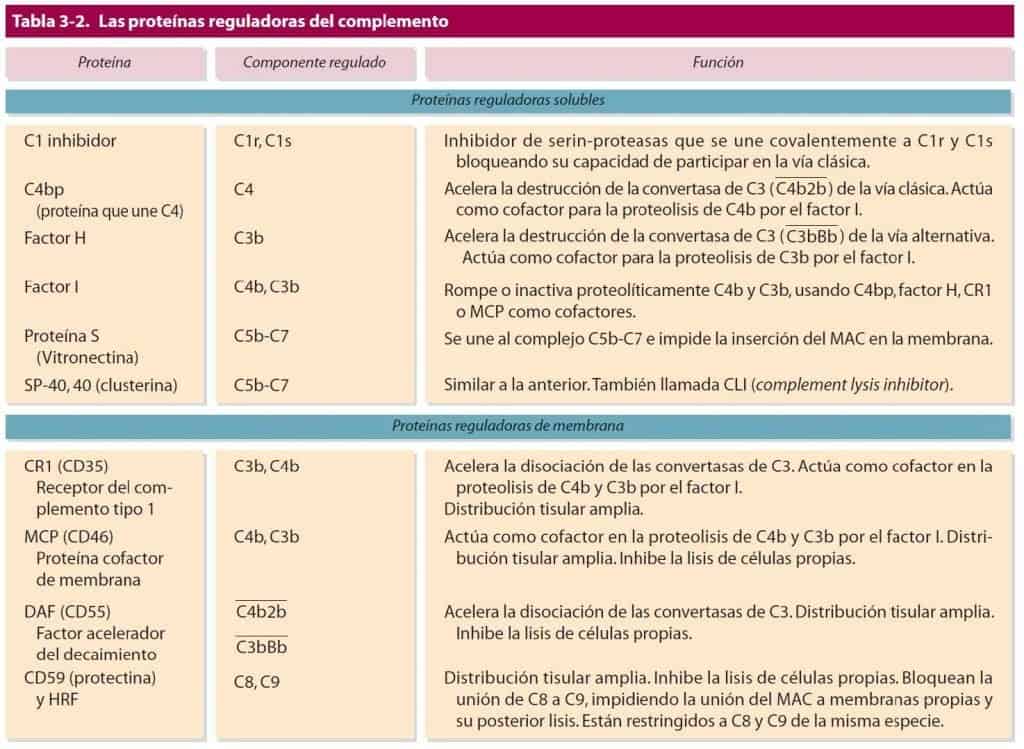
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4ª Ed.) Editorial Médica Panamericana, Madrid.)
Regulation des Komplements vor dem Zusammenbau der Konvertase
C1-Inhibitor (C1Inh) ist ein lösliches Glykoprotein, das einen Komplex mit C1r2s2 bilden kann; dadurch löst sich C1q ab, und die Aktivierung von C4 oder C2 wird verhindert (Abbildung 12.9-1).
Die von der C3-Konvertase eines beliebigen Aktivierungswegs katalysierte Reaktion kann Hunderte von C3b-Molekülen erzeugen. Diese wiederum können an benachbarte Zellen binden und sie schädigen, indem sie auf ihnen die Bildung des MAK auslösen. Als Regulationsmechanismus unterliegt C3b einer spontanen Hydrolyse, sobald es sich mehr als 40 nm von den C3-Konvertasen entfernt. Zusätzlich gibt es eine Reihe von Proteinen, die RCA (regulators of complement activation) genannt werden und die Aktivität der C3-Konvertasen regulieren. Zu ihnen gehören das C4b-bindende Protein (C4bBP), der Komplementrezeptor 1 (CR1) und das Membran-Kofaktor-Protein (MCP). Jedes dieser Regulatorproteine bindet an C4b und verhindert dessen Bindung an C2b. Danach spaltet ein weiteres Regulatorprotein, der Faktor I, C4b in gebundenes C4d und lösliches C4c (Abbildung 12.9-2,3).
Eine ähnliche regulatorische Abfolge verhindert den Zusammenbau der C3-Konvertase des alternativen Wegs. Hier binden CR1, MCP oder eine regulatorische Komponente namens Faktor H an C3b und verhindern dessen Bindung an Faktor B. Anschließend spaltet der Faktor I C3b in ein gebundenes iC3b-Fragment und ein lösliches C3f-Fragment. Die weitere Proteolyse von iC3b durch Faktor I ergibt lösliches C3c und membrangebundenes C3dg (Abbildung 12.9-4,5).
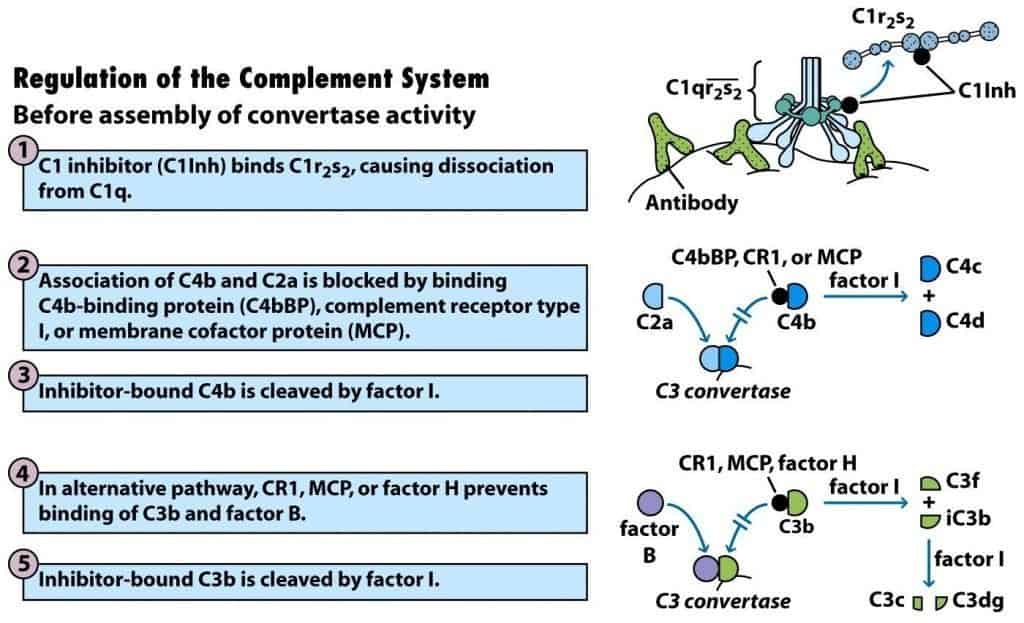
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Regulation des Komplements nach dem Zusammenbau der Konvertase
Die RCA-Proteine, insbesondere C4bBP, CR1 und Faktor H, wirken auch auf die bereits zusammengesetzte C3-Konvertase und führen zu deren Dissoziation. Der Zerfallsbeschleunigende Faktor (Decay-accelerating Factor, DAF) oder CD55, ein Membranglykoprotein, kann die C3-Konvertase ebenfalls dissoziieren. Nach der Dissoziation der C3-Konvertase spaltet der Faktor I die verbleibende membrangebundene Komponente C4b oder C3b und inaktiviert die Konvertase damit irreversibel (Abbildung 12.10).
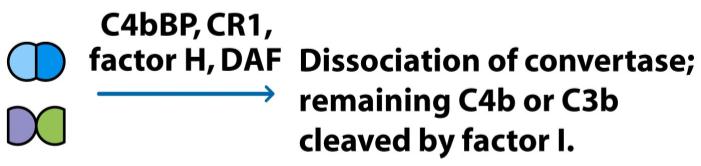
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Regulation des Komplements beim Zusammenbau des MAK
Die Bildung des Komplexes C5b67 bedeutet ein hohes Lyserisiko für gesunde Wirtszellen. Deshalb gibt es mehrere Serumproteine, die dieser Gefahr entgegenwirken, indem sie an den Komplex binden und seine Einlagerung in die Membran benachbarter Zellen verhindern. So kann das Protein S an C5b67 binden und dessen Einlagerung in die Zellmembran verhindern (Abbildung 12.11-1).
Die komplementvermittelte Zelllyse ist effizienter, wenn das Komplement von einer anderen Spezies stammt als die Zellen, die lysiert werden. Dieses Phänomen wird dem sogenannten homologen Restriktionsfaktor (HRF), Membraninhibitor der reaktiven Lyse (MIRL), CD59 oder Protectin zugeschrieben. Dieses Protein befindet sich in der Membran vieler Zelltypen und schützt die Zellen vor der unspezifischen komplementvermittelten Lyse, indem es an C8 bindet und so den Zusammenbau von Poly-C9 und dessen Einlagerung in die Membran verhindert. Diese Hemmung findet nur statt, wenn die Komplementkomponenten von derselben Spezies stammen wie die Zielzellen (Abbildung 12.11-2).
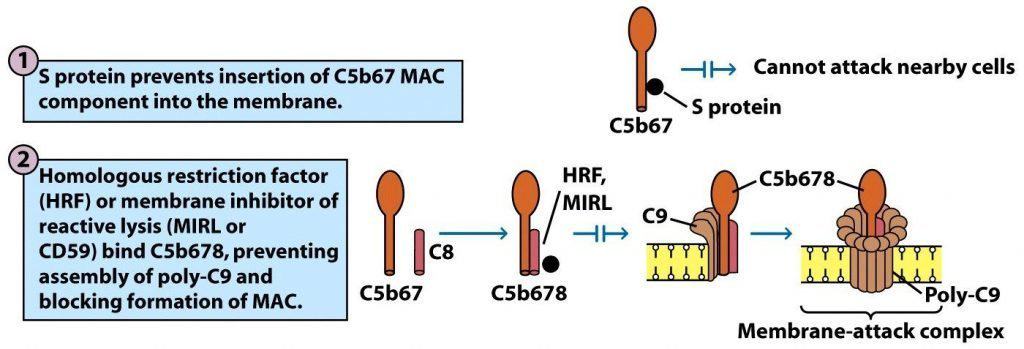
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)