Hier findest du den Lehrstoff, der im Video oben erklärt wird. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Effektormechanismen des Komplementsystems
Nach der Aktivierung des Komplementsystems auf einem der möglichen Wege interagieren dessen Bestandteile in einer fein regulierten Kaskade, um vier grundlegende Funktionen zu erfüllen (Abbildung 12.1):
- Lyse gramnegativer Bakterien, Parasiten, behüllter Viren und Wirtszellen.
- Opsonierung partikulärer Antigene, die deren Phagozytose ermöglicht.
- Aktivierung der Entzündungsreaktion durch die Komplementrezeptoren und die Sekretion immunregulatorischer Moleküle.
- Clearance von Immunkomplexen (Immunentfernung), bei der Antigen-Antikörper-Komplexe über Milz und Leber aus dem Blutkreislauf entfernt werden.
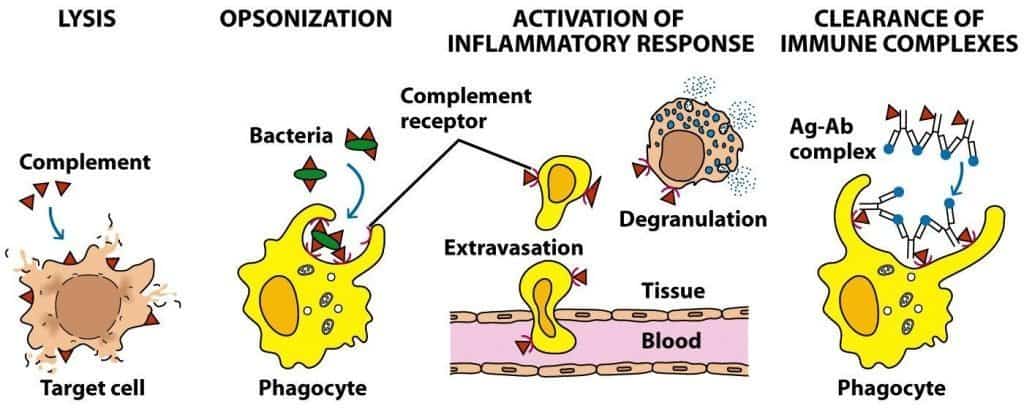
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Lyse gramnegativer Bakterien, Parasiten, behüllter Viren, Erythrozyten und kernhaltiger Zellen
Die Bildung des Membranangriffskomplexes (MAK) schädigt die Wand gramnegativer Bakterien, von Parasiten, behüllten Viren und Wirtszellen (Erythrozyten und kernhaltige Zellen), indem sich in deren Lipiddoppelschicht eine Pore bildet. Obwohl dieser Effektormechanismus des Komplements sehr zerstörerisch erscheinen mag, ist seine Rolle bei der Abwehr durch den Wirt tatsächlich auf wenige Krankheitserreger beschränkt; wesentlich wichtiger sind die Mechanismen der Opsonierung und der Aktivierung der Entzündungsreaktion.
Die Bildung des MAK ist das wichtigste Abwehrelement des Komplements gegen gramnegative Bakterien, insbesondere gegen solche der Gattung Neisseria. Diese Bakterien werden mit der Gonorrhö, einer sexuell übertragbaren Krankheit, und mit einigen Formen der bakteriellen Meningitis, einer schweren Infektion des zentralen Nervensystems, in Verbindung gebracht. Die Bildung des MAK schädigt die Strukturelemente des Bakteriums und führt zu einem osmotischen Schock, der in der Lyse des Bakteriums endet. Dennoch haben einige Gruppen gramnegativer Bakterien Mechanismen entwickelt, um der Wirkung des MAK zu entgehen. So haben zum Beispiel einige Stämme von Escherichia coli oder Salmonella Seitenketten im Lipopolysaccharid der Zellwand ausgebildet, die verhindern, dass sich der MAK in die Bakterienwand einlagert. Patienten mit einem Mangel an den Komplementkomponenten C5-C9 sind für die genannten Erkrankungen anfälliger. Grundsätzlich sind grampositive Bakterien dank ihrer dicken Peptidoglykanschicht und der Bakterienkapsel gegenüber der Wirkung des MAK resistent.
Die äußerste Schicht der Virionen oder Viruspartikel kann ein Kapsid oder eine Hülle sein. Behüllte Viren sind gegenüber Umweltfaktoren wie Säure, Detergenzien, Austrocknung oder Hitze empfindlicher, während unbehüllte Viren, anders als man meinen könnte, gegen all diese Faktoren resistent sind. Die meisten behüllten Viren sind anfällig für die komplementvermittelte Lyse. Die Virushülle stammt größtenteils von der Plasmamembran der infizierten Wirtszellen ab, sodass eine MAK-vermittelte Porenbildung möglich ist. Komplement und Antikörper spielen bei der Abwehr von Viren eine Schlüsselrolle und sind entscheidend, um die Ausbreitung des Virus während der akuten Infektion einzudämmen und vor einer erneuten Infektion zu schützen. Zu den Viren, die für die komplementvermittelte Lyse anfällig sind, gehören die Familien Herpesviridae (HSV-1, HSV-2, VZV, EBV, CMV, …), Orthomyxoviridae (Influenza-A-, -B- und -C-Viren), Paramyxoviridae (Masernvirus, Mumpsvirus, Respiratory-Syncytial-Virus, …) und Retroviridae (HIV, HTLV, …).
Auch Wirtszellen können durch den MAK lysiert werden, so etwa die Erythrozyten, die nur begrenzt in der Lage sind, Schäden an ihrer Membran zu widerstehen und zu reparieren, bei Vorgängen wie der autoimmunen hämolytischen Anämie und anderen hämolytischen Erkrankungen. Kernhaltige Zellen können der lytischen Wirkung des MAK dagegen leichter entgehen. Dennoch erlaubt die Porenbildung in der Membran den Einstrom von Ca2+-Ionen in die Zelle und aktiviert zahlreiche Mechanismen, die zur Entstehung von Krankheiten beitragen können. Kernhaltige Zellen entgehen der Wirkung des Komplements durch Endozytose des MAK, sodass die Zelle den Membranschaden reparieren und ihr osmotisches Gleichgewicht wiederherstellen kann. Eine unglückliche Folge davon ist, dass die komplementvermittelte Lyse, die durch spezifische Antikörper gegen Antigene von Tumorzellen ausgelöst wird und eine mögliche Heilung von Krebs darstellt, wegen der Endozytose des MAK durch diese Zellen unwirksam ist.
Opsonierung
Die Aktivierung des Komplementsystems und seine Verstärkungsmechanismen führen dazu, dass die Oberfläche von Zielstrukturen wie Bakterien und Immunkomplexen von Opsoninen (größere Fragmente) überzogen wird, die bei der Proteolyse der inaktiven Moleküle entstehen.
Der wichtigste Faktor für die komplementvermittelte Opsonierung ist C3b, auch wenn iC3b und C4b diese Funktion ebenfalls haben. Phagozytierende Zellen exprimieren Komplementrezeptoren (CR1, CR3 und CR4), die Opsonine binden können. Die Bindung zwischen Opsoninen und ihren Rezeptoren ermöglicht die Phagozytose des opsonierten Elements, das nach seiner Lyse vollständig oder in partikulärer Form vorliegen kann; dadurch beginnt die Antigenprozessierung, und die Synthese spezifischer Antikörper wird beschleunigt (Abbildung 12.2).

(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)
Aktivierung der Entzündungsreaktion
Während der Bildung des MAK entstehen kleine Peptide, die bei der Spaltung der inaktiven Komplementproteine frei werden. Diese Fragmente, die Anaphylatoxine (C3a, C4a und C5a) genannt werden, binden an Rezeptoren auf Mastzellen und basophilen Granulozyten und lösen deren Degranulation aus, wodurch Histamin, TNF-α und andere Entzündungsmediatoren freigesetzt werden, die den Beginn der Entzündungsreaktion bewirken (Abbildung 12.3).
Außerdem führen Anaphylatoxine zur Kontraktion der glatten Muskulatur und erhöhen die Gefäßpermeabilität, sodass antikörperreiches Plasma und phagozytierende Zellen an den Ort gelangen können, an dem sich das Antigen befindet.
C3a und C5a können die Adhäsion von Monozyten und neutrophilen Granulozyten am Endothel auslösen und so deren Extravasation und Migration zum Ort der Komplementaktivierung im Gewebe ermöglichen. Das Anaphylatoxin C5a ist der stärkste Mediator dieser Prozesse und wirkt schon in pikomolaren Konzentrationen. Außerdem kann C5a die Expression des Rezeptors CR1 auf phagozytierenden Zellen induzieren und so die Phagozytose von mit C3b überzogenen Antigenen erleichtern.
Anaphylatoxine sind sehr reaktive Substanzen und werden durch eine Serumprotease reguliert, die Carboxypeptidase N genannt wird. Sie spaltet einen Argininrest vom carboxyterminalen Ende der Moleküle ab und erzeugt so die entsprechenden desargininierten Formen. Die des-Arg-Form von C3a ist vollständig inaktiv, während die des-Arg-Form von C5a eine gewisse chemotaktische Aktivität und die Fähigkeit behält, die glatte Muskulatur zur Kontraktion zu bringen.

(Übernommen aus Male D., Brostoff J., Roth D.B. & Roit I. (2013) Immunology (8th Ed.) Elsevier Saunders, Philadelphia.)
Entstehen Anaphylatoxine in großen Mengen oder werden sie systemisch injiziert, lösen sie einen generalisierten Kreislaufkollaps aus, der ein Syndrom hervorruft, das dem durch IgE-Antikörper vermittelten Schock ähnelt. Diese Reaktion heißt anaphylaktischer Schock und ist eine sehr schwere allergische Reaktion, die innerhalb weniger Minuten durch Ersticken zum Tod führen kann (Abbildung 12.4). Die Behandlung muss bei jedem Verdacht sofort beginnen: Injiziert werden 0,3-0,5 mg Adrenalin intramuskulär (bei Erwachsenen), wiederholbar alle 5-10 Minuten, sowie ein Antihistaminikum wie Dexchlorpheniramin (Polaramine®). Zusätzlich müssen geeignete beatmungs- und kreislaufunterstützende Maßnahmen ergriffen werden.
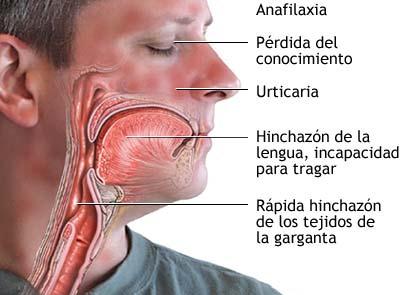
(Übernommen aus ADAM.)
Clearance von Immunkomplexen
Immunkomplexe sind Komplexe aus Antikörpern und Resten von Krankheitserregern oder abgestorbenen Wirtszellen. Wegen ihrer starken Neigung zur Aggregation und zum Einbau weiterer Bestandteile können sich Immunkomplexe in Kapillarbetten, Haut, Niere und anderen Organen ablagern und Erkrankungen hervorrufen. Das geschieht bei Krankheiten wie dem systemischen Lupus erythematodes.
Die Aktivierung des klassischen Komplementwegs opsoniert Immunkomplexe wirksam und verhindert ihre Ausfällung in den Geweben. Dazu überzieht C3b die Antigene im Kern des Immunkomplexes und verhindert so sein Wachstum. Außerdem löst C3b große Immunkomplexe auf und hemmt die Antigen-Antikörper-Wechselwirkung. Schließlich interagiert das C3b und C4b auf der Oberfläche der Immunkomplexe mit den CR1-Rezeptoren der Erythrozyten und bindet an diese. Durch die Adhäsion an die Erythrozyten können die gefährlichen Immunkomplexe zu den Makrophagen in Milz und Leber transportiert werden, wo sie internalisiert und zerstört werden.
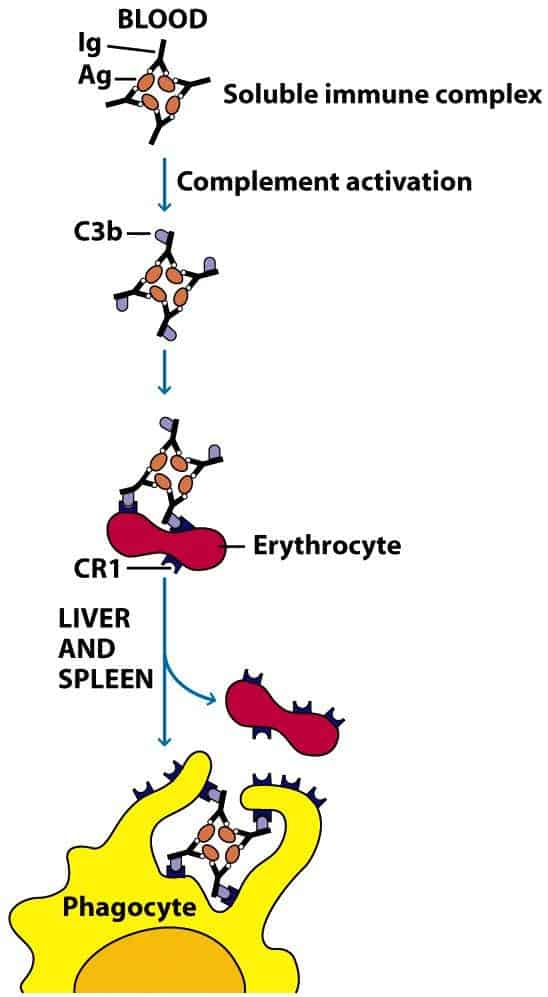
(Übernommen aus Kindt T.J., Goldsby R.A., Osborne B.A. & Palacios R. (2007) Inmunología de Kuby (6ª Ed.) McGraw-Hill Interamericana, Madrid.)