Hier findest du den Stoff aus dem Video oben. Wenn du Fragen hast, stelle sie im Kommentarbereich am Ende der Seite.
Grundbegriffe und Nomenklatur
Wenn ein Erreger die Epithelbarriere durchdringt und die erste antimikrobielle Verteidigungslinie des Individuums überwindet, begegnet er zuerst einem Element der angeborenen Immunität, das als Komplementsystem oder einfach als Komplement bekannt ist.
Das Komplement ist eine Sammlung löslicher Proteine, die im Blut und in den Körperflüssigkeiten vorkommen. Es gibt mehr als 30 Proteine, die zum Komplement gehören, und sie werden hauptsächlich in der Leber gebildet. Ohne Infektion zirkulieren diese Proteine in inaktiver Form. In Gegenwart von Erregern oder von an Erreger gebundenen Antikörpern werden die Proteine des Komplementsystems aktiviert.
Die Komplementproteine interagieren auf bestimmte Weise über verschiedene Aktivierungswege miteinander, deren Endergebnis der Tod des Erregers ist. Dieses Ziel wird erreicht, indem die Phagozytose erleichtert und eine Entzündungsreaktion ausgelöst wird, die die Infektion bekämpfen kann. Es gibt drei Aktivierungswege des Komplements: den klassischen Weg, der durch Antikörper auf der Oberfläche des Erregers in Gang gesetzt wird, den alternativen Weg, der allein durch die Anwesenheit des Antigens in Gang gesetzt wird, und den Lektinweg, der durch Moleküle auf der Oberfläche des Erregers aktiviert wird (Abbildung 11.1). Alle münden in die Bildung der C3-Konvertase.
Die Proteine des Komplementsystems werden in der Leber als Zymogene oder Proenzyme synthetisiert, also in inaktiver Form, und müssen zur Aktivierung proteolytisch gespalten werden. In der Regel wird jedes Protein des Komplementsystems von einem anderen Protein des Systems aktiviert. Die so entstehenden proteolytischen Kaskaden bilden die Grundlage der Aktivierungswege und sind für die Bildung der Effektorkomponenten des Komplements (gemeinsame Endstrecke) und für die Verstärkung der Antwort verantwortlich, die es ermöglichen, den Erreger zu beseitigen.
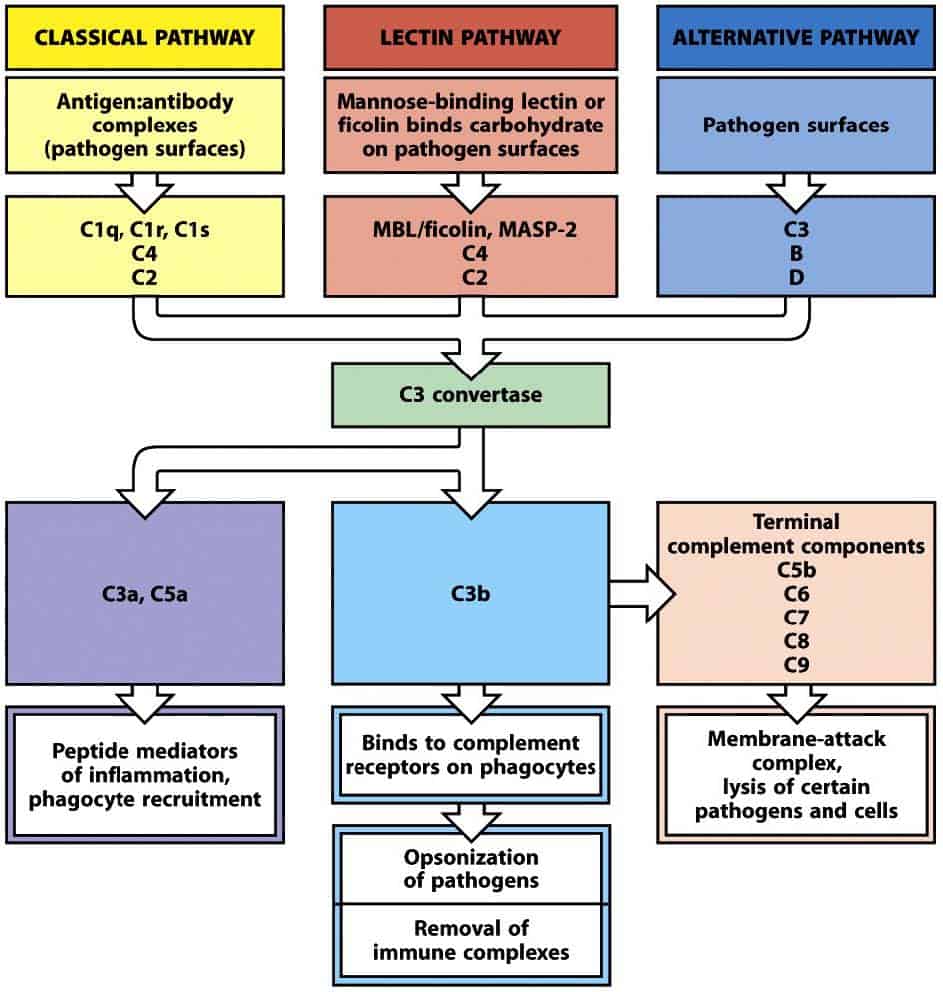
(Übernommen aus Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
Nomenklatur
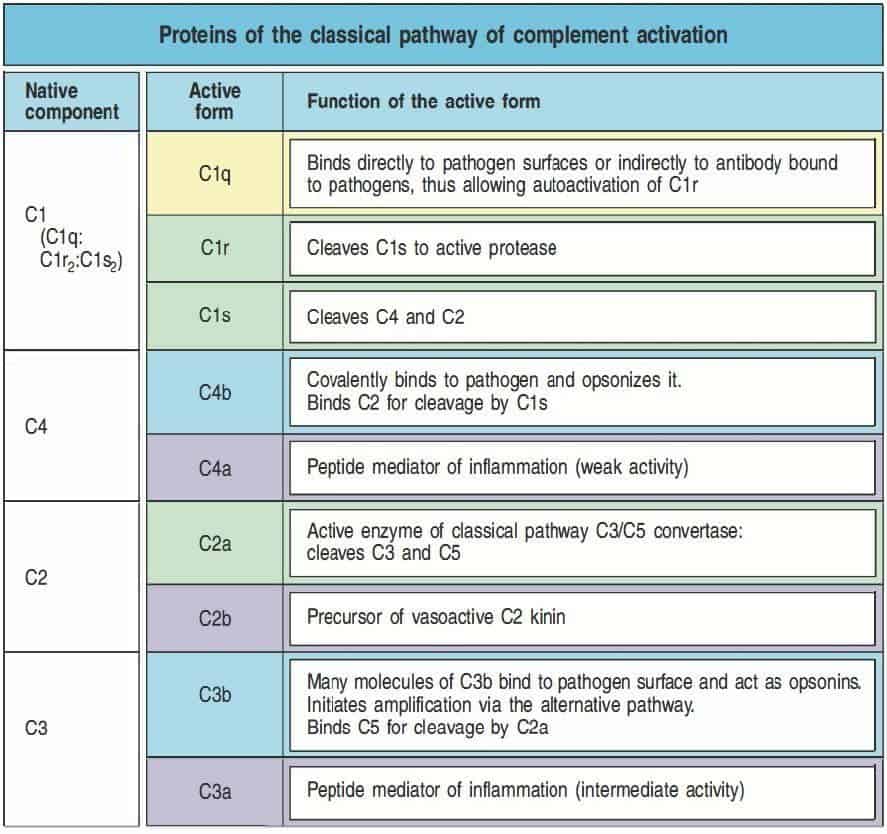
Die Nomenklatur der Proteine des Komplementsystems kann verwirrend sein. Der erste entdeckte Aktivierungsweg des Komplements war der klassische Weg, dessen Proteine mit dem Buchstaben C und einer Zahl bezeichnet werden (C1, C2, C3, C4, C5, C6, C7, C8 und C9). Diese Zahl beschreibt nicht die Reihenfolge, in der die Elemente interagieren, sondern die Reihenfolge, in der die Moleküle entdeckt wurden. Wenn eine Protease ein Komplementprotein spaltet, um es zu aktivieren, entstehen zwei Produkte. Die Produkte dieser Reaktion werden mit einem Suffix aus einem Kleinbuchstaben bezeichnet. Das kleinere Fragment der proteolytischen Reaktion heißt Anaphylatoxin, wird mit dem Buchstaben a bezeichnet (C3a, C5a, …), bleibt im Medium löslich und wirkt chemotaktisch auf Entzündungszellen. Das größere Fragment der proteolytischen Reaktion heißt Konvertase, wird mit dem Buchstaben b bezeichnet (C3b, C5b, …), lagert sich auf der Oberfläche des Erregers ab und besitzt Serinproteaseaktivität, mit der es auf das nächste inaktive Komplementprotein einwirkt. Von dieser allgemeinen Nomenklatur gibt es zwei Ausnahmen. Die erste betrifft die Proteolyse von C2, deren größeres Fragment ursprünglich C2a genannt wurde, weil es das aktivierte Fragment ist, und diese Bezeichnung wurde lange beibehalten. Heute ist es jedoch vorzuziehen, dieses Fragment C2b zu nennen. Die zweite ist die Nomenklatur von C1q, C1r und C1s, die keine Proteolyseprodukte von C1 sind, sondern eine Gruppe von Proteinen, die sich zu C1 zusammenlagern.
Die Proteine des alternativen Weges wurden später entdeckt und mit dem Begriff Faktor und einem Großbuchstaben bezeichnet (Faktor B, Faktor D …). Ihre Proteolyseprodukte werden wie die des klassischen Weges mit den Kleinbuchstaben a für das kleinere Fragment (Ba, …) und b für das größere Fragment (Bb, …) bezeichnet.
Der klassische Weg
Der klassische Weg des Komplements ähnelt dem Lektinweg, wird aber von einem Erregersensor namens C1-Komplex oder einfach C1 in Gang gesetzt. C1 kann direkt mit einigen Erregern interagieren, aber auch mit Antikörpern. Der klassische Weg hat daher eine Funktion sowohl in der angeborenen als auch in der adaptiven Immunität.
Wie der MBL-MASP-Komplex besteht der C1-Komplex aus einer großen Untereinheit namens C1q, die als Erregersensor fungiert, und zwei Serinproteasen namens C1r und C1s (Abbildung 11.4). C1q ist ein Hexamer aus Trimeren, die aus Monomeren mit einer aminoterminalen globulären Domäne und einer carboxyterminalen kollagenartigen Domäne bestehen. Die Trimere lagern sich über Wechselwirkungen zwischen den kollagenartigen Domänen zusammen, sodass sich die globulären Domänen zu einem globulären Kopf vereinigen. Das vollständige C1q-Molekül hat sechs globuläre Köpfe, die durch die kollagenartigen Schwänze verbunden sind; diese ermöglichen die Erkennung von Erregern oder von Antikörpern, die an deren Oberfläche gebunden sind, insbesondere IgG und IgM. C1r und C1s sind eng mit MASP-2 verwandt, während MASP-1 weniger stark mit ihnen verwandt ist. C1r und C1s interagieren nicht kovalent und bilden C1r:C1s-Paare. Die Paare binden an die Arme von C1q, wobei ein Teil dieser Komplexe außerhalb von C1q liegt.
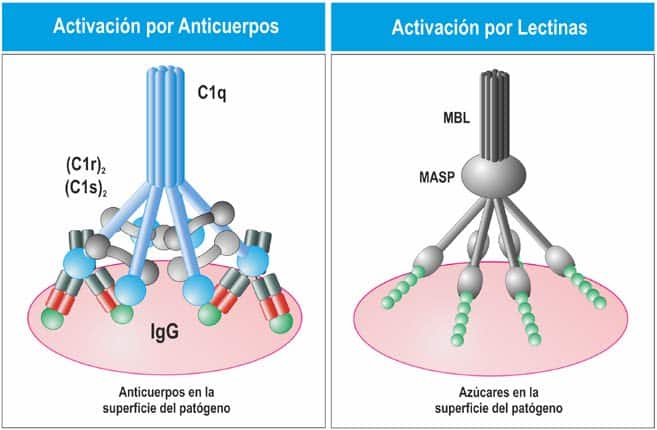
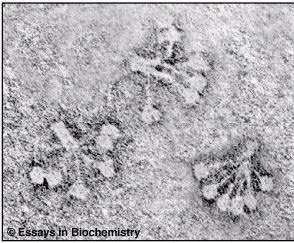
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid. Übernommen aus
Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)
Die Bindung von zwei oder mehr C1q-Köpfen an ihren Liganden führt zu einer Konformationsänderung im C1r:C1s-Komplex und aktiviert die autokatalytische Aktivität von C1r. Daraufhin spaltet C1r das ihm zugeordnete C1s-Protein und erzeugt so eine aktive Serinprotease. C1s wirkt auf die nächsten beiden Komponenten des klassischen Weges, C4 und C2. C1s spaltet C4 zu C4b, das wie beim Lektinweg kovalent an die Oberfläche des Erregers bindet. An C4b bindet ein C2-Molekül, das von C1s gespalten wird, wobei die Serinprotease C2b freigesetzt wird. Dieser Vorgang führt zur Bildung von C4b2b, der C3-Konvertase des klassischen Weges und des Lektinweges (Abbildung 11.5 und Abbildung 11.6).
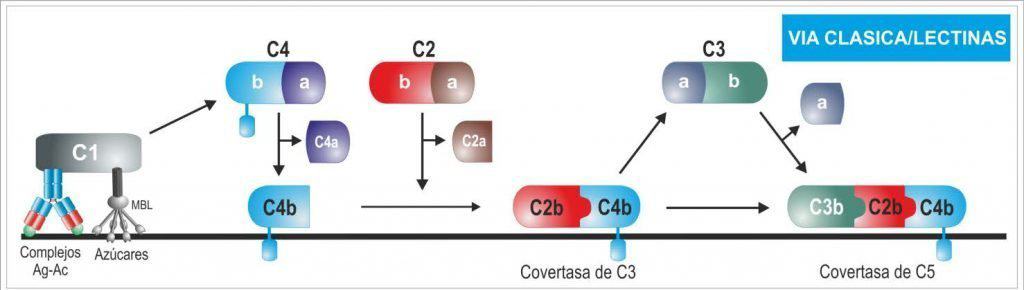
(Übernommen aus Regueiro J.R., López C., González S. & Martínez E. (2011) Inmunología. Biología y Patología del Sistema Inmune. (4. Aufl.) Editorial Médica Panamericana, Madrid.)
(Übernommen aus Murphy K et al. (2012) Janeway’s Immunobiology (8th Ed.) Garland Science, New York.)