Immunkompetenz ist die Fähigkeit, ein Antigen spezifisch zu erkennen. Diese Fähigkeit wird im Knochenmark erworben.
Die naiven Lymphozyten reifen und differenzieren sich im Knochenmark. Von dort gelangen sie in den Blutkreislauf und zu den sekundären lymphatischen Organen. Die Zellen zirkulieren ständig, da sie naive Zellen sind und über eine hohe Beweglichkeit verfügen (aktivierte Zellen entwickeln Mechanismen, um an dem Ort zu bleiben, an dem sie aktiviert wurden). In die sekundären lymphatischen Organe gelangen die Antigene der Erreger, die den Organismus infiziert haben.
Bakterien, Viren und andere Krankheitserreger, einschließlich Tumorzellen, exprimieren fremde Antigene auf ihrer Membran. Die BCR-Rezeptoren der B-Zelle interagieren mit ihrem spezifischen Ag.
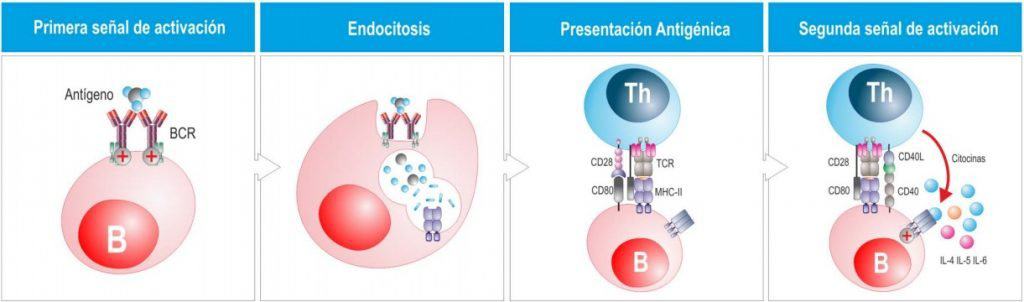
Nach der Interaktion der B-Zelle mit dem Antigen proliferiert sie und bildet einen Klon von Lymphozyten mit demselben BCR. Dieser erste Kontakt mit dem Antigen (über ein Epitop) bedeutet die teilweise Aktivierung der B-Zelle, die unter anderem Rezeptoren für Zytokine und akzessorische Moleküle exprimiert.
Dann verhält sich die B-Zelle wie ein Phagozyt und internalisiert den Erreger. Sie baut ihn ab, prozessiert ihn und präsentiert ihn den T-Zellen auf MHC-Molekülen. Die B-Zelle wirkt dann als antigenpräsentierende Zelle. Der Unterschied zu anderen antigenpräsentierenden Zellen besteht darin, dass die Spezifität der B-Zellen für die Antigene viel höher ist → sie interagieren mit ihnen bei viel niedrigeren Antigenkonzentrationen. Zusammen mit der Interaktion von CD28 mit CD80/86 der B-Zelle aktiviert dies die T-Zelle.
Diese Interaktion zwischen T- und B-Zellen ermöglicht das zweite Aktivierungssignal der B-Zellen. Die T-Zelle exprimiert CD40L, das mit CD40 der B-Zelle interagiert, und das stimuliert den Weg der Plasmazellbildung → B-Zellen werden zu Plasmazellen, damit sie Antikörper synthetisieren. Die von der T-Zelle freigesetzten Zytokine sind dafür verantwortlich, welches Ig produziert wird.
Die Th-Zellen (CD4+), die das vom MHC der Klasse II der B-Zelle präsentierte Peptid erkennen, werden aktiviert und beginnen, sich zu vermehren und zu differenzieren, um die B-Zellen zu aktivieren. Während der Antigenpräsentation kommt es zu einer Reihe von Interaktionen zwischen B- und Th-Zellen. Sind die Th2-Effektorzellen einmal differenziert, verlassen sie die sekundären lymphatischen Organe nicht, wie es bei Th1- oder Tc-Zellen der Fall ist, sondern bleiben in den lymphatischen Organen und senden Signale aus, die den für das Antigen spezifischen B-Zell-Klon, der zuvor teilweise aktiviert worden war, aktivieren und expandieren. Die von der Th2-Zelle freigesetzten Zytokine zeigen den Klassenwechsel an und auch, welche Art von Erreger sich im Milieu befindet.
Die B-Zelle wirkt auf zwei Arten:
- Direkte Membran-Membran-Kontakte über ein CD40-CD40L-Molekülpaar (Teil des zweiten stimulierenden Signals zusammen mit den Zytokinen).
- Über lösliche Faktoren (IL-4, IL-10, IL-13).
Je nach Zytokintyp entstehen unterschiedliche Isotypen. All das geschieht im Lymphknoten.
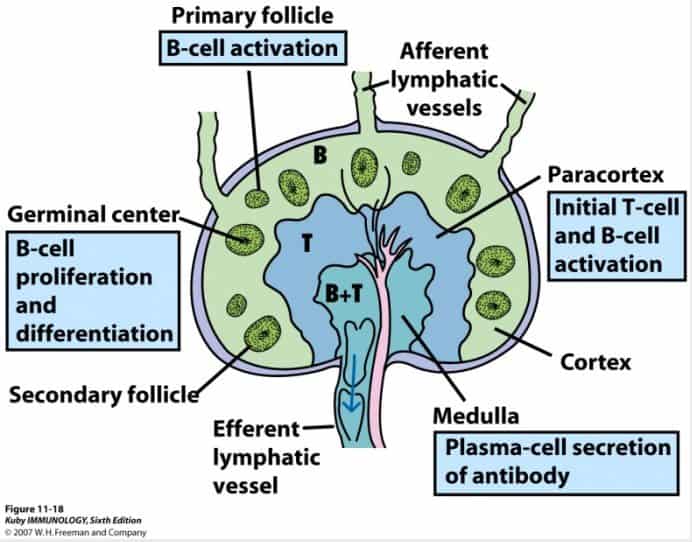
In den Lymphknoten proliferieren die aktivierten B-Zellen in den Keimzentren, die in der Rinde liegen.
Primärfollikel
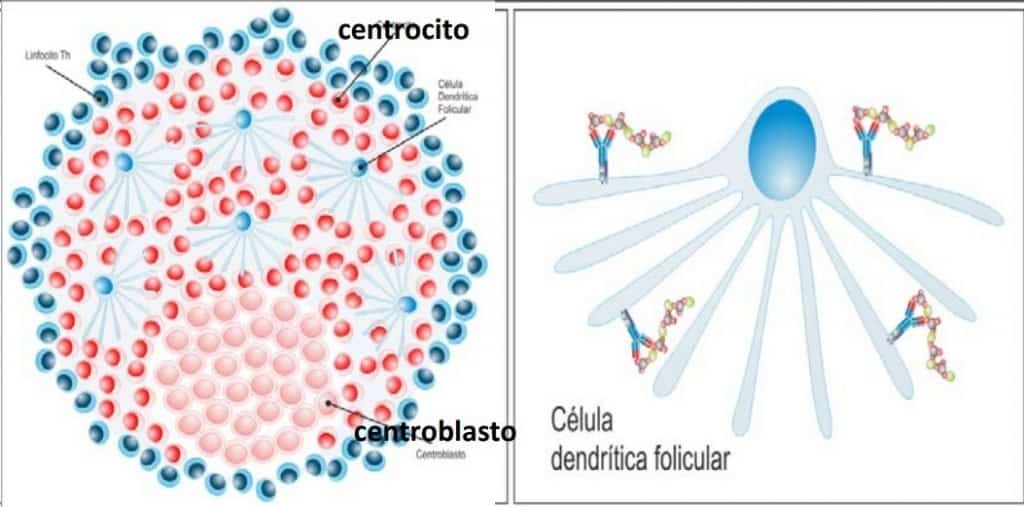
Erster Klon aktivierter B-Zellen, die sich vermehren. Nach einiger Zeit (etwa einer Woche) wird der Primärfollikel zu einem Sekundärfollikel mit einer dichteren zentralen Zone, dem Keimzentrum, in dem wir sich teilende B-Zellen finden, und einer weniger dichten Randzone aus B-Zellen, die sich nicht vermehren, dem Mantel. Die B-Zellen, die sich im Keimzentrum vermehren, verändern ihre Morphologie und unterscheiden sich von ruhenden dadurch, dass sie größer sind. Die Zentroblasten sind die B-Zellen, die das Ag erkannt haben und sich teilen, und die B-Zellen, die aus der vorherigen Teilung hervorgehen, sind die Zentrozyten, die sich nicht mehr teilen. Außen liegt eine Schicht aus T-Zellen.
Die sich vermehrenden Zellen durchlaufen eine Reihe von Veränderungen, durch die sich ihre Affinität (somatische Hypermutation) und ihre Wirksamkeit gegen den Erreger verbessern.
Follikuläre bzw. interdigitierende dendritische Zellen
Sie liegen im Keimzentrum. Sie präsentieren Antigene (von Mikroorganismen oder Bakterien), die durch Opsonierung an ihren Dendriten haften. Was diese Zellen aufnehmen, sind Immunglobulinmoleküle, die ihrerseits an ein antigenes Peptid gebunden haben. Sie besitzen Komplementrezeptoren und Rezeptoren für das Fc-Fragment der Ig, wodurch diese Zellen im Keimzentrum all diese fremden Antigene präsentieren können, die in den Lymphknoten gelangt sind. Sie funktionieren nicht wie normale dendritische Zellen, da sie keine antigenpräsentierenden Zellen sind, sondern als Antigendepot dienen.
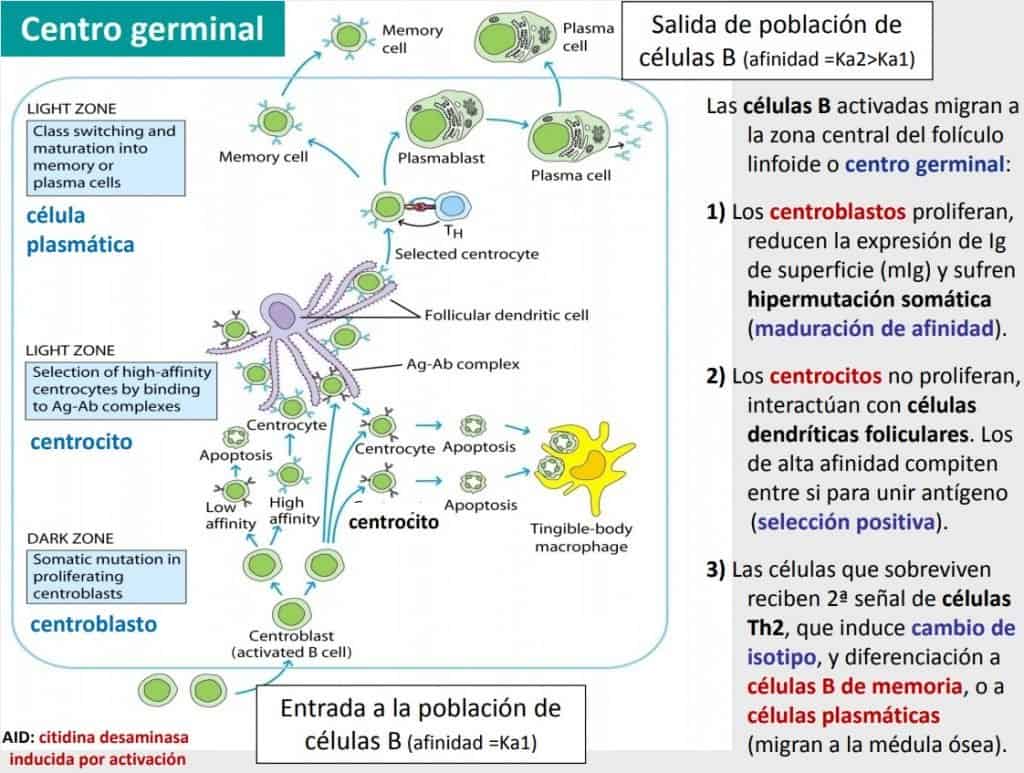
Im Keimzentrum laufen eine Reihe sehr wichtiger Vorgänge ab, die man verstehen muss, um nachzuvollziehen, wie die humorale Immunantwort entsteht.
Die B-Zellen, die aktiviert wurden, wandern in die zentrale Zone des Lymphfollikels bzw. Keimzentrums (sie exprimieren BCR-Rezeptoren in der Membran und Ig). Sie ordnen sich um ein Keimzentrum herum in unterschiedlichen Differenzierungsstadien an.
- B-Zellen, die gerade mit einem Antigen interagiert haben, haben eine gewisse Affinität zu ihm, die aber nicht ausreicht (niedrige Affinität): Das sind die Zentroblasten (sich teilende Zellen in der „dunklen Zone“). Die Zentroblasten vermehren sich und exprimieren weniger Ig auf ihrer Membran.
- Die Zentroblasten durchlaufen einen Prozess, der als somatische Hypermutation (Affinitätsreifung) (nur in den Lymphknoten!) bekannt ist: Die Enzyme aktivierungsinduzierte Cytidin-Desaminasen induzieren eine Reihe von Mutationen, die die hypervariablen Abschnitte des Immunglobulinmoleküls betreffen. Sie wandeln ein Cytosin in Uracil um, und die variable Region wird umstrukturiert. Die Mutationen können produktiv sein oder nicht, aber wenn sie produktiv sind, verbessern sie die Affinität.
- Nur diejenigen Zentroblasten, die eine produktive somatische Hypermutation durchlaufen haben, überleben. Diese Zentroblasten differenzieren sich zu Zentrozyten, die ein Ig mit höherer Affinität zum spezifischen Antigen besitzen. Die Zentrozyten wandern in die helle Zone, eine Zone, in der die Selektion auf hohe Affinität stattfindet. Die Zentrozyten vermehren sich nicht, sondern interagieren mit den Antigen-Antikörper-Komplexen der follikulären dendritischen Zellen. Das ist der Prozess der positiven Selektion, bei dem nur die Lymphozyten überleben, die die maximale Affinität besitzen.
- Die Zellen, die die positive Selektion überleben, erhalten von den Tfh-Zellen das zweite Signal für den Isotypwechsel und die Differenzierung zu Gedächtnis-B-Zellen oder Plasmazellen (sie wandern ins Knochenmark). Dieses Signal stammt von Zytokinen, die von der T-Zelle freigesetzt werden und bestimmen, welcher Ig-Typ synthetisiert wird.
- Plasmazelle (Immunglobulin produzierend): Sie exprimiert keine Immunglobulinmoleküle auf ihrer Membran. Sie ist bereits aktiviert und braucht sich weder zu teilen noch somatische Hypermutation zu durchlaufen. Sie wandert ins Knochenmark. Es sind Zellen mit einem großen rauen ER, die Antikörper produzieren. Sie werden je nach Bedarf aktiviert.
- Gedächtniszellen: Sie exprimieren Immunglobulinmoleküle auf der Membran, erkennen also Ag. Sie teilen sich nicht. Diese Zellen rezirkulieren wieder und siedeln sich in vielen Fällen an bestimmten Orten an. Sie sind für die Sekundärantworten verantwortlich.
Am Ende haben wir zwei Zelltypen mit sehr viel höherer Affinität als zu Beginn.